UMA SÓ MOLÉCULA DE RNA NA ORIGEM DE TUDO?
Toda célula viva transforma informação genética em proteínas com a mesma máquina: o ribossomo. Ele trabalha com mais de 100 RNAs transportadores e várias enzimas que os carregam com aminoácidos. Como um sistema tão interligado poderia ter surgido? O ribossomo precisa de proteínas para funcionar com eficiência — mas as proteínas precisam do ribossomo para serem feitas.
Cada um dos cenários clássicos esbarra numa versão desse enigma. No “mundo de RNA”, o RNA veio primeiro; no “mundo de proteínas”, foram as proteínas; nos modelos de coevolução, os dois cresceram juntos. Segundo Alice Cleynen, da Universidade de Montpellier e do CNRS, e Archa Fox e Nikolay Shirokikh, da Universidade da Austrália Ocidental, todos eles deixam uma lacuna: não explicam como características úteis poderiam ser ao mesmo tempo produzidas e selecionadas antes que os genes e seus efeitos estivessem fisicamente ligados.
Uma só molécula fazendo dois trabalhos
A proposta deles é o riborreplissomo (riboreplisome): uma molécula de RNA antiga que tanto copiava a si mesma quanto realizava as primeiras etapas da síntese de proteínas. Replicação e tradução, nessa visão, começaram como duas funções da mesma molécula. Os RNAs ribossômicos, transportadores e mensageiros descenderiam todos dela.
Os autores se apoiam em experimentos recentes. Uma ribozima polimerase com apenas 45 nucleotídeos, evoluída a partir de sequências aleatórias, consegue fazer sua fita complementar e uma cópia de si mesma, observam eles. Ribossomos cujas duas metades são amarradas numa única cadeia de RNA continuam funcionando. Fragmentos de cerca de 67 nucleotídeos do coração catalítico do ribossomo conseguem formar ligações peptídicas. E já se mostrou que o RNA pode ligar aminoácidos a si mesmo em água, em pH neutro.
Doze etapas até uma célula
O artigo apresenta um caminho em 12 etapas:
- Etapas 1–2, as únicas “não darwinianas”: RNAs curtos se unem numa molécula capaz de copiar; o pareamento então restringe a cópia a “si mesma”. A partir daí, a seleção natural age sem interrupção.
- Etapa 3: o copiador carrega um aminoácido na própria extremidade — o nascimento do riborreplissomo, agora “um sistema genético completo”.
- Etapas 4–8: ele se especializa em certos aminoácidos, constrói peptídeos curtos, duplica-se; as cópias excedentes tornam-se proto-RNAs transportadores, e um repertório de codificação se amplia.
- Etapa 9: um segmento móvel age como um RNA mensageiro.
- Etapas 10–12: o confinamento numa membrana ou gotícula mantém os produtos por perto; por fim, o proto-ribossomo se divide em suas duas subunidades, e a molécula original torna-se um genoma de RNA.
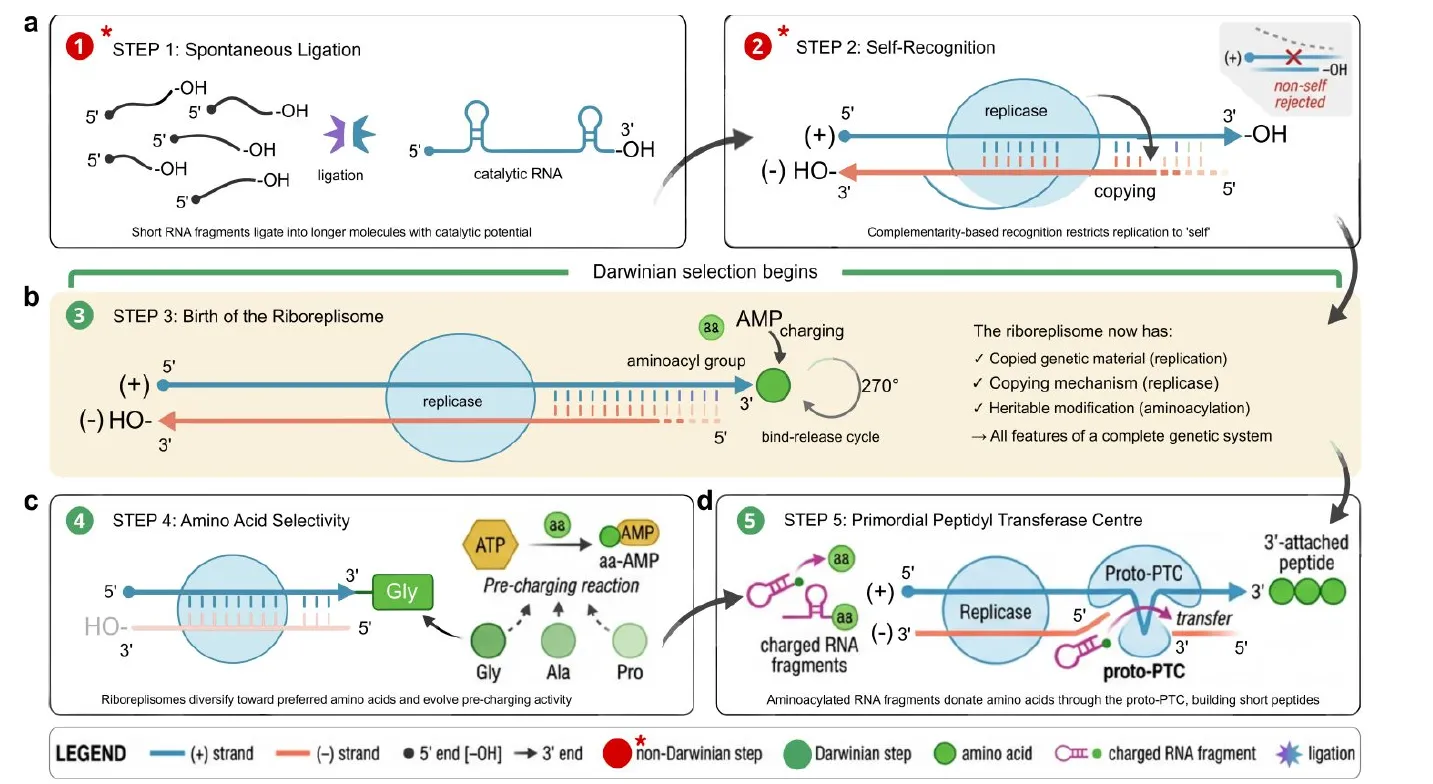
Etapas 1 a 5 do caminho proposto. Os asteriscos vermelhos marcam as duas etapas não darwinianas; a seleção darwiniana começa após a etapa 2. — Figura 2, Cleynen, Fox & Shirokikh (2026), arXiv:2609.30816.
Três modelos, uma conclusão
Os autores comparam sua molécula única com uma “sopa de RNA” na qual moléculas separadas precisam cooperar.
- Paisagens de aptidão: com poucas interações entre as etapas, a paisagem tem cerca de 11 picos locais; com a forte interdependência de uma sopa, cerca de 155. A evolução fica presa com muito mais frequência na sopa.
- Informação: dos 165 bits de informação funcional, 65 (39%) precisam surgir por acaso nas duas primeiras etapas. Essas duas etapas concentram mais de 99,99% do tempo de espera; as outras dez seguem rapidamente.
- Simulações de populações: ao longo de 500 gerações, a aptidão do riborreplissomo sobe de 1,0 para 2,61, enquanto a da sopa cai para 0,46 — uma diferença de 5,69 vezes. O principal culpado é a difusão: os produtos úteis se afastam dos genes que os fizeram. Eliminar as moléculas trapaceiras quase não ajuda.
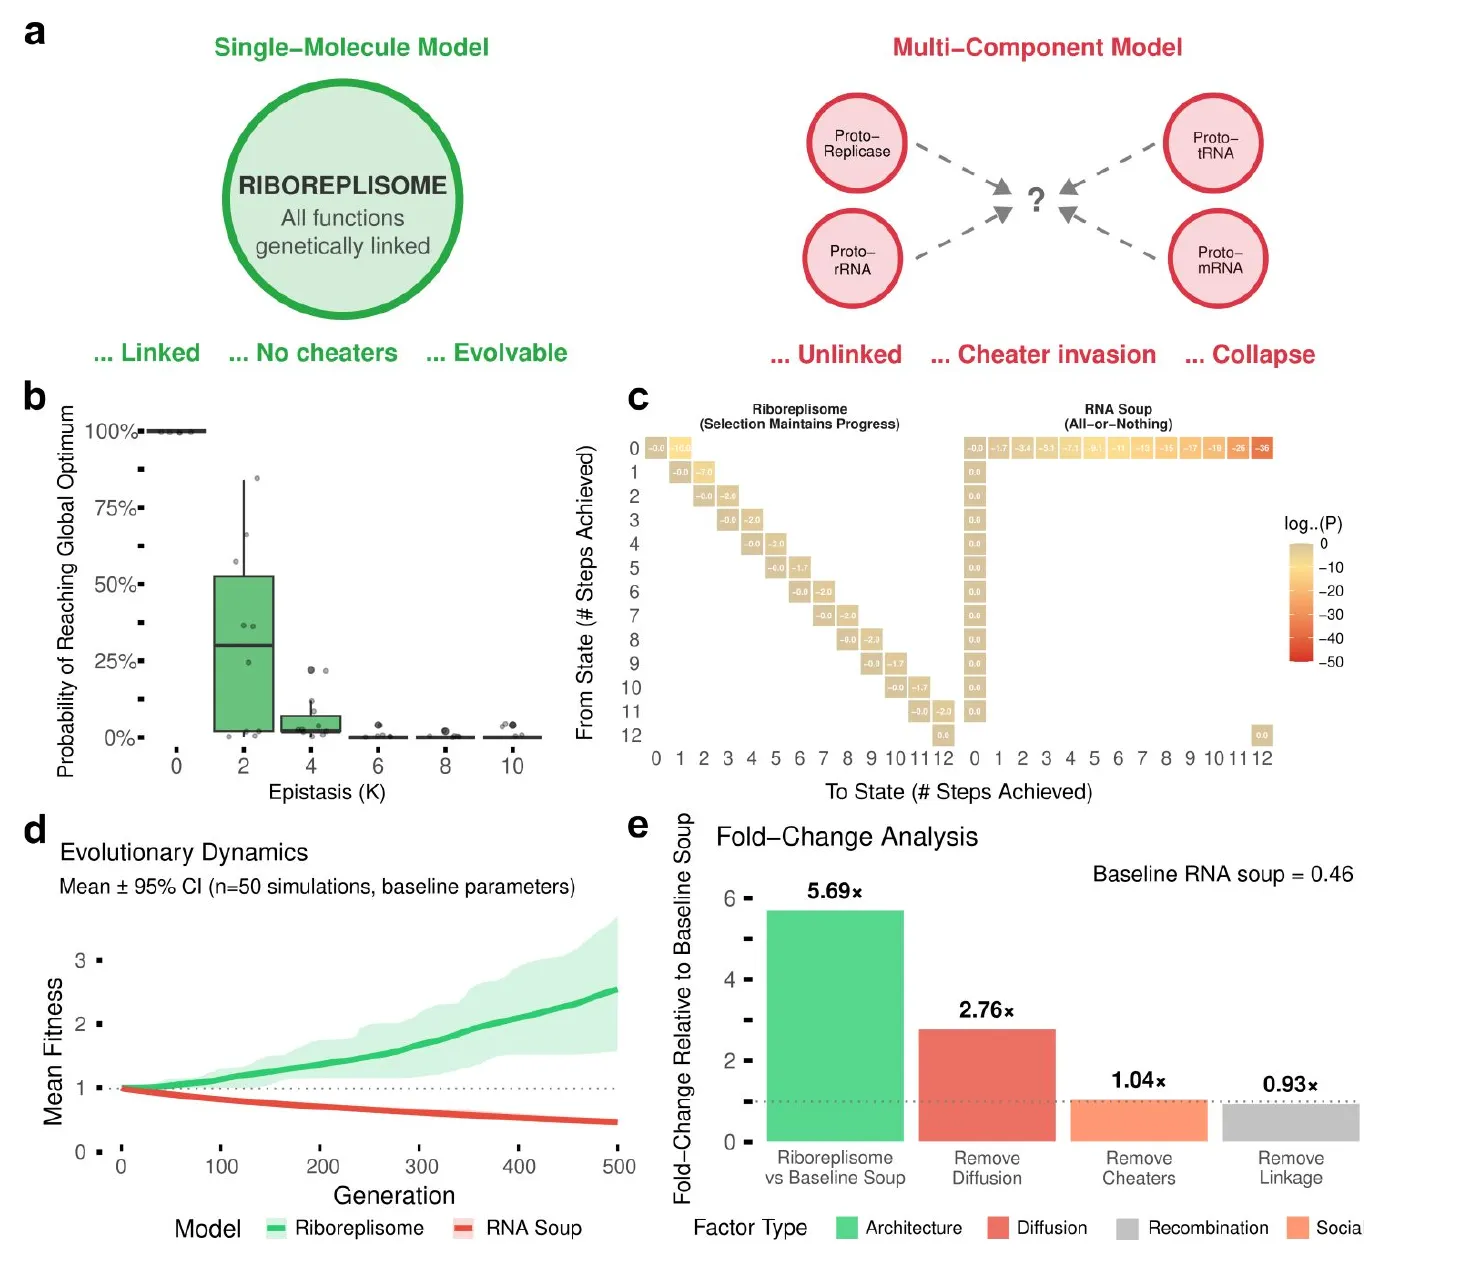
Uma molécula única ligada contra uma sopa de RNAs cooperando: a aptidão do riborreplissomo sobe enquanto a da sopa diminui; a difusão dos produtos é a maior desvantagem. — Figura 4, Cleynen, Fox & Shirokikh (2026), arXiv:2609.30816.
Uma teoria à espera de testes
Trata-se de uma hipótese, não de uma descoberta: o artigo não relata nenhum experimento novo, e seus modelos se baseiam em parâmetros estimados. Alguns números são inconsistentes ao longo do texto — a probabilidade de alcançar a melhor solução aparece como 5% num trecho e cerca de 30% nas figuras, por exemplo. Os autores oferecem quatro maneiras de testá-la: evoluir riborreplissomos mínimos em laboratório, procurar seus vestígios no RNA ribossômico, verificar se a tradução por uma molécula única resiste às trapaceiras e reconstruir os intermediários previstos. O riborreplissomo original provavelmente se perdeu, escrevem eles, mas suas relíquias podem sobreviver no RNA de todas as células.