追逐海洋之雪的微生物
每年,海洋都把数十亿吨碳从表层送往深处,运载它们的是海洋雪:缓慢下沉的有机物絮片。科学家把这一过程称为生物碳泵。
在下沉途中,絮片穿过充满微生物的海水,每毫升约有100万个细菌。然而,细菌只占海水体积的约千万分之一,因此絮片和微生物必须真正相遇,微生物才能开始吃掉它,并把它的碳归还给海水。这种相遇发生的频率决定了有多少碳能抵达深海。在此之前,从未有人在开阔大洋中,用野生微生物和新鲜海洋雪直接观察过这一过程。
摇晃船上的显微镜
来自斯坦福大学的Rahul Chajwa和Manu Prakash在2024年夏季的一次科考中,于加利福尼亚洋流中的科考船Kilo Moana号上架设了一台显微镜。他们用一个位于80米深处的漂流式捕获器收集海洋雪,并从叶绿素最集中的20米深处采集充满微生物的海水。
他们把一片絮片放进一条细窄的通道,给微生物的DNA染色使其发光,再泵送海水流过絮片以模拟它的下落。成像在采集后30分钟内开始。一个定制的处理流程自动识别细胞,然后由一个人逐帧检查每一条轨迹:总共2,657条轨迹。
时游时停的游泳者
这些微生物直径在0.25到2.4微米之间,其行为与教科书中的实验室细菌大肠杆菌(E. coli)毫不相同。有的沿直线游动,有的一阵一阵地游、中间有停顿,有的一甩身就掉头、悬停,或者干脆随水漂流。许多微生物在游动和静止之间来回切换,游动持续约1.2秒,停顿约3.4秒,有时长达25秒。在任意时刻,大约一半的微生物没有在游动。
它们的速度从每秒7微米到70微米不等。根据速度和大小,团队估计,游泳只消耗一个典型微生物约0.17%的能量预算,最多约10%:据作者称,这是首次在海上进行此类测量。
趋化视界
絮片会渗出化学物质,而许多微生物能够沿着化学梯度向上游动,这种行为称为趋化性。没有水流时,吸引作用很弱。有水流时,游动的微生物会在絮片下游聚成一团云;当水流变得太快时,这团云就会散开脱离。
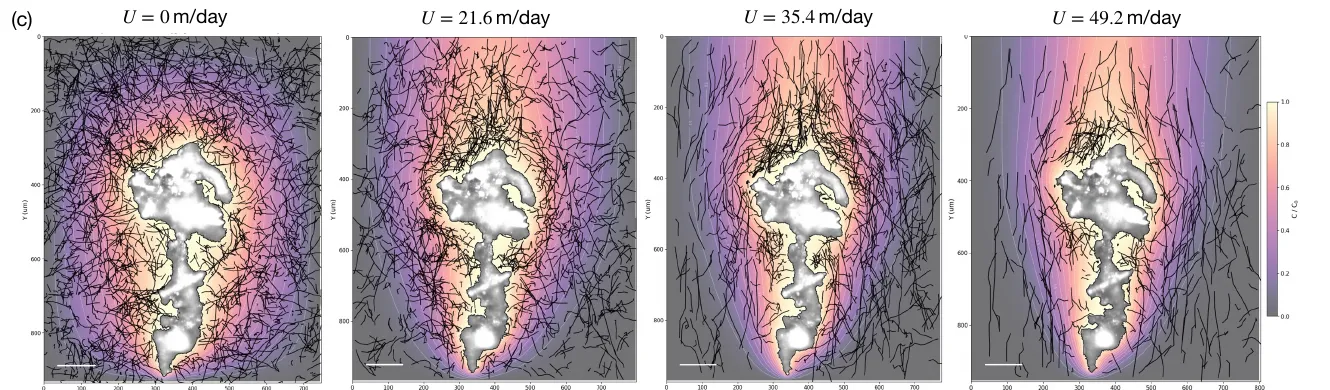
水流从每天0米增加到49.2米时,一片絮片(灰色)周围的微生物轨迹(黑色);颜色表示计算得到的化学羽流。——图3c,Chajwa和Prakash(2026),arXiv:2611.13165。
绕着下落絮片流动的水还会让微生物旋转,使它们偏离目标。作者定义了一个趋化视界(chemotactic horizon):在絮片周围的这一区域内,化学梯度的牵引胜过这种旋转。这一区域的大小由化学导向的强度决定,该强度是在反应最灵敏的游动者身上测得的。在不下沉的絮片周围,这个区域并不存在:它只在有水流时出现。
先是峰值,然后归零
团队统计了在从每天0米到49.2米的四种流速下,有多少微生物到达絮片的紧邻区域。相遇次数先上升,后下降。对这些测量拟合出的曲线在每天14.4米处达到峰值,并在接近每天78.1米时降到零,这远超测试过的最快流速;在那样的流速下,微生物会表现得就像被水带着走的被动微粒。这与经典理论相反,经典理论预测颗粒下落越快,相遇就越多。
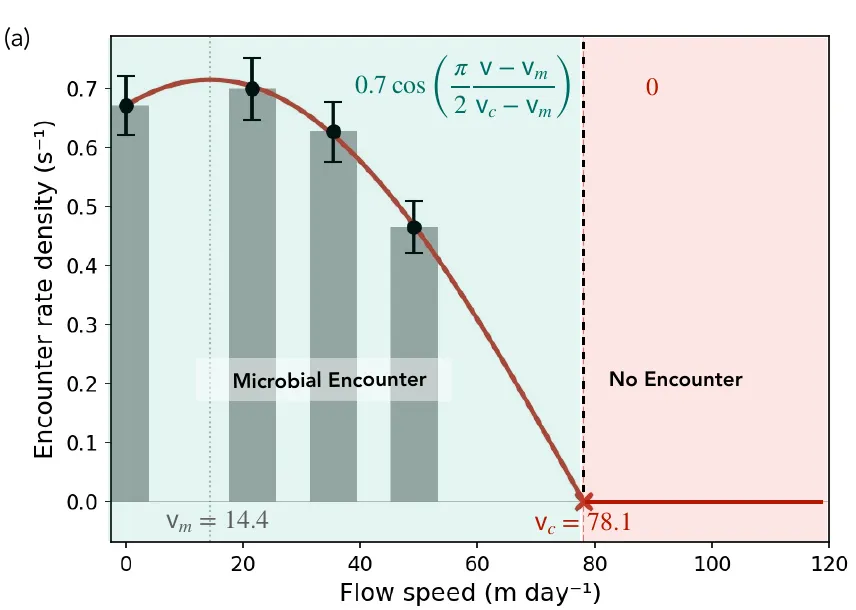
在四种流速下测得的相遇率(条形和数据点)以及拟合曲线:峰值在每天约14.4米处,超过78.1后为零。——图5a,Chajwa和Prakash(2026),arXiv:2611.13165。
慢絮片留下,快絮片坠落
随后,作者把这条曲线代入一个简单模型:一批絮片在海面附近释放,每片絮片被吃掉的速率取决于它的速度。一条清晰的界限出现了。比阈值慢的絮片逐渐被吃掉,停滞在上层海洋。比阈值快的絮片几乎未被触及,坠落到海底而不被分解。絮片群体分化为两组,位于不同深度。
这带来了一个实际后果。沉积物捕获器随时间收集下落的物质,可能会收集到历史和命运截然不同的絮片,因此它们的平均值可能掩盖真实发生的情况。作者提醒,他们的模型是最简化的:它假设降解紧随相遇发生,用氧气代表絮片释放的众多化学物质,并且没有考虑絮片的破碎或合并。尽管如此,它把单个微生物的行为与海洋能够封存多少碳联系了起来,而目前海洋碳泵模型的不确定性高达数十亿吨。