LO QUE PAGA UNA CÉLULA POR SEGUIR UN OLOR
Las células siguen rastros químicos constantemente. Las células inmunitarias persiguen infecciones, las células embrionarias encuentran su lugar, los microbios buscan alimento. Lo hacen detectando un gradiente: una concentración ligeramente mayor en un lado que en el otro. Para medirlo, una célula debe atrapar algunas de las moléculas que la rodean con receptores de su superficie, y esas capturas son aleatorias. Cuantas menos moléculas cuenta, más ruidosa es su estimación.
Los físicos conocen desde hace tiempo la mejor precisión que puede alcanzar una célula. Una célula que captura y se traga cada molécula que la toca, un absorbente perfecto, es la que más cuenta y la que mejor estima. Pero tragar y procesar moléculas cuesta energía. Entonces, ¿cuánto se acercan las células reales a ese límite, y qué les cuesta?
Una célula que se traga parte de lo que detecta
Albert Alonso (Universidad de Aalborg, Copenhague), Julius Kirkegaard (Universidad de Copenhague) y Robert Endres (Imperial College London) modelizaron una célula como una esfera que absorbe solo una parte de las moléculas que llegan a su superficie. En un extremo, un reflector perfecto no absorbe nada, permanece en equilibrio con su entorno y no aprende nada. En el otro está el absorbente perfecto.
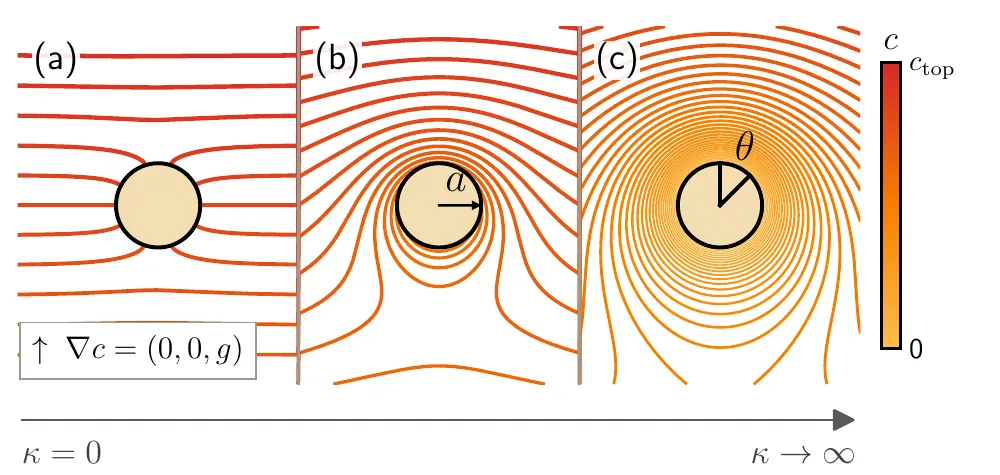
Una célula (círculo) en un gradiente de concentración, de un reflector perfecto (a) a un absorbente parcial (b) y a un absorbente perfecto (c): cuanto más absorbe, más agota las moléculas a su alrededor. — Figura 1, Alonso et al. (2026), arXiv:2611.14145.
Describen una célula por su fracción de captación: la proporción que absorbe de lo que absorbería un absorbente perfecto. Sus fórmulas relacionan de forma exacta esta fracción, el número de moléculas absorbidas y la precisión de la estimación del gradiente.
El problema de delante y detrás
Medir una concentración solo requiere contar. Medir un gradiente requiere además distinguir la parte delantera de la trasera: comparar cuántas moléculas llegan a cada lado. Eso añade un factor de penalización, que depende de la intensidad con que absorbe la célula. Vale 4 para un absorbente débil y baja a 1 para un absorbente perfecto, de modo que una célula que absorbe débilmente necesita hasta cuatro veces más moléculas para la misma precisión. En la práctica, con la captación que los autores infieren para la célula estudiada más abajo, el factor se mantiene cerca de 4.
El precio de cada molécula
Cada molécula que una célula se traga y procesa tiene un coste inevitable, que los físicos miden como producción de entropía. Los autores dividen el coste en dos. La primera parte es la maquinaria química del interior de la célula que registra cada captura. La segunda es inevitable: a medida que la célula agota su entorno, cada molécula tiene que «caer» en la zona empobrecida que la rodea.
Ese segundo coste es pequeño para un absorbente débil, pero crece sin límite a medida que la célula se acerca al absorbente perfecto, en el que la concentración en su superficie cae a cero. Por eso el absorbente perfecto nunca puede alcanzarse con una cantidad finita de energía. Sin embargo, el crecimiento es lento: para un coste de señalización modesto, una reacción química por captura, y aún más para uno más elevado, el transporte se mantiene por debajo del 10 % de la factura hasta que la célula absorbe el 89 % del máximo.
Una célula reptante muy por debajo del límite
Después, el equipo se centró en Dictyostelium, una célula que repta hacia señales químicas. Ajustando su fórmula a mediciones publicadas de lo bien que estas células se alinean con los gradientes, obtiene una fracción de captación del 0,25 %: Dictyostelium absorbe solo la cuarta parte del uno por ciento de lo que podría.
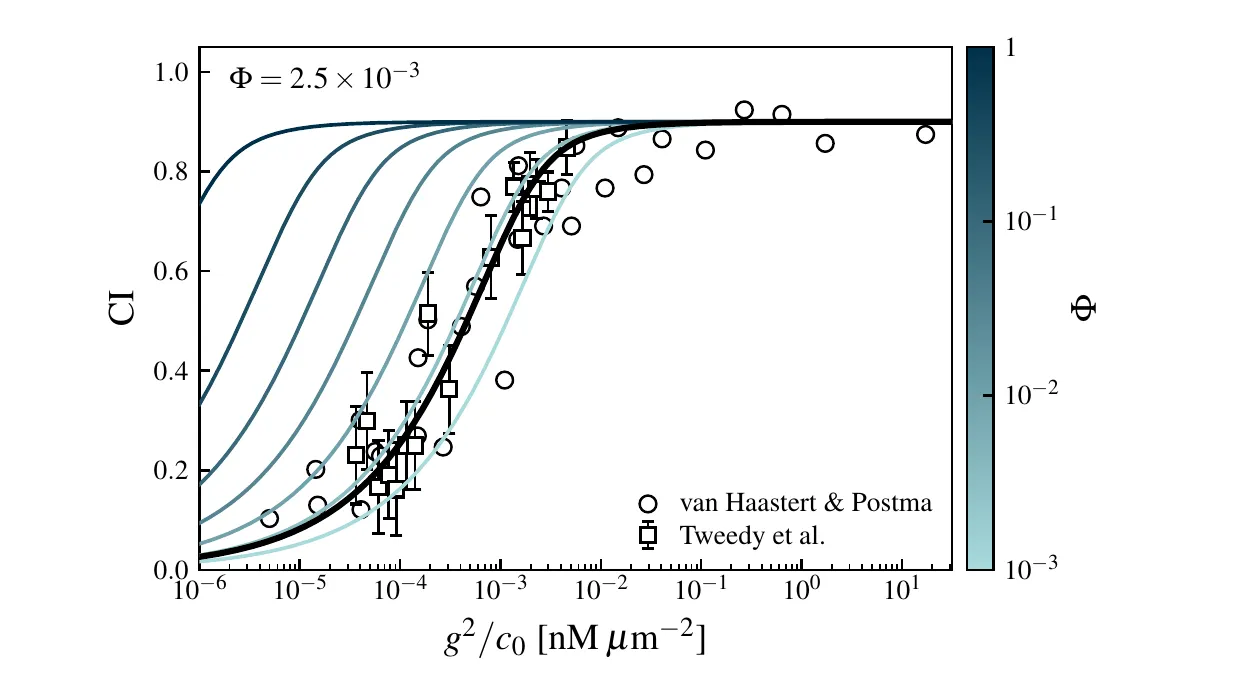
Alineación medida de las células de Dictyostelium con el gradiente (símbolos, procedentes de dos estudios anteriores) frente a la intensidad de la señal, con el mejor ajuste (negro, fracción de captación del 0,25 %) y curvas para captaciones más altas (azul). — Figura 3, Alonso et al. (2026), arXiv:2611.14145.
En los umbrales de detección de estos experimentos, eso supone de decenas a cientos de moléculas, unas 810 en la concentración más alta. Y el coste energético es pequeño: una célula así funciona con aproximadamente de 100 millones a 1.000 millones de moléculas de ATP por segundo, la moneda energética de la célula, de las que alrededor del 1 al 5 % se dedica a la detección. Incluso con una señalización costosa, las moléculas que absorbe cuestan, como mucho, alrededor del 1 % de esa asignación. Lo que limita a Dictyostelium es el número de moléculas que cuenta, no la energía que gasta.
Reducir el gradiente a la mitad, cuadruplicar el recuento
¿Cuántas moléculas necesita una célula para alinearse casi perfectamente con un gradiente? Con señales intensas, la respuesta depende solo de la diferencia relativa de concentración a lo largo de la célula, no de la rapidez con que se difunden las moléculas ni del tiempo durante el que la célula escucha. Si esa diferencia se reduce a la mitad, la célula necesita cuatro veces más moléculas. En los experimentos con Dictyostelium, eso va desde unos pocos cientos de moléculas en los gradientes más pronunciados hasta unas 100.000 en los más suaves.
Los autores sugieren que lo que realmente impide a las células absorber más no es la energía, sino otras consecuencias, como agotar una señal de la que también dependen sus vecinas. También predicen que una bacteria nadadora, que dispone de menos tiempo para promediar sus mediciones que una célula reptante como Dictyostelium, debería necesitar una proporción mayor de la captación máxima para orientarse.