细胞追踪气味要付出什么代价
细胞时时刻刻都在追踪化学踪迹。免疫细胞追击感染,胚胎细胞找到自己的位置,微生物寻觅食物。它们靠的是感知梯度:一侧的浓度比另一侧略高一些。为了测量梯度,细胞必须用表面的受体捕获周围的一些分子,而这些捕获是随机的。它计数的分子越少,它的估计噪声就越大。
物理学家早就知道细胞所能达到的最佳精度。一个捕获并吞下每一个接触到它的分子的细胞,即完美吸收体,计数最多,估计也最准。但吞下和处理分子需要消耗能量。那么,真实的细胞能多接近这个极限,又要为此付出什么代价?
只吞下部分感知到的分子的细胞
Albert Alonso(奥尔堡大学,哥本哈根)、Julius Kirkegaard(哥本哈根大学)和Robert Endres(伦敦帝国理工学院)把细胞建模为一个球体,它只吸收到达其表面的一部分分子。一个极端是完美的反射体:它什么也不吸收,与周围环境保持平衡,也得不到任何信息。另一个极端则是完美吸收体。
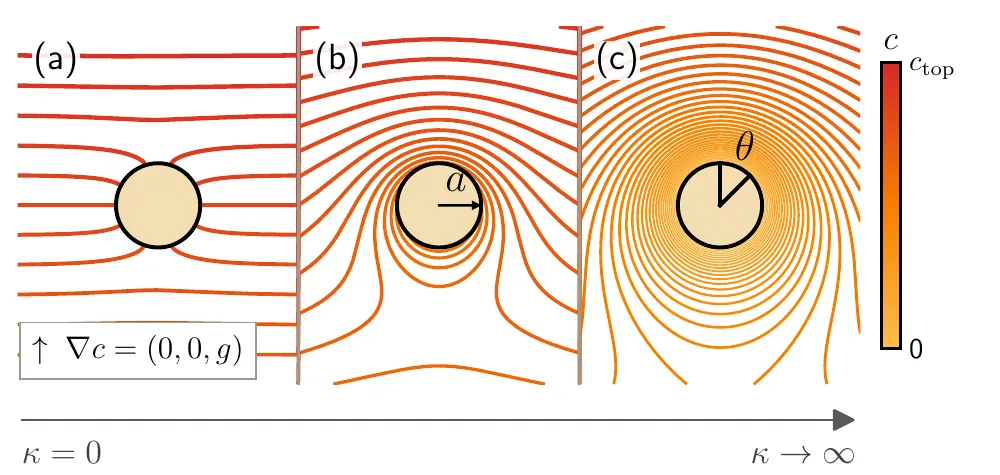
浓度梯度中的一个细胞(圆),从完美反射体(a)到部分吸收体(b)再到完美吸收体(c):它吸收得越多,周围的分子就被消耗得越多。——图1,Alonso等(2026),arXiv:2611.14145。
他们用摄取分数来描述细胞:即它吸收的量占完美吸收体吸收量的比例。他们的公式把这一分数、被吸收的分子数以及梯度估计的准确度精确地联系在一起。
前后问题
测量浓度只需要计数。测量梯度还需要分辨前后:比较到达每一侧的分子各有多少。这就带来了一个惩罚因子,它取决于细胞吸收的强弱。对于弱吸收体,这个因子为4,对于完美吸收体则降到1,因此弱吸收的细胞要达到同样的精度,最多需要四倍的分子。实际上,在作者为下文所研究的细胞推断出的摄取水平下,这个因子始终接近4。
每个分子的代价
细胞吞下并处理的每一个分子都有不可避免的代价,物理学家用熵的产生来衡量它。作者把这一代价分为两部分。第一部分是细胞内部记录每次捕获的化学机器。第二部分无法避免:随着细胞消耗周围环境中的分子,每个分子都必须“落入”细胞周围的耗竭区。
对于弱吸收体,第二部分代价很小,但随着细胞接近完美吸收体,它会无限增长,因为完美吸收体表面的浓度会降为零。因此,完美吸收体永远无法用有限的能量达到。不过,这种增长很缓慢:对于适中的信号传递成本,即每次捕获一个化学反应,对于更高的成本更是如此,在细胞吸收到最大值的89%之前,输运在总开销中所占的比例都低于10%。
远低于极限的爬行细胞
随后,团队把目光转向Dictyostelium,一种朝化学信号爬行的细胞。他们用自己的公式拟合已发表的、关于这些细胞与梯度对齐程度的测量数据,得出摄取分数为0.25%:Dictyostelium只吸收了它本可吸收量的四分之一个百分点。
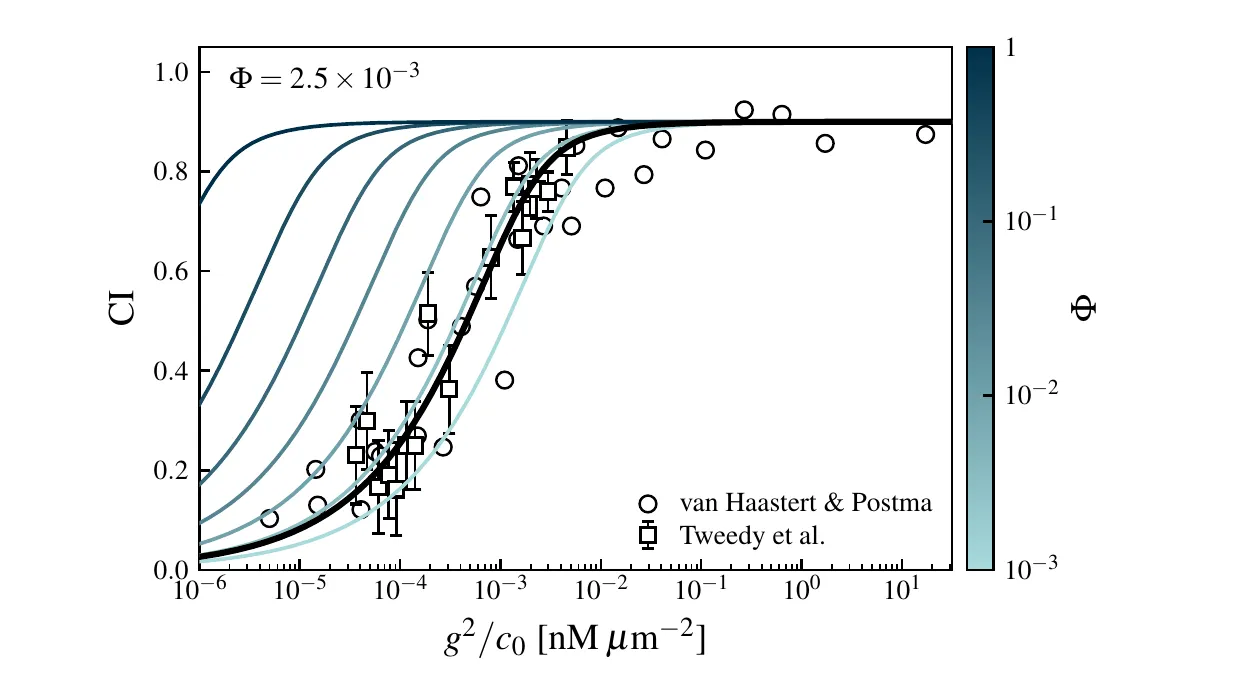
Dictyostelium细胞与梯度的实测对齐程度(符号,来自两项早期研究)与信号强度的关系,以及最佳拟合(黑色,摄取分数0.25%)和对应更高摄取的曲线(蓝色)。——图3,Alonso等(2026),arXiv:2611.14145。
在这些实验的检测阈值下,这意味着几十到几百个分子,在最高浓度下约为810个。而且能量代价很小:这样一个细胞每秒消耗约1亿到10亿个ATP分子(ATP是细胞的能量货币),其中约1%到5%用于感知。即使信号传递成本高昂,它所吸收的分子最多也只占这份配额的约1%。限制Dictyostelium的是它计数的分子数量,而不是它消耗的能量。
梯度减半,计数翻四倍
一个细胞需要多少分子,才能与梯度几乎完美地对齐?在强信号中,答案只取决于细胞两端浓度的相对差异,而与分子扩散的快慢或细胞聆听的时长无关。把这一差异减半,细胞就需要四倍的分子。对于Dictyostelium实验,所需分子数从最陡梯度下的几百个到最平缓梯度下的约100,000个不等。
作者认为,真正阻止细胞吸收更多分子的并不是能量,而是其他后果,比如耗尽邻近细胞同样依赖的信号。他们还预测,游动的细菌比Dictyostelium这样的爬行细胞用于平均测量结果的时间更少,因此需要更高比例的最大摄取量才能找到方向。