O QUE UMA CÉLULA PAGA PARA SEGUIR UM CHEIRO
As células seguem trilhas químicas o tempo todo. Células imunológicas perseguem infecções, células embrionárias encontram seu lugar, micróbios caçam alimento. Elas fazem isso detectando um gradiente: uma concentração um pouco maior de um lado do que do outro. Para medi-lo, uma célula precisa capturar algumas das moléculas ao seu redor com receptores em sua superfície, e essas capturas são aleatórias. Quanto menos moléculas ela conta, mais ruidosa é sua estimativa.
Os físicos conhecem há muito tempo a melhor precisão que uma célula pode alcançar. Uma célula que captura e engole cada molécula que a toca, um absorvedor perfeito, é a que mais conta e a que melhor estima. Mas engolir e processar moléculas custa energia. Então, quão perto desse limite as células reais chegam, e quanto isso lhes custa?
Uma célula que engole parte do que detecta
Albert Alonso (Universidade de Aalborg, Copenhague), Julius Kirkegaard (Universidade de Copenhague) e Robert Endres (Imperial College London) modelaram uma célula como uma esfera que absorve apenas parte das moléculas que chegam à sua superfície. Num extremo, um refletor perfeito não absorve nada, permanece em equilíbrio com o ambiente e não aprende nada. No outro está o absorvedor perfeito.
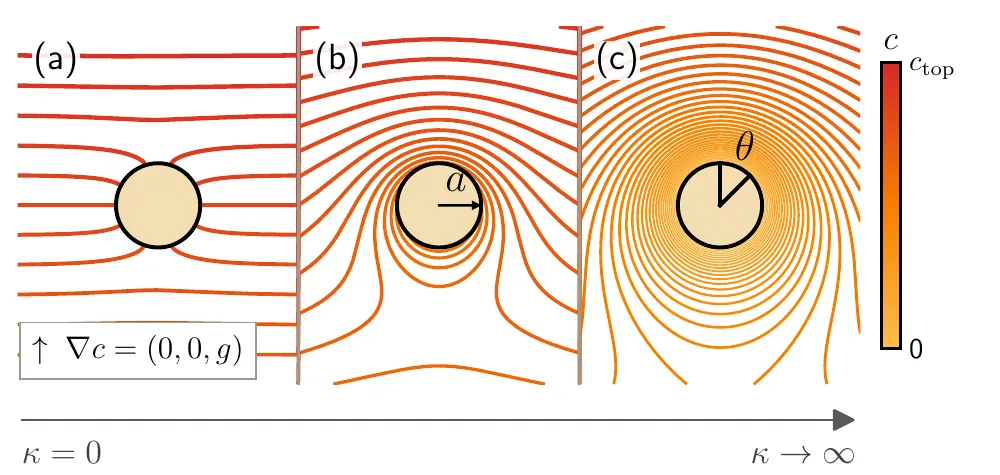
Uma célula (círculo) num gradiente de concentração, de um refletor perfeito (a) a um absorvedor parcial (b) e a um absorvedor perfeito (c): quanto mais ela absorve, mais esgota as moléculas ao seu redor. — Figura 1, Alonso et al. (2026), arXiv:2611.14145.
Eles descrevem uma célula por sua fração de captação (uptake fraction): a parte que ela absorve do que um absorvedor perfeito absorveria. Suas fórmulas ligam exatamente essa fração, o número de moléculas absorvidas e a precisão da estimativa do gradiente.
O problema da frente e de trás
Medir uma concentração exige apenas contar. Medir um gradiente exige também distinguir a frente de trás: comparar quantas moléculas chegam de cada lado. Isso acrescenta um fator de penalidade, que depende de quão fortemente a célula absorve. Ele vale 4 para um absorvedor fraco e cai para 1 para um absorvedor perfeito; assim, uma célula que absorve pouco precisa de até quatro vezes mais moléculas para a mesma precisão. Na prática, na captação que os autores deduzem para a célula estudada mais adiante, o fator fica próximo de 4.
O preço de cada molécula
Cada molécula que uma célula engole e processa tem um custo inevitável, que os físicos medem como a produção de entropia. Os autores dividem esse custo em dois. A primeira parte é a maquinaria química dentro da célula que registra cada captura. A segunda é inevitável: à medida que a célula esgota o ambiente ao redor, cada molécula precisa “cair” na zona empobrecida que a cerca.
Esse segundo custo é pequeno para um absorvedor fraco, mas cresce sem limite à medida que a célula se aproxima do absorvedor perfeito, em que a concentração em sua superfície cai a zero. O absorvedor perfeito, portanto, nunca pode ser alcançado com uma quantidade finita de energia. O crescimento, porém, é lento: para um custo modesto de sinalização, uma reação química por captura, e mais ainda para um custo mais alto, o transporte fica abaixo de 10% da conta até que a célula absorva 89% do máximo.
Uma célula rastejante muito abaixo do limite
A equipe então se voltou para Dictyostelium, uma célula que rasteja em direção a sinais químicos. Ajustando sua fórmula a medições publicadas de quão bem essas células se alinham com gradientes, os pesquisadores encontram uma fração de captação de 0,25%: Dictyostelium absorve apenas um quarto de um por cento do que poderia.
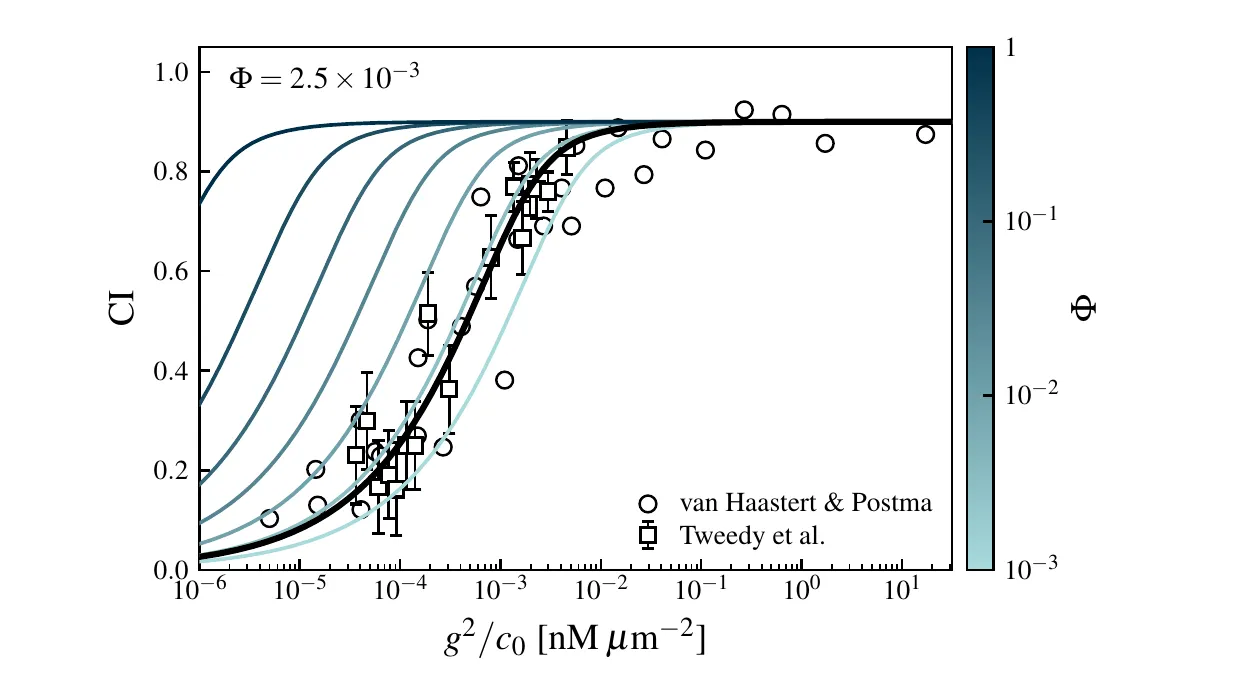
Alinhamento medido de células de Dictyostelium com o gradiente (símbolos, de dois estudos anteriores) em função da intensidade do sinal, com o melhor ajuste (preto, fração de captação de 0,25%) e curvas para captações maiores (azul). — Figura 3, Alonso et al. (2026), arXiv:2611.14145.
Nos limiares de detecção desses experimentos, isso significa dezenas a centenas de moléculas, cerca de 810 na concentração mais alta. E o custo energético é pequeno: uma célula dessas funciona com aproximadamente 100 milhões a 1 bilhão de moléculas de ATP por segundo, a moeda energética da célula, das quais cerca de 1 a 5% são dedicadas à detecção. Mesmo com uma sinalização cara, as moléculas que ela absorve custam, no pior caso, cerca de 1% dessa cota. O que limita Dictyostelium é o número de moléculas que ela conta, não a energia que gasta.
Reduza o gradiente à metade, quadruplique a contagem
De quantas moléculas uma célula precisa para se alinhar quase perfeitamente com um gradiente? Com sinais fortes, a resposta depende apenas da diferença relativa de concentração de um lado a outro da célula, não da velocidade com que as moléculas se difundem nem do tempo durante o qual a célula escuta. Reduza essa diferença à metade e a célula precisará de quatro vezes mais moléculas. Para os experimentos com Dictyostelium, isso vai de algumas centenas de moléculas nos gradientes mais íngremes a cerca de 100.000 nos mais suaves.
Os autores sugerem que o que realmente impede as células de absorver mais não é a energia, mas outras consequências, como esgotar um sinal do qual suas vizinhas também dependem. Eles também preveem que uma bactéria nadadora, que tem menos tempo para fazer a média de suas medições do que uma célula rastejante como Dictyostelium, deveria precisar de uma parte maior da captação máxima para encontrar seu caminho.