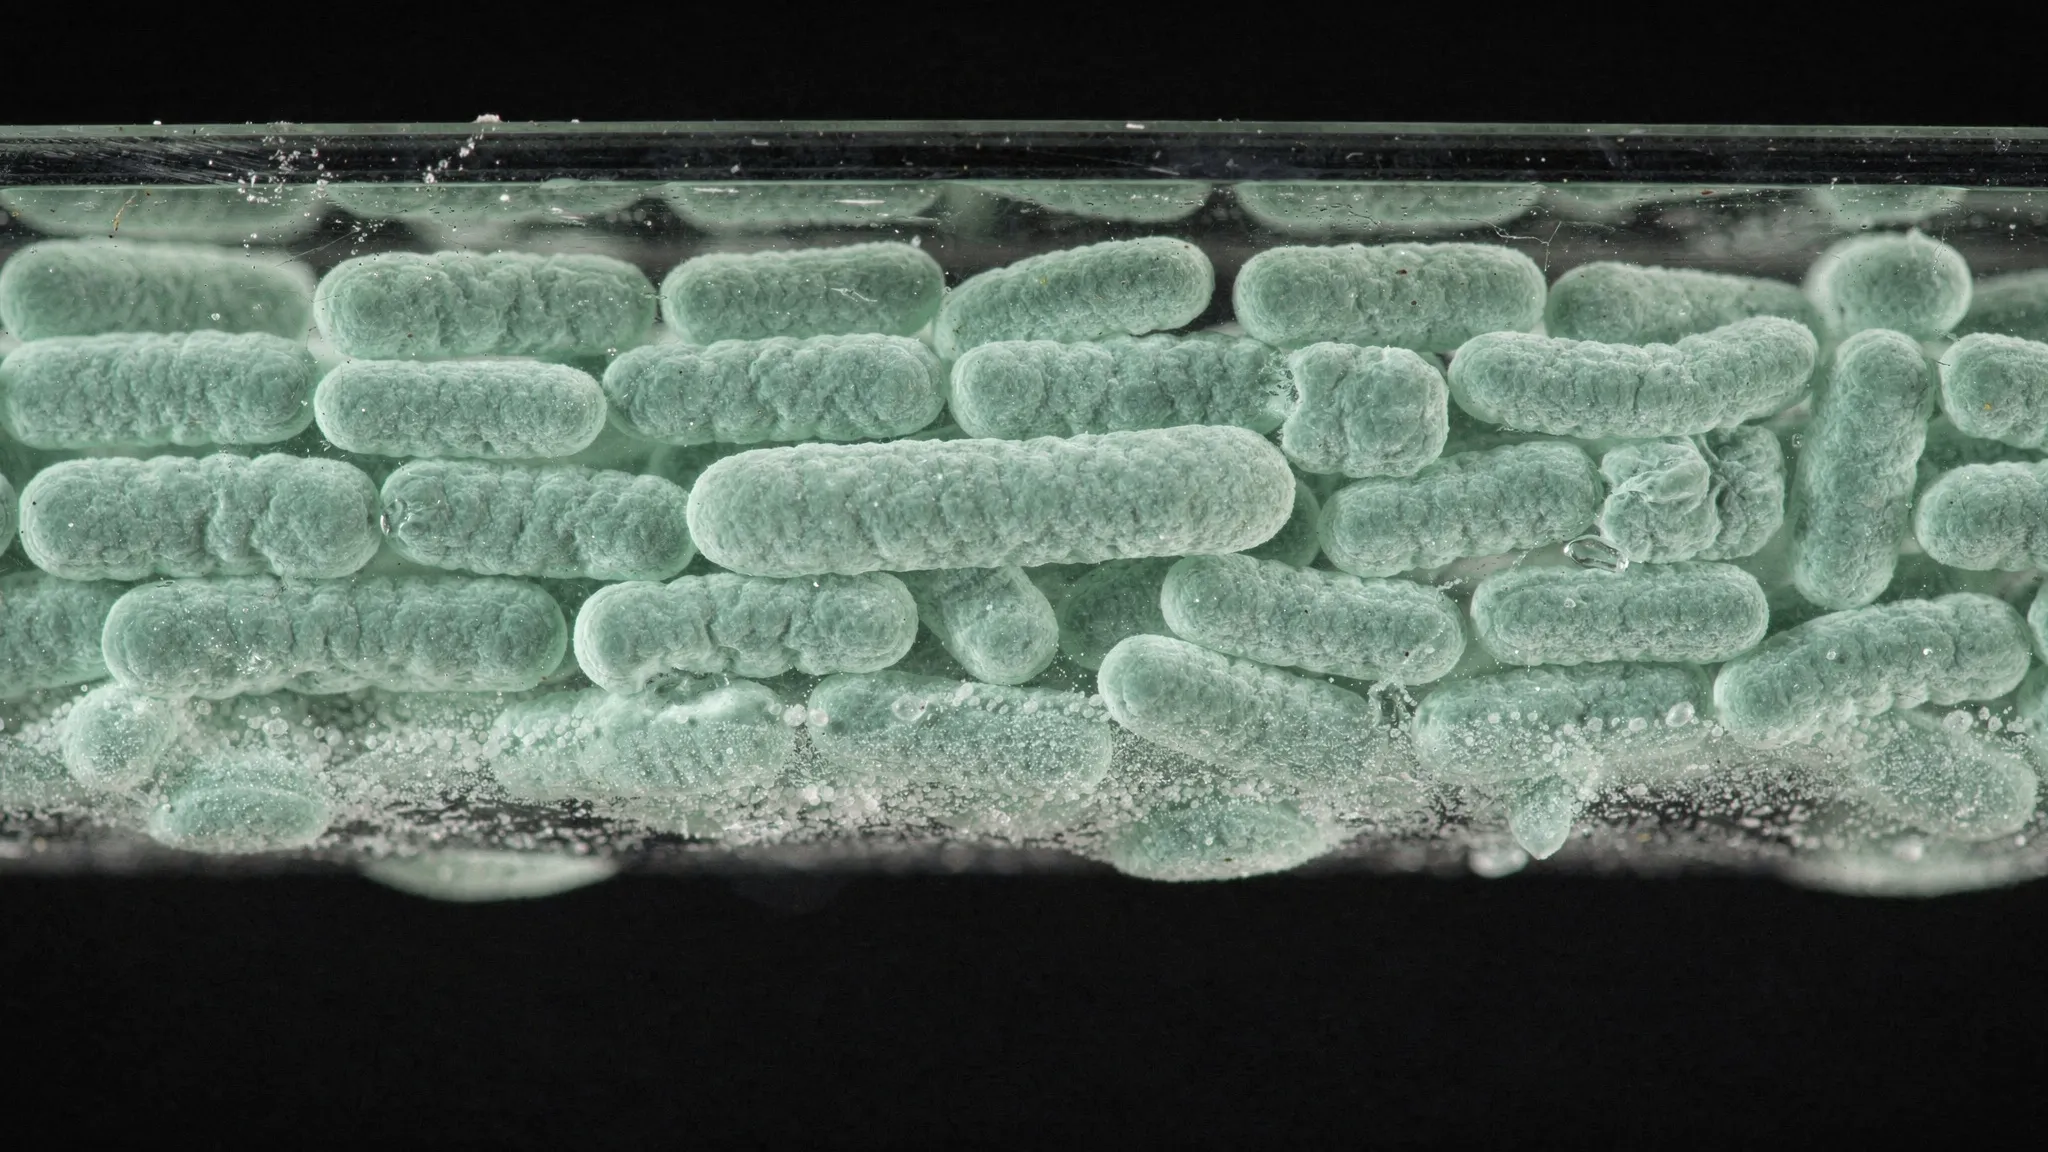
LAS BACTERIAS COMPRIMIDAS SE FRENAN Y LUEGO SE ADAPTAN
Las bacterias viven a menudo en espacios estrechos. En los suelos, en los tejidos y la mucosidad de sus huéspedes, en los sedimentos, están presionadas, adheridas a superficies y apiñadas. Se sabe que el estrés mecánico cambia su manera de crecer y dividirse, y que un confinamiento fuerte puede deformar las células, retrasar su división o matarlas. Pero la mayoría de los estudios observan células que ya se han adaptado a su vida confinada. Lo que ocurre en las horas inmediatamente posteriores al cambio sigue en gran medida sin explorar.
Chenyu Jin, Anupam Sengupta y sus colegas, de la Universidad de Luxemburgo, la Universidad Heinrich Heine de Düsseldorf y otras instituciones, filmaron ese cambio célula a célula.
Del caldo al vidrio y al gel
El equipo tomó células de Escherichia coli que crecían libremente en un medio de cultivo líquido y las trasladó a tres entornos de fuerza mecánica creciente: adheridas al vidrio en el mismo líquido; presionadas entre el vidrio y un gel blando (agarosa al 1,5 %); y presionadas entre el vidrio y un gel rígido (agarosa al 6 %). A 30 °C, un microscopio fotografió las colonias en crecimiento cada 2 minutos durante 3 a 7 horas, y un programa siguió cada célula —su longitud, su nacimiento y su división— generación tras generación.
Una ralentización inmediata
En cultivo líquido, las células se alargaban a un ritmo de unos 0,032 por minuto. En la primera generación confinada, ese ritmo cayó a 0,019 en las células adheridas al vidrio, a 0,018 bajo el gel blando y a 0,013 bajo el gel rígido: unas 2,5 veces más despacio. Las células siguieron creciendo, pero el cambio por sí solo bastó para desencadenar una respuesta marcada, incluso sin gel. Colocar bacterias sobre vidrio o bajo un gel, algo que a menudo se considera una simple condición para obtener imágenes, es en realidad una perturbación física.
Después, las células se recuperaron, de forma aproximadamente exponencial, a lo largo de varias generaciones, sobre todo en las tres o cuatro primeras. Un confinamiento más fuerte implicaba una caída inicial más profunda y una velocidad final más baja. A partir de la segunda generación, alrededor del 7 % de las células (en superficie) no se dividió a tiempo y siguió alargándose hasta formar filamentos, una señal conocida de estrés.
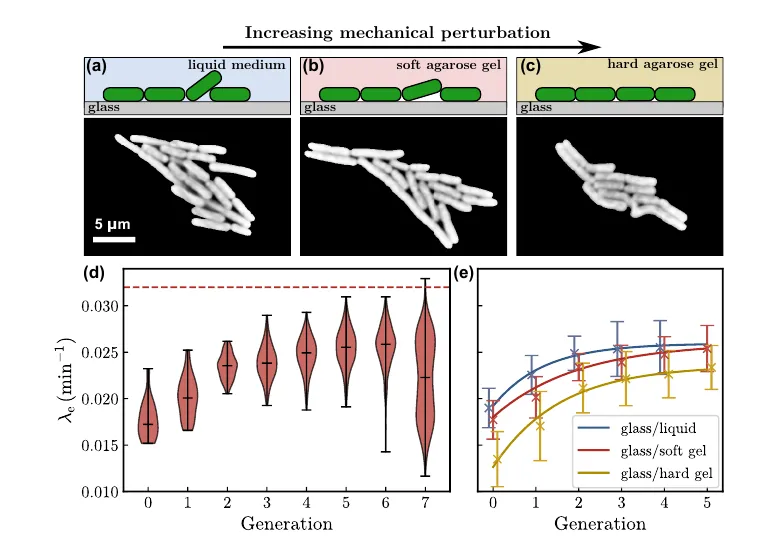
Crecimiento tras el cambio: colonias en los tres entornos (arriba), tasa de alargamiento por generación bajo gel blando, con el valor del cultivo líquido como línea discontinua (d), y curvas de recuperación en los tres entornos (e). — Figura 2, Jin et al. (2026), arXiv:2611.18273.
Tres maneras de decidir cuándo dividirse
¿Cómo sabe una bacteria cuándo partirse en dos? Los investigadores describen tres reglas idealizadas. Un medidor de tamaño (sizer) se divide al alcanzar un tamaño determinado. Un temporizador (timer) se divide al cabo de un tiempo determinado. Un sumador (adder) añade una longitud más o menos constante entre el nacimiento y la división, sea cual sea su tamaño al nacer. En crecimiento estable, muchas especies bacterianas se comportan como sumadores.
Cada regla deja su propia firma en los datos. Con un sumador, la longitud que añade una célula no depende de su longitud al nacer. Con un temporizador, las células que nacen más grandes añaden más. El equipo construyó un modelo informático de células que se dividen, con ruido y una tasa de crecimiento que se recupera como en las mediciones, para leer estas firmas de forma fiable.
Un breve paso al temporizador
Adheridas al vidrio en líquido, las células se comportaron como sumadores todo el tiempo. Bajo el gel blando, la primera generación parecía un temporizador: las células que nacían más largas añadían más longitud, con una pendiente de 1,61 donde un sumador daría cero y un temporizador alrededor de uno. Bajo el gel rígido, esta fase de tipo temporizador pareció durar dos generaciones. El control de tipo sumador estaba presente desde la primera generación sobre vidrio, y volvió en la segunda bajo el gel blando y en la tercera bajo el gel rígido.
¿Podría la lenta recuperación del crecimiento producir por sí sola estas firmas? Las simulaciones dicen que no: con cualquiera de las tres reglas mantenida fija, la recuperación del crecimiento no puede reproducir los datos. De los cambios probados, solo un paso de un control de tipo temporizador a uno de tipo sumador encaja con las firmas medidas.
Un tamaño estable
A pesar de esta reorganización, las células recién nacidas mantuvieron aproximadamente el mismo tamaño medio de una generación a otra. Sus tamaños se dispersaron un poco más durante un tiempo, pero la distribución conservó la misma forma y se mantuvo acotada. Las simulaciones muestran por qué: una fase de temporizador que dura solo unas pocas generaciones ensancha brevemente los tamaños sin dejar que se desboquen.
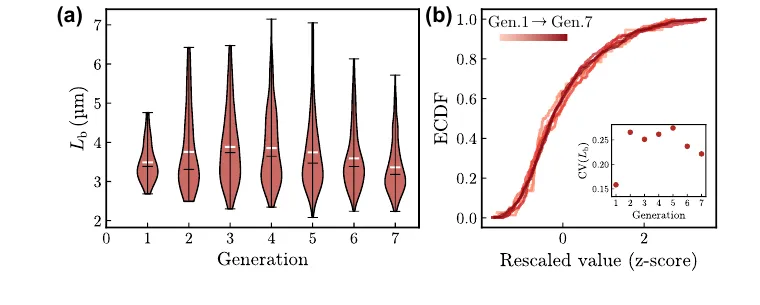
Longitud al nacer por generación bajo gel blando (a) y distribuciones reescaladas de las generaciones 1 a 7, que colapsan en una sola curva (b). — Figura 3, Jin et al. (2026), arXiv:2611.18273.
Dos relojes
El detalle más llamativo es el momento en que ocurre. El control de tipo sumador vuelve antes de que el crecimiento se haya recuperado del todo: la manera en que las células deciden dividirse y la velocidad a la que crecen se relajan en dos escalas de tiempo diferentes. El estudio abarca una sola especie y solo las primeras generaciones tras el cambio, antes de que las colonias se apilen en varias capas; es una prepublicación. Para los autores, muestra que el control del tamaño de una bacteria no es un ajuste fijo, sino un proceso que puede ceder bajo presión y luego recuperarse de golpe.