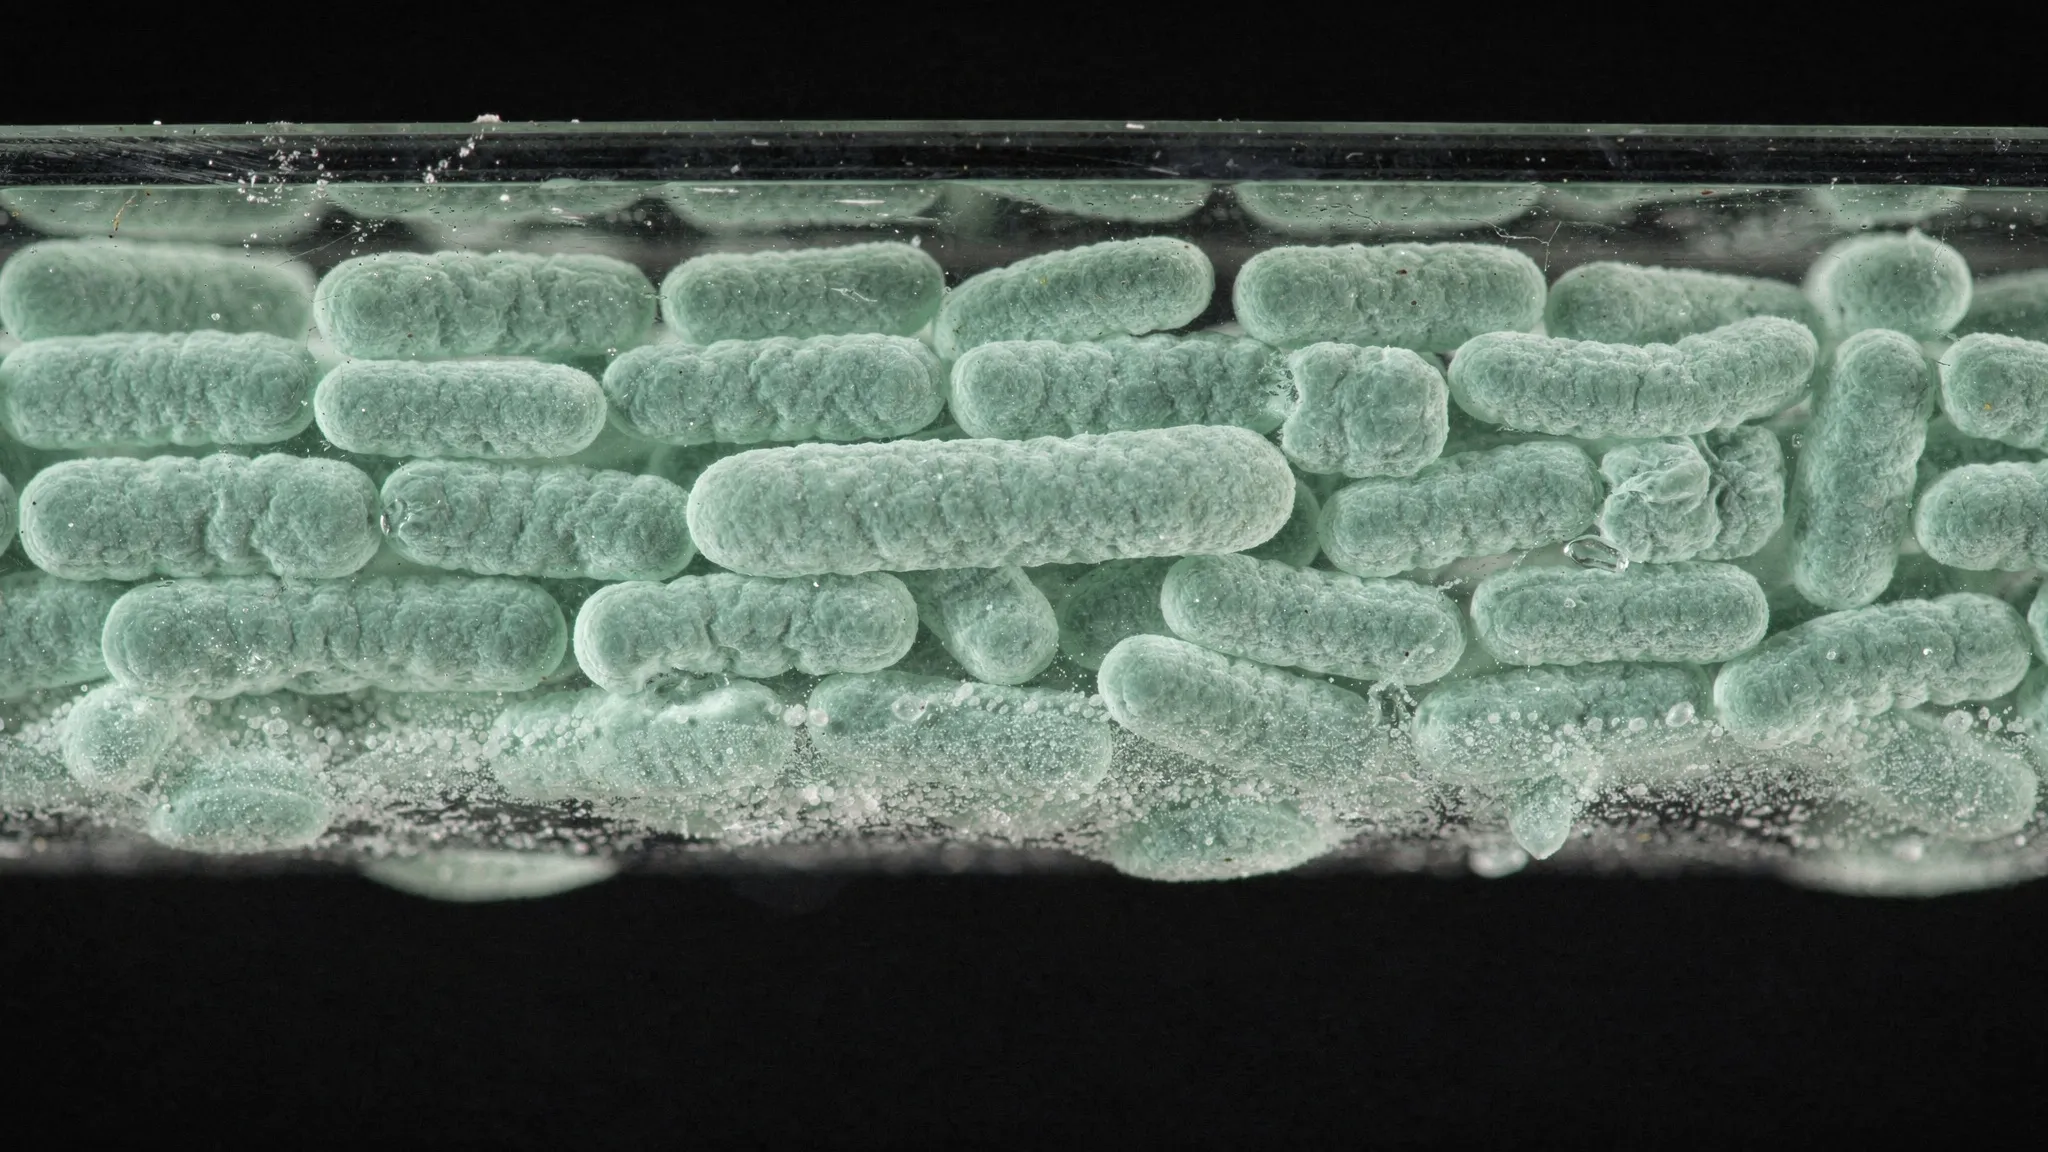
À L'ÉTROIT, LES BACTÉRIES RALENTISSENT, PUIS S'ADAPTENT
Les bactéries vivent souvent à l’étroit. Dans les sols, les tissus et le mucus d’un hôte, les sédiments, elles sont pressées, collées à des surfaces, entassées. On sait que le stress mécanique change leur façon de croître et de se diviser, et qu’un fort confinement peut déformer les cellules, retarder leur division ou les tuer. Mais la plupart des études regardent des cellules déjà adaptées à leur vie confinée. Ce qui se passe dans les heures qui suivent le changement restait largement inexploré.
Chenyu Jin, Anupam Sengupta et leurs collègues, de l’Université du Luxembourg, de l’Université Heinrich-Heine de Düsseldorf et d’autres institutions, ont filmé ce changement cellule par cellule.
Du bouillon au verre et au gel
L’équipe a pris des cellules d’Escherichia coli qui poussaient librement dans un milieu de culture liquide et les a placées dans trois situations de contrainte mécanique croissante : collées au verre dans le même liquide ; pressées entre le verre et un gel mou (agarose à 1,5 %) ; et pressées entre le verre et un gel rigide (agarose à 6 %). À 30 °C, un microscope a photographié les colonies en croissance toutes les 2 minutes pendant 3 à 7 heures, et un logiciel a suivi chaque cellule, sa longueur, sa naissance et sa division, génération après génération.
Un ralentissement immédiat
En culture liquide, les cellules s’allongeaient à environ 0,032 par minute — un taux qui mesure la fraction de sa propre longueur qu’une cellule gagne chaque minute. À la génération 0 — les cellules déjà là au début du film —, ce taux est tombé à 0,019 pour les cellules collées au verre, 0,018 sous le gel mou et 0,013 sous le gel rigide — environ 2,5 fois moins vite. Les cellules continuaient de pousser, mais le changement suffisait à déclencher une réponse marquée, même sans gel. Poser des bactéries sur du verre ou sous un gel, souvent vu comme une simple condition d’observation au microscope, est en réalité une perturbation physique.
Les cellules ont ensuite récupéré, à peu près exponentiellement, sur plusieurs générations, surtout pendant les trois ou quatre premières. Un confinement plus fort signifiait une chute initiale plus profonde et une vitesse finale plus basse. Dès la deuxième génération, environ 7 % des cellules (en part de la surface de la colonie) ne se sont pas divisées à temps et ont continué de s’allonger en filaments, un signe de stress connu.
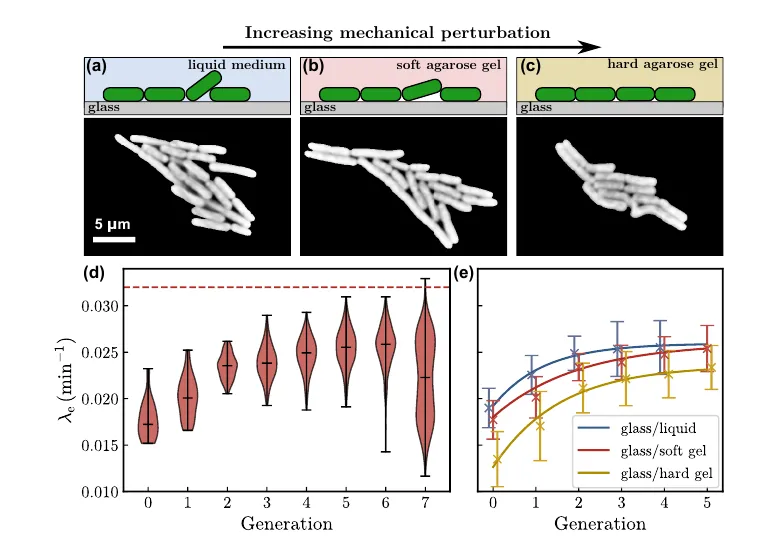
La croissance après le changement : colonies dans les trois situations (en haut), taux d’allongement par génération sous gel mou, avec la valeur en culture liquide en pointillés (d), et courbes de récupération dans les trois situations (e). — Figure 2, Jin et al. (2026), arXiv:2611.18273.
Trois façons de décider quand se diviser
Comment une bactérie sait-elle quand se couper en deux ? On décrit trois règles idéales. Une taille-seuil fait diviser la cellule quand elle atteint une taille donnée. Un minuteur, au bout d’un temps donné. Un additionneur lui fait ajouter une longueur à peu près constante entre sa naissance et sa division, quelle que soit sa taille à la naissance. En croissance stable, beaucoup d’espèces de bactéries se comportent en additionneurs.
Chaque règle laisse sa signature dans les données. Avec un additionneur, la longueur ajoutée ne dépend pas de la longueur à la naissance. Avec un minuteur, les cellules nées plus grandes ajoutent davantage. L’équipe a construit un modèle informatique de cellules qui se divisent, avec du bruit et une vitesse de croissance qui récupère comme mesuré, pour lire ces signatures de façon fiable.
Un passage éclair au minuteur
Collées au verre dans le liquide, les cellules se sont comportées en additionneurs du début à la fin. Sous le gel mou, la première génération ressemblait à un minuteur : les cellules nées plus longues ajoutaient plus de longueur. Tracée en fonction de la longueur à la naissance, la longueur ajoutée montait avec une pente de 1,61. Cette estimation est assez incertaine pour rester compatible avec la pente d’environ un d’un minuteur, et nettement différente du zéro d’un additionneur. Sous le gel rigide, cette phase de type minuteur a semblé durer deux générations. Le contrôle de type additionneur était en place dès la première génération sur le verre, et il est revenu à la deuxième sous le gel mou et à la troisième sous le gel rigide.
La lente récupération de la croissance pourrait-elle à elle seule produire ces signatures ? Les simulations répondent non : avec l’une des trois règles maintenue fixe, la récupération de la croissance ne reproduit pas les données. Parmi les changements testés, seul un passage d’un contrôle de type minuteur à un contrôle de type additionneur colle aux signatures mesurées.
Une taille tenue
Malgré ce remaniement, les cellules naissaient à peu près à la même taille moyenne d’une génération à l’autre. Leurs tailles se sont un peu plus dispersées un temps, mais la distribution a gardé la même forme et est restée bornée. Les simulations montrent pourquoi : une phase de minuteur qui ne dure que quelques générations élargit brièvement les tailles sans les laisser s’emballer.
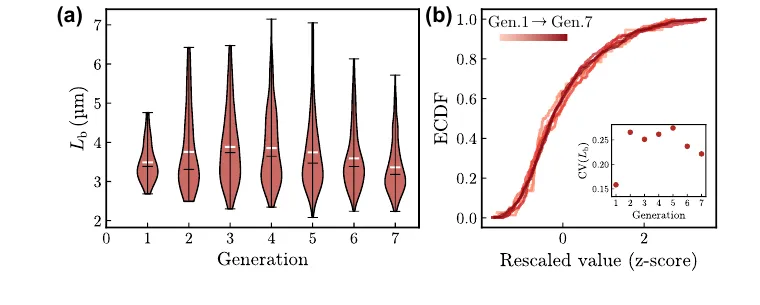
Longueur à la naissance par génération sous gel mou (a) et distributions normalisées des générations 1 à 7, qui se superposent sur une même courbe (b). — Figure 3, Jin et al. (2026), arXiv:2611.18273.
Deux horloges
Le détail le plus frappant tient au calendrier. Le contrôle de type additionneur revient avant que la croissance soit complètement rétablie : la façon dont les cellules décident de se diviser et la vitesse à laquelle elles poussent se relâchent sur deux échelles de temps différentes. L’étude porte sur une seule espèce et sur les premières générations après le changement, avant que les colonies ne s’empilent en plusieurs couches ; c’est une prépublication. Pour les auteurs, elle montre que le contrôle de taille d’une bactérie n’est pas un réglage figé, mais un processus qui peut plier sous la pression, puis se remettre en place.