அழுத்தப்பட்ட பாக்டீரியாக்கள் மெதுவாகின்றன, பின்னர் தகவமைகின்றன
பாக்டீரியாக்கள் பெரும்பாலும் நெருக்கடியான இடங்களில் வாழ்கின்றன. மண்ணில், ஓம்புயிரித் திசுக்களிலும் சளியிலும், படிவுகளில், அவை அழுத்தப்படுகின்றன, பரப்புகளில் ஒட்டிக்கொள்கின்றன, நெரிசலில் சிக்குகின்றன. இயந்திரவியல் அழுத்தம் அவை வளரும், பிரியும் விதத்தை மாற்றுகிறது என்பது அறியப்பட்டது; வலுவான அடைப்பு செல்களை உருக்குலைக்கலாம், பிரிவைத் தாமதப்படுத்தலாம், அல்லது அவற்றைக் கொல்லலாம். ஆனால் பெரும்பாலான ஆய்வுகள், அடைக்கப்பட்ட வாழ்க்கைக்கு ஏற்கெனவே தகவமைந்துவிட்ட செல்களையே கவனிக்கின்றன. மாற்றத்துக்குப் பின் உடனடியாக வரும் மணிநேரங்களில் என்ன நிகழ்கிறது என்பது பெருமளவு ஆராயப்படாமலே இருந்துவருகிறது.
லக்சம்பர்க் பல்கலைக்கழகம் (University of Luxembourg), டுசல்டோர்ஃப் ஹைன்ரிச் ஹைனே பல்கலைக்கழகம் (Heinrich Heine University Düsseldorf), பிற நிறுவனங்கள் ஆகியவற்றைச் சேர்ந்த Chenyu Jin, Anupam Sengupta மற்றும் சக ஆய்வாளர்கள், அந்த மாற்றத்தை ஒவ்வொரு செல்லாகப் படம்பிடித்தனர்.
திரவ வளர்ப்பூடகத்திலிருந்து கண்ணாடிக்கும் ஜெல்லுக்கும்
ஒரு திரவ வளர்ப்பூடகத்தில் தடையின்றி வளர்ந்துகொண்டிருந்த Escherichia coli செல்களை எடுத்து, இயந்திரவியல் வலிமை அதிகரிக்கும் மூன்று அமைப்புகளுக்குக் குழு அவற்றை மாற்றியது: அதே திரவத்தில் கண்ணாடியில் ஒட்டியவை; கண்ணாடிக்கும் ஒரு மென்மையான ஜெல்லுக்கும் இடையே அழுத்தப்பட்டவை (1.5% அகரோஸ்); கண்ணாடிக்கும் ஒரு கெட்டியான ஜெல்லுக்கும் இடையே அழுத்தப்பட்டவை (6% அகரோஸ்). 30 °C-இல், ஒரு நுண்ணோக்கி வளரும் காலனிகளை 3 முதல் 7 மணிநேரம் வரை ஒவ்வொரு 2 நிமிடத்துக்கும் படம்பிடித்தது; ஒரு மென்பொருள் ஒவ்வொரு செல்லையும், அதன் நீளத்தையும், பிறப்பையும், பிரிவையும், தலைமுறை தலைமுறையாகப் பின்தொடர்ந்தது.
உடனடி வேகக் குறைவு
திரவ வளர்ப்பில், செல்கள் சுமார் நிமிடத்துக்கு 0.032 என்ற வீதத்தில் நீண்டன. அடைப்பின் முதல் தலைமுறையில், அந்த வீதம் கண்ணாடியில் ஒட்டிய செல்களுக்கு 0.019, மென்மையான ஜெல்லின் கீழ் 0.018, கெட்டியான ஜெல்லின் கீழ் 0.013 எனக் குறைந்தது — சுமார் 2.5 மடங்கு மெதுவாக. செல்கள் தொடர்ந்து வளர்ந்தன; ஆனால், எந்த ஜெல்லும் இல்லாமலேயே, அந்த மாற்றம் மட்டுமே ஒரு குறிப்பிடத்தக்க எதிர்வினையைத் தூண்டப் போதுமானதாக இருந்தது. பாக்டீரியாக்களைக் கண்ணாடியின் மீதோ ஜெல்லின் கீழோ வைப்பது, பெரும்பாலும் வெறும் படமாக்கல் நிபந்தனையாகக் கருதப்பட்டாலும், உண்மையில் ஓர் இயற்பியல் இடையூறு (perturbation) ஆகும்.
பின்னர் செல்கள் பல தலைமுறைகளில், ஏறக்குறைய அடுக்குக்குறி (exponential) முறையில், பெரும்பாலும் முதல் மூன்று அல்லது நான்கு தலைமுறைகளுக்குள், மீண்டன. வலுவான அடைப்பு, ஆழமான தொடக்க வீழ்ச்சியையும் குறைவான இறுதி வேகத்தையும் குறித்தது. இரண்டாம் தலைமுறையிலிருந்து, சுமார் 7% செல்கள் (பரப்பின் அடிப்படையில்) உரிய நேரத்தில் பிரியத் தவறி, தொடர்ந்து நீண்டு இழைகளாக (filaments) ஆயின; இது அழுத்தத்தின் (stress) அறியப்பட்ட ஓர் அறிகுறி.
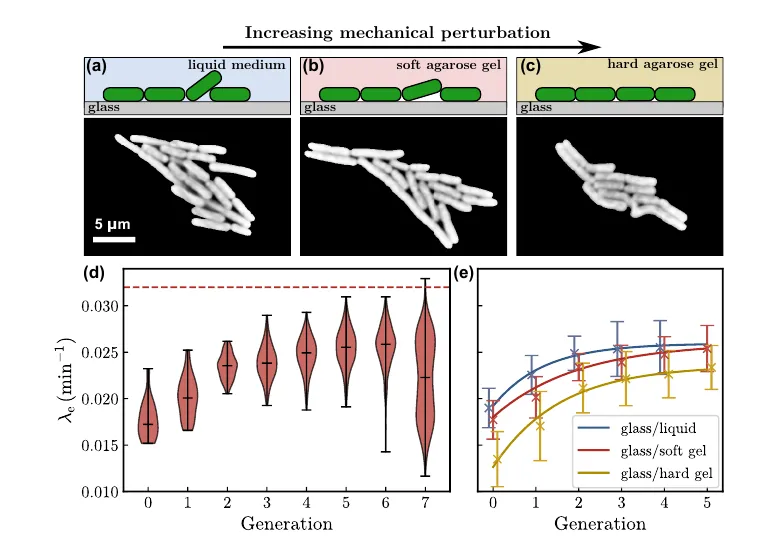
மாற்றத்துக்குப் பின் வளர்ச்சி: மூன்று அமைப்புகளிலும் காலனிகள் (மேலே), மென்மையான ஜெல்லின் கீழ் ஒவ்வொரு தலைமுறைக்குமான நீட்சி வீதம், திரவ வளர்ப்பின் மதிப்பு ஒரு துண்டுக்கோடாக (d), மூன்று அமைப்புகளுக்குமான மீட்சி வளைவுகள் (e). — படம் 2, Jin et al. (2026), arXiv:2611.18273.
பிரியும் நேரத்தைத் தீர்மானிக்க மூன்று வழிகள்
எப்போது பிரிய வேண்டும் என்று ஒரு பாக்டீரியம் எப்படி அறிகிறது? ஆய்வாளர்கள் மூன்று இலட்சிய (idealized) விதிகளை விவரிக்கின்றனர். ஓர் அளவுமானி (sizer) ஒரு குறிப்பிட்ட அளவை எட்டும்போது பிரிகிறது. ஒரு நேரமானி (timer) ஒரு குறிப்பிட்ட நேரத்துக்குப் பிறகு பிரிகிறது. ஒரு கூட்டுமானி (adder), பிறப்பின்போது அதன் அளவு எதுவாக இருந்தாலும், பிறப்புக்கும் பிரிவுக்கும் இடையே ஏறக்குறைய நிலையான ஒரு நீளத்தைச் சேர்க்கிறது. நிலையான வளர்ச்சியில், பல பாக்டீரிய இனங்கள் கூட்டுமானிகளைப் போல நடந்துகொள்கின்றன.
ஒவ்வொரு விதியும் தரவுகளில் தனக்கே உரிய கையொப்பத்தை விட்டுச் செல்கிறது. ஒரு கூட்டுமானியில், ஒரு செல் சேர்க்கும் நீளம் பிறப்பின்போது அதன் நீளத்தைச் சார்ந்திருப்பதில்லை. ஒரு நேரமானியில், பெரிதாகப் பிறக்கும் செல்கள் அதிகமாகச் சேர்க்கின்றன. இந்தக் கையொப்பங்களை நம்பகமாகப் படிக்க, இரைச்சலும், அளக்கப்பட்டதைப் போலவே மீளும் வளர்ச்சி வீதமும் கொண்ட, பிரியும் செல்களின் ஒரு கணினி மாதிரியைக் குழு உருவாக்கியது.
நேரமானிக்கு ஒரு சுருக்கமான மாற்றம்
திரவத்தில் கண்ணாடியில் ஒட்டியிருந்த செல்கள், தொடக்கம் முதல் இறுதி வரை கூட்டுமானிகளைப் போல நடந்துகொண்டன. மென்மையான ஜெல்லின் கீழ், முதல் தலைமுறை ஒரு நேரமானி போலத் தோன்றியது: நீளமாகப் பிறந்த செல்கள் அதிக நீளத்தைச் சேர்த்தன; சாய்வு 1.61, அதேசமயம் ஒரு கூட்டுமானி பூஜ்ஜியத்தையும் ஒரு நேரமானி ஏறக்குறைய ஒன்றையும் தரும். கெட்டியான ஜெல்லின் கீழ், இந்த நேரமானி போன்ற கட்டம் இரண்டு தலைமுறைகள் நீடித்ததாகத் தோன்றியது. கூட்டுமானி போன்ற கட்டுப்பாடு, கண்ணாடியில் முதல் தலைமுறையிலிருந்தே இருந்தது; மென்மையான ஜெல்லின் கீழ் இரண்டாம் தலைமுறையிலும், கெட்டியான ஜெல்லின் கீழ் மூன்றாம் தலைமுறையிலும் அது திரும்பியது.
வளர்ச்சியின் மெதுவான மீட்சி மட்டுமே இந்தக் கையொப்பங்களை உருவாக்க முடியுமா? உருவகப்படுத்துதல்கள் இல்லை என்கின்றன: மூன்று விதிகளில் எதை நிலையாக வைத்தாலும், வளர்ச்சி மீட்சி தரவுகளை மீண்டும் உருவாக்க முடியாது. சோதிக்கப்பட்ட மாற்றங்களில், நேரமானி போன்ற கட்டுப்பாட்டிலிருந்து கூட்டுமானி போன்ற கட்டுப்பாட்டுக்கான ஒரு மாற்றம் மட்டுமே அளக்கப்பட்ட கையொப்பங்களுடன் பொருந்துகிறது.
நிலையாக இருந்த அளவு
இந்த மறுசீரமைப்பு இருந்தபோதும், புதிதாகப் பிறந்த செல்கள் ஒரு தலைமுறையிலிருந்து அடுத்த தலைமுறைக்கு ஏறக்குறைய அதே சராசரி அளவைத் தக்கவைத்தன. அவற்றின் அளவுகள் சிறிது காலம் சற்று அதிகமாகப் பரவின; ஆனால் பரவலின் வடிவம் அப்படியே இருந்தது, அது வரம்புக்குள் நின்றது. ஏன் என்று உருவகப்படுத்துதல்கள் காட்டுகின்றன: சில தலைமுறைகள் மட்டுமே நீடிக்கும் ஒரு நேரமானிக் கட்டம், அளவுகளைச் சுருக்கமாக அகலமாக்குகிறது, ஆனால் அவை கட்டுமீறிப் போக விடுவதில்லை.
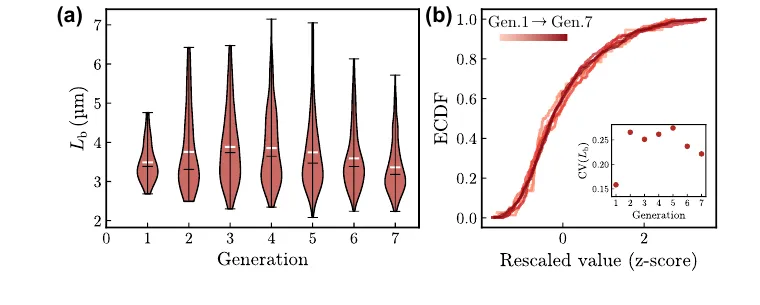
மென்மையான ஜெல்லின் கீழ் ஒவ்வொரு தலைமுறையின் பிறப்பு நீளம் (a), 1 முதல் 7 வரையிலான தலைமுறைகளின் மறுஅளவிடப்பட்ட பரவல்கள் (rescaled distributions), ஒரே வளைவில் ஒன்றுசேர்கின்றன (b). — படம் 3, Jin et al. (2026), arXiv:2611.18273.
இரண்டு கடிகாரங்கள்
மிக வியக்கவைக்கும் விவரம் நேர அமைவுதான். வளர்ச்சி முழுமையாக மீள்வதற்கு முன்பே கூட்டுமானி போன்ற கட்டுப்பாடு திரும்புகிறது: செல்கள் பிரியத் தீர்மானிக்கும் விதமும் அவை வளரும் வேகமும் இரண்டு வெவ்வேறு கால அளவுகளில் தளர்கின்றன. இந்த ஆய்வு ஒரே ஓர் இனத்தையும், காலனிகள் பல அடுக்குகளாகக் குவிவதற்கு முன்பான, மாற்றத்துக்குப் பிந்தைய முதல் தலைமுறைகளையும் மட்டுமே உள்ளடக்குகிறது; இது ஒரு முன்பதிப்பு (preprint). ஆசிரியர்களைப் பொறுத்தவரை, ஒரு பாக்டீரியத்தின் அளவுக் கட்டுப்பாடு ஒரு நிலையான அமைப்பு அல்ல, மாறாக அழுத்தத்தின் கீழ் வளைந்து, பின்னர் மீண்டும் பழைய நிலைக்குத் திரும்பக்கூடிய ஒரு செயல்முறை என்பதை இது காட்டுகிறது.