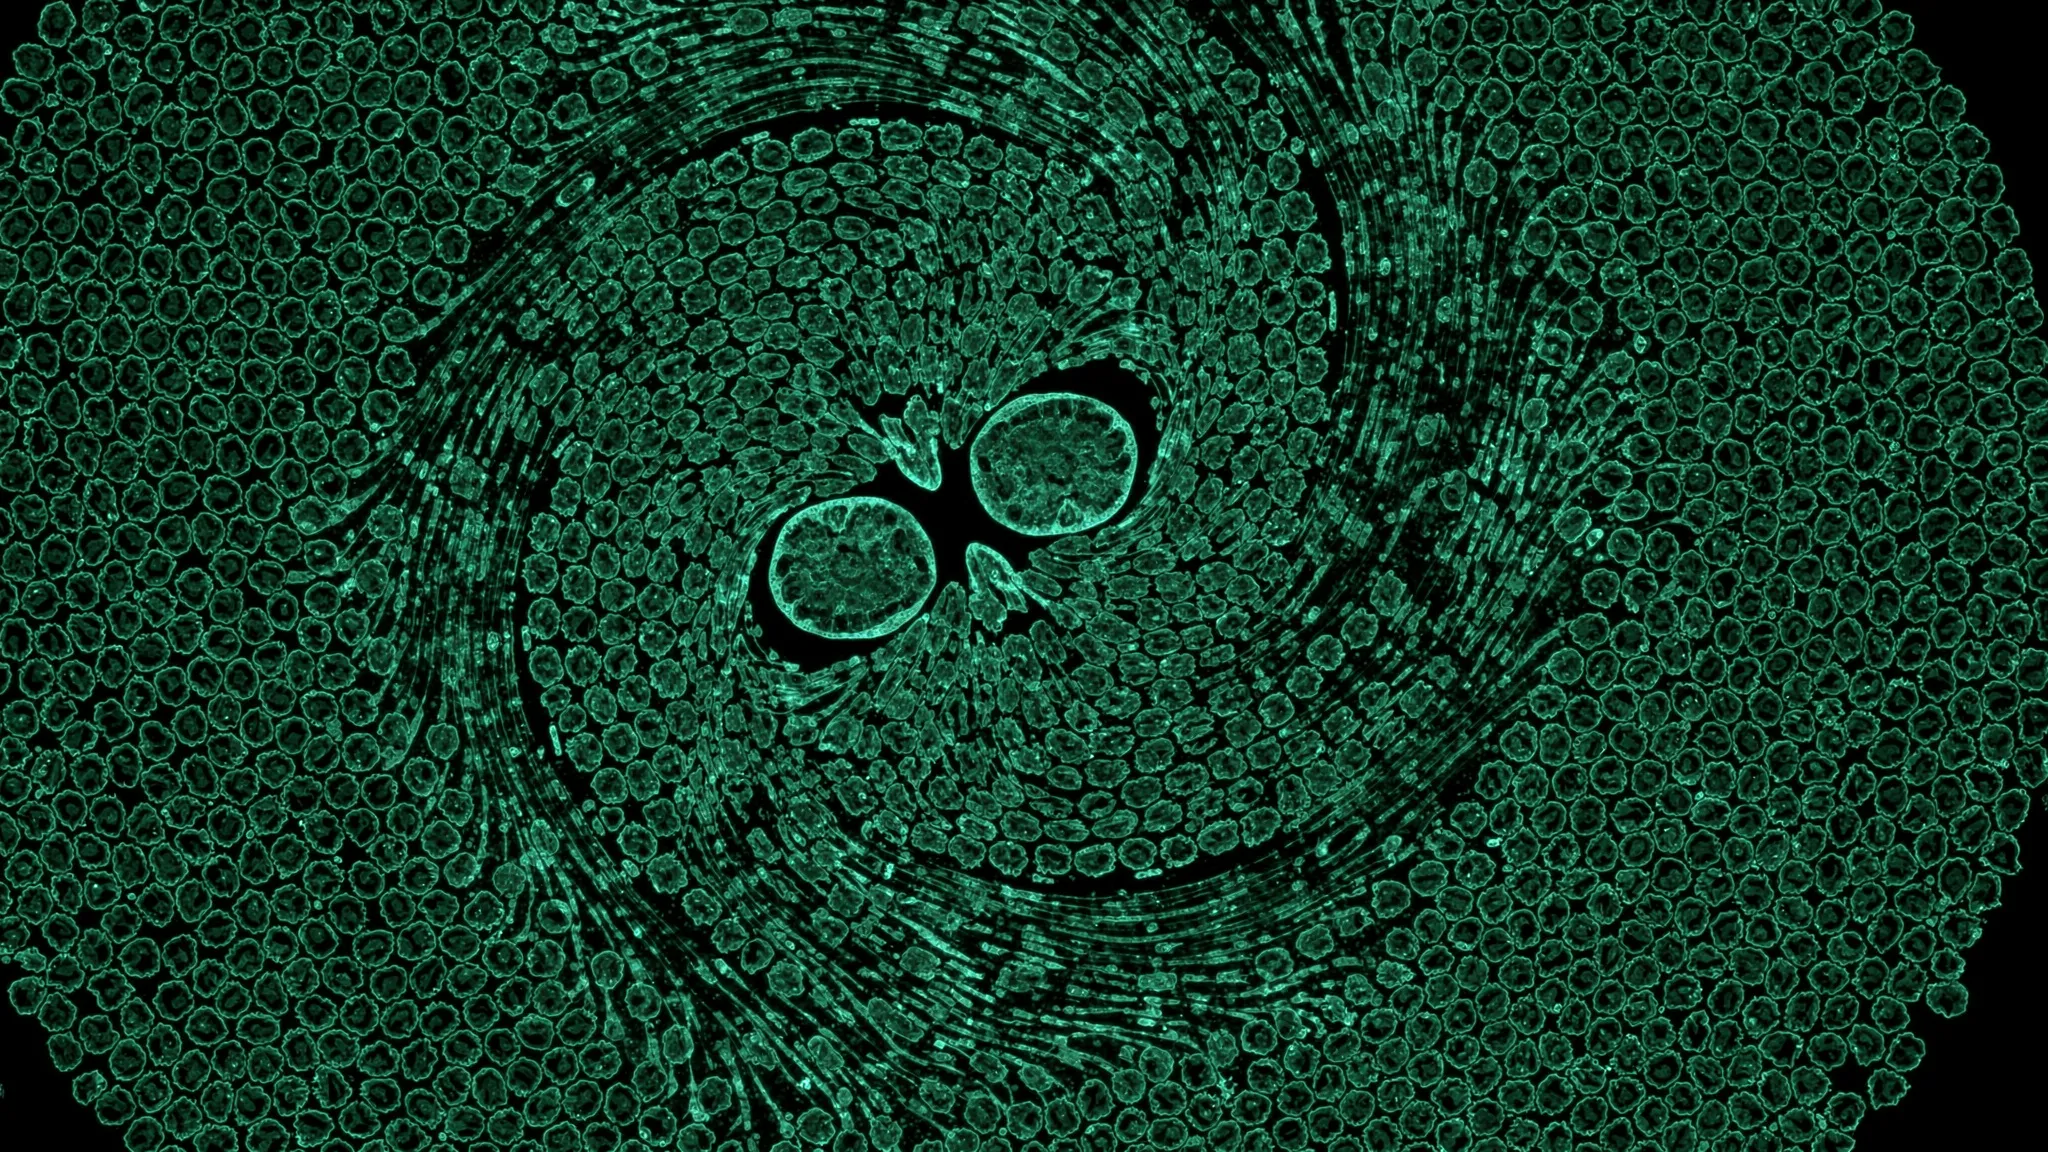
سلولهایی که تقسیم میشوند، گردابها را بینقص نگه میدارند
سلولها در یک لایهٔ بافتی — یک اپیتلیوم — بهندرت ساکن میمانند. آنها با هم در فوارهها و گردابها میخزند. این جریانهای جمعی برای ترمیم زخم، شکلگیری بافتها و اندامها و گسترش سرطانها اهمیت دارند.
الگویی شگفتانگیز در این جریانها پنهان است. خطوطی را بکشید که مناطق ساعتگرد را از مناطق پادساعتگرد جدا میکنند. در کاری پیشین که در 2025 در Nature Physics منتشر شد، فیزیکدانان دریافتند که در لایههای سلولی و در کلنیهای باکتریایی، این خطوط از ناوردایی همدیس (conformal invariance) پیروی میکنند: آمارشان وقتی جابهجا، چرخانده یا بزرگ و کوچک میشوند ثابت میماند. حتی با ردهٔ دقیقی از شکلهای ریاضی شناختهشده در فیزیک، یعنی تراوش بحرانی (critical percolation)، جور درمیآیند.
این برای مادهٔ زنده، که پیوسته انرژی میسوزاند و از تعادل بسیار دور است، عجیب است. تیانشیانگ ما، امین دوستمحمدی و همکارانشان در مؤسسهٔ نیلز بور در کپنهاگ، همراه با یک همنویسنده در لیسبون، پرسیدند چه چیزی این هندسه را سر جایش نگه میدارد — و چه چیزی آن را میشکند.
یک عدد برای یک شکل
برای آزمودن هندسه، گروه ابزاری به نام تحول شرام–لوونر (Schramm–Loewner evolution، SLE) را به کار برد. این ابزار هر خط پیچوتابدار را به فرایندی تصادفی تبدیل میکند که با یک عدد، κ (کاپا)، توصیف میشود. برای تراوش بحرانی، κ = 6. دو بررسی مستقل — احتمال اینکه خطی از سمت چپ نقطهای معین بگذرد، و سرعت گسترش کمیتی مرتبط — برای هر آزمایش برآوردی از κ به دست میدهند.
آنها از لایههای پیوستهٔ سلولهای MDCK، یک ردهٔ سلولی استاندارد کلیهٔ سگ، فیلم گرفتند و حرکتشان را زیر میکروسکوپ اندازه گرفتند.
تقسیم را متوقف کن، هندسه را از دست بده
در لایههای تیمارنشده، مرزهای گردابها تقریباً بینقص با نظریه جور بودند: κ = 6.002 ± 0.155.
گروه سپس تقسیم سلولی را با میتومایسین C، دارویی که نسخهبرداری DNA را متوقف میکند، مهار کرد. سلولها همچنان حرکت میکردند؛ فوارهها و گردابها با همان آمار کلی پابرجا ماندند. اما هندسهٔ پنهان تغییر کرد: κ به 8.18 ± 0.29 رسید، بهطور معناداری متفاوت از 6. خطوط همچنین ناوردایی مقیاسی خود را از دست دادند و «چندفراکتالی» شدند — زبریشان اکنون به نحوهٔ اندازهگیریشان بستگی داشت.
داروی دومی که تقسیم را با سازوکاری متفاوت مهار میکند، نوکودازول، که داربست درونی سلول لازم برای دوپاره شدن را از هم میپاشد، همان فروپاشی را پدید آورد.
به عنوان شاهد، آنها این بار مرگ سلولی را با بازدارندهای به نام Q-VD-OPh مهار کردند، در حالی که تقسیم بهطور عادی ادامه داشت. همهٔ نشانههای هندسهٔ جهانی پابرجا ماندند. آنچه اهمیت دارد تقسیم است، نه بهطور کلی نوسازی سلولی.
بافتی که هنوز میتواند جابهجا شود
چرا؟ با میتومایسین، جریانها اندکی نامتقارن شدند، که به خودی خود تقارن چرخشی را میشکند. اما نوکودازول چنین اثری نداشت، پس نویسندگان به دنبال توضیحی کلیتر گشتند و آن را در تبادل همسایهها یافتند: با هر دو دارو، سلولها بسیار کمتر همسایه عوض کردند و بافت کندتر واهلید. همچنان حرکت میکرد، اما شبکهٔ تماسهای سلولیاش بیش از حد مقید شده بود.
یک مدل رایانهای بافت، که در آن سلولها چندضلعیاند و سهم سلولهای در حال تقسیم را میتوان از 0 تا 100% تنظیم کرد، کل داستان را بازتولید کرد:
- وقتی همهٔ سلولها تقسیم میشدند، مرزهای گردابها با κ = 6 جور بودند؛
- زیر حدود 50% سلولهای در حال تقسیم، هندسه فرو ریخت؛
- تقسیمهای بیشتر بافت شبیهسازیشده را نرمتر کرد، با سفتی کمتر و هزینهٔ انرژی کمتر برای جابهجایی سلولها؛
- حذف سلولها بدون تقسیم الگو را بازنگرداند.
نوسازی به عنوان نقشی فیزیکی
نویسندگان نتیجه میگیرند که تقسیمها همچون «نوسازیهای توپولوژیک» متناوب عمل میکنند که شبکهٔ سلولی را به قدر کافی انعطافپذیر نگه میدارند تا در همهٔ مقیاسها بازآرایی شود. بدین ترتیب، تقسیم سلولی فراتر از نقشش در رشد، تنظیمکنندهای ساختاری و مکانیکی برای چگونگی سازمانیابی بافتها خواهد بود.
آنها میافزایند که داروهایی که تکثیر سلولی را متوقف میکنند و در درمان سرطان و در پزشکی قلبیعروقی به کار میروند، میتوانند اثرهای غیرمنتظرهای بر حرکت بافتها داشته باشند — پیشنهادی که این پژوهش، انجامشده روی سلولهای کشتشدهٔ سگ و شبیهسازیها، مستقیماً نمیآزماید. بر پایهٔ ارجاعی که نویسندگان در arXiv دادهاند، این کار در Proceedings of the National Academy of Sciences منتشر شده است.