এক দড়ি-টানাটানি, যা মাছির ডিমকে বলে দেয় তার পেছন কোথায়
ভ্রূণ হয়ে ওঠার অনেক আগেই ফলের মাছির ডিম্বকোষ — তার উসাইট (oocyte) — কে ঠিক করতে হয় কোন প্রান্ত সামনে আর কোনটি পেছনে। এই কাজের একটি অংশ পড়ে oskar নামের একটি বার্তাবাহী RNA-র ওপর। সামনের দিকের প্রতিবেশী “নার্স” কোষগুলোতে তৈরি হয়ে এটি উসাইটে পাঠানো হয়, যেখানে এটি Staufen নামের একটি প্রোটিনের সঙ্গে জোট বেঁধে ক্ষুদ্র কণা তৈরি করে। শুরুতে এই কণাগুলো পুরো কোষে ছড়িয়ে থাকে; কয়েক ঘণ্টা পরে এদের বেশির ভাগ পশ্চাৎ মেরুতে একটি টুপি গড়ে তোলে — সেই জায়গা, যেখানে ভবিষ্যতের জননকোষ নির্ধারিত হবে।
তারা সেখানে পৌঁছায় কীভাবে? নিউ ইয়র্কের ফ্ল্যাটআয়রন ইনস্টিটিউটের মোহাম্মদহোসেইন ফিরুজনিয়া ও মাইকেল শেলি, শিকাগোর নর্থওয়েস্টার্ন বিশ্ববিদ্যালয়ে ভ্লাদিমির গেলফান্ডের দলের সঙ্গে মিলে, তা জানতে জীবন্ত মাইক্রোস্কোপি, জিনতত্ত্ব ও একটি ভৌত মডেল একত্র করেছেন।
কিনারায় দড়ি-টানাটানি
একই দলগুলোর আগের কাজ দেখিয়েছিল যে কোষের কিনারায়, তার কর্টেক্সে, দুটি মোটর প্রোটিন oskar-এর জন্য প্রতিযোগিতা করে। মায়োসিন-V (Myosin-V) অ্যাক্টিন তন্তুর ওপর হাঁটে এবং কণাগুলোকে কর্টেক্সে ধরে রাখে। কাইনেসিন-১ (Kinesin-1) মাইক্রোটিউবিউলের ওপর হাঁটে এবং সেগুলোকে টেনে কোষের ভেতরে ফিরিয়ে নেয়। কিনারা বরাবর অ্যাক্টিন সব জায়গায় একই রকম। মাইক্রোটিউবিউল তা নয়: প্রায় ১২ ঘণ্টায় উসাইট যখন প্রায় ২৭ থেকে ৭৭ মাইক্রোমিটার লম্বা হয়, তখন পেছনের দিকে সেগুলো অনেক বেশি বিরল হয়ে পড়ে।
তাই oskar-এর ছাড়া পাওয়া সামনে জোরালো আর পেছনে দুর্বল হওয়ার কথা। দলটি এটি সরাসরি মেপেছে। তাঁরা Staufen-কে এমন একটি প্রোটিনের সঙ্গে জুড়ে দেন, যা বেগুনি আলোয় সবুজ থেকে লাল হয়ে যায়, কর্টেক্সের তিনটি বিন্দুতে — সামনে, পাশে ও পেছনে — আলোর ঝলক দেন, আর লাল আভা ম্লান হতে দেখেন।
- কণাগুলো কর্টেক্সে নামে প্রায় মিনিটে ২.৬ বার।
- তারা ছেড়ে যায় সামনে প্রায় মিনিটে ১.১৫ বার, পাশে ০.৮০ বার এবং পেছনে মাত্র মিনিটে ০.২৪ বার।
- তাই পেছনে ধরা পড়া ছাড়া পাওয়ার চেয়ে প্রায় ২০ গুণ দ্রুত।
তৈরি হওয়ার অপেক্ষায় একটি ফোঁটা
এখানে একটি জটিলতা আছে। oskar কণাগুলো পরস্পরের সঙ্গে লেগে থাকার প্রবণতা রাখে, পানিতে তেলের মতো: একটি নির্দিষ্ট ঘনত্বের ওপরে তারা আলাদা হয়ে একটি ফোঁটা তৈরি করে। মডেলটি মিশ্রণের একটি চিরায়ত সূত্র দিয়ে এটি ধরে, আর ফিট করা আঠালো-ভাব দেখা যায় C. elegans-এর “P দানা” (P granules)-র কাছাকাছি — এগুলো আগের কাজে মাপা ফোঁটা।
ফলাফল মাত্র দুটি সংখ্যার ওপর নির্ভর করে: কোষে oskar-এর মোট পরিমাণ, আর কর্টেক্সে ছাড়া পাওয়া ও ধরা পড়ার অনুপাত। মাপা মানগুলো দিয়ে মডেলটি স্বাভাবিক (ওয়াইল্ড-টাইপ) ডিম পুনরুৎপাদন করে: পেছনে একটি টুপি আর ভেতরটা সমসত্ত্ব। এটি ভারসাম্য ভাঙলে কী হয় তারও পূর্বাভাস দেয়, আর পরীক্ষাগুলোও তা-ই দেখিয়েছে:
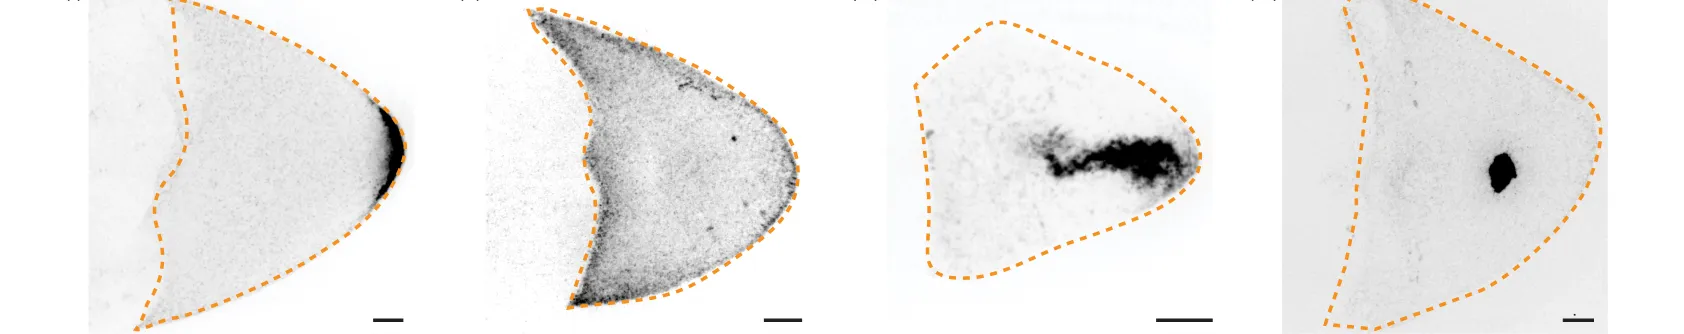
oskar কোথায় গিয়ে পৌঁছায়, বাঁ থেকে ডানে: স্বাভাবিক উসাইট (পেছনে টুপি), কাইনেসিন-১ কমানো (পুরো কিনারা), অতিসক্রিয় কাইনেসিন-১ (সাইটোপ্লাজমে দলা) এবং বাড়তি Patronin (ফোঁটা)। স্কেল বার, ১০ µm। — চিত্র 4D, Firouznia, Lu, Lakonishok, Farhadifar, Gelfand & Shelley (2026), arXiv:2610.10916, CC BY 4.0.
- কাইনেসিন-১ নেই, তাই ছাড়া পাওয়াও নেই: oskar পুরো কিনারা ঢেকে ফেলে, পেছনের প্রতি কোনো পক্ষপাত ছাড়াই।
- অতিসক্রিয় কাইনেসিন-১, এমন একটি মিউট্যান্ট যা কখনো বন্ধ হয় না: oskar কর্টেক্স থেকে টেনে সরিয়ে নেওয়া হয় এবং সাইটোপ্লাজমে একটি ফোঁটায় ঘনীভূত হয়।
- বাড়তি Patronin, এমন একটি প্রোটিন যা মাইক্রোটিউবিউলকে স্থিতিশীল করে এবং এভাবে কাইনেসিনের পথগুলো মজবুত করে: আবারও একটি ফোঁটা।
মজবুত, তবে একটি মাত্রা পর্যন্ত
oskar-এর স্বাভাবিক পরিমাণে ছাড়া পাওয়া ও ধরা পড়ার অনুপাত প্রায় আট গুণ বদলাতে পারে, RNA ফোঁটায় না পড়েই। কিন্তু oskar-এর পরিমাণ দ্বিগুণ করাই ফোঁটা তৈরির জন্য যথেষ্ট। লেখকেরা ইঙ্গিত দেন, একটি মাছি যতটা oskar তৈরি করে, সেই পরিমাণটাই হয়তো বিবর্তনের মাধ্যমে সুরে বাঁধা — টুপি গড়ার জন্য যথেষ্ট, কিন্তু এত বেশি নয় যে বাড়তিটা তার সঙ্গে প্রতিযোগিতা করবে।
মিউট্যান্ট ডিমগুলোতে ফোঁটাটি এক ধাপ থেকে পরের ধাপেও পশ্চাৎ মেরুর কাছেই থেকে গেছে, যা দলটি ব্যাখ্যা করে এভাবে যে উসাইট মূলত সামনের দিকে বাড়ে। বিকাশের পরের দিকে ডিমে জোরালো ঘূর্ণি-প্রবাহ দেখা দেয়; সেগুলো ভুল জায়গায় বসা টুপি মেরামতে সাহায্য করে কি না, সেটিই লেখকদের তালিকার পরের প্রশ্ন।