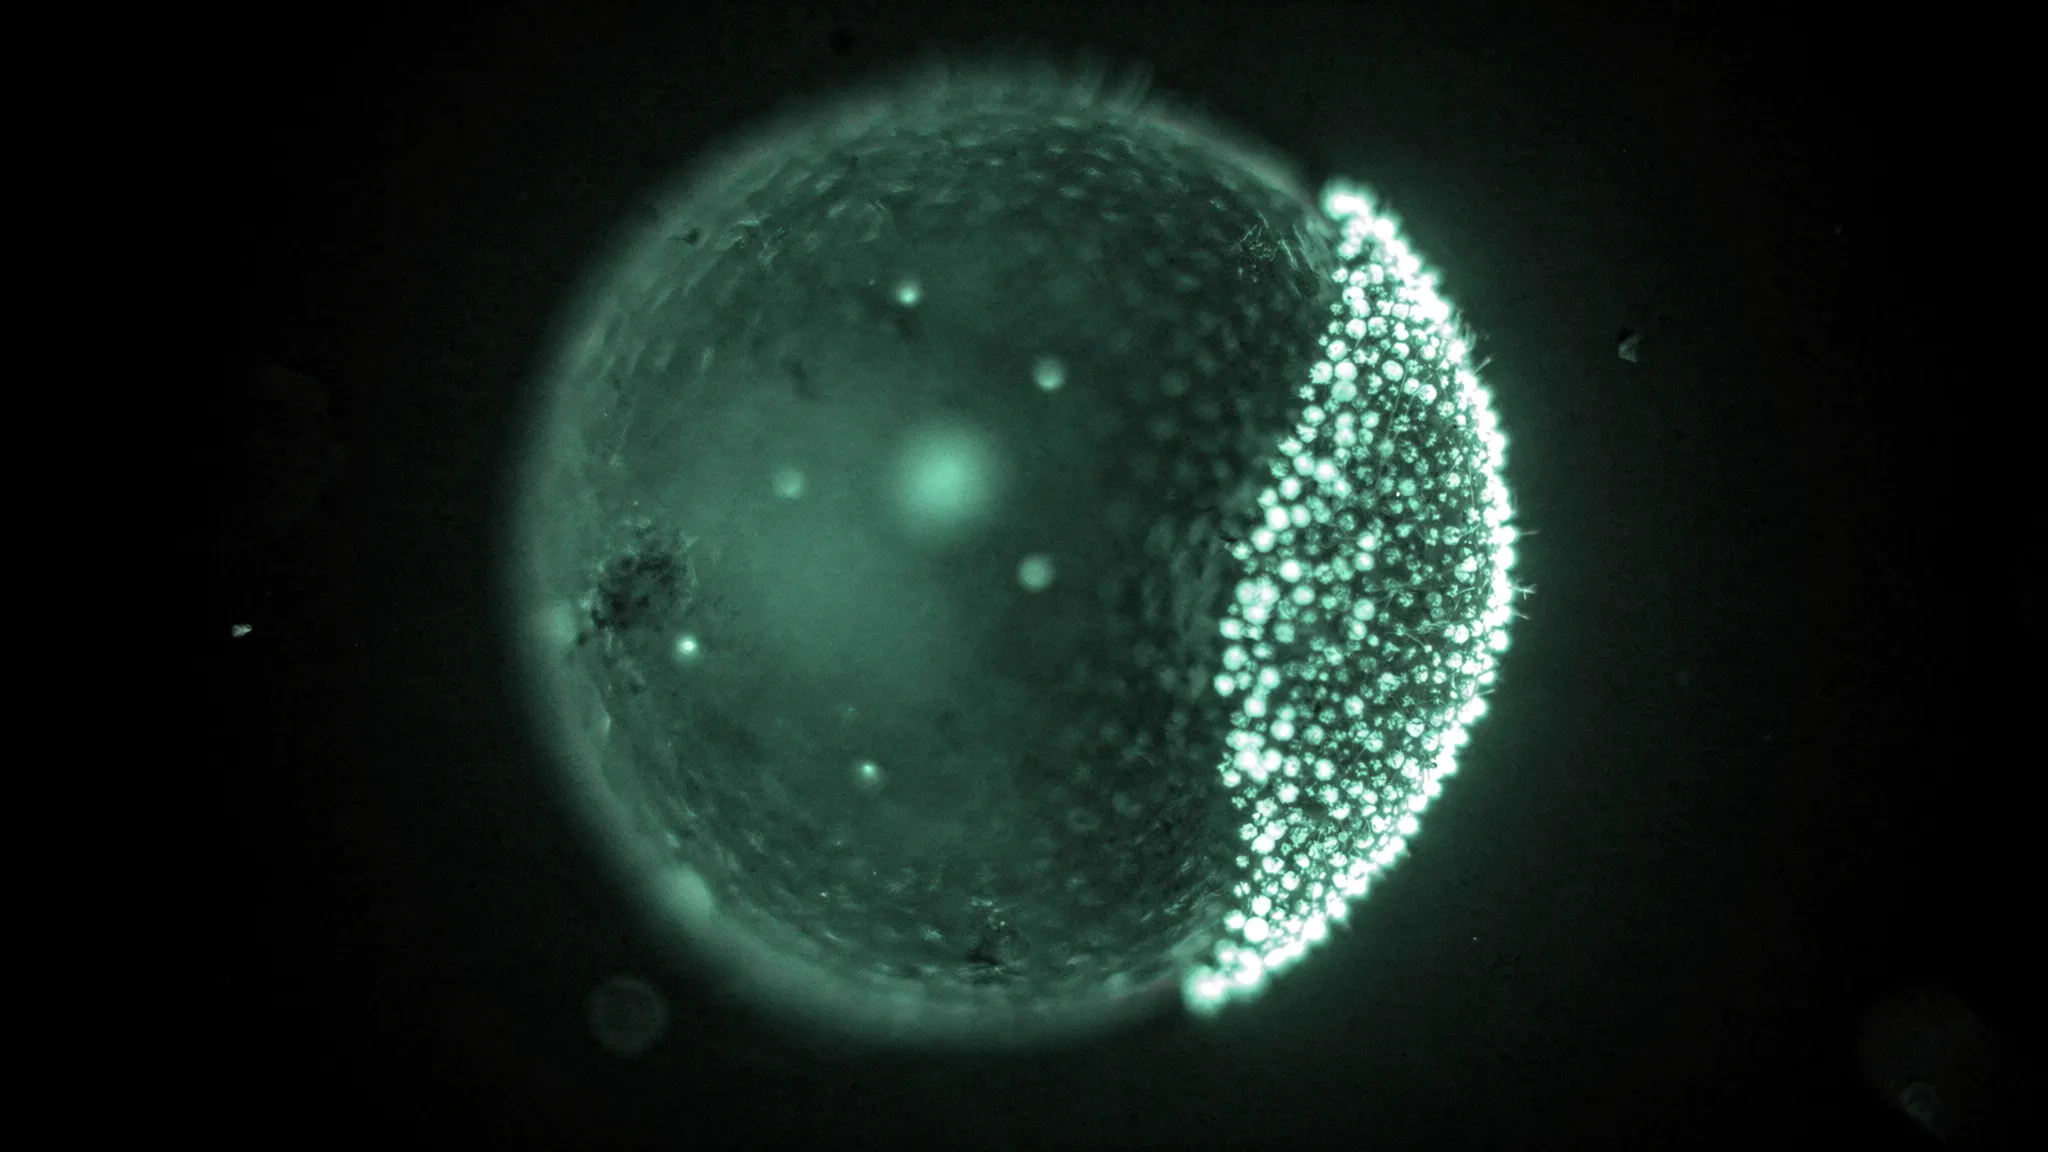
一场拔河告诉果蝇卵它的后端在哪里
早在成为胚胎之前,果蝇的卵细胞——即卵母细胞——就必须决定哪一端是前端、哪一端是后端。这项工作的一部分落在一种名为oskar的信使RNA身上。它在位于前端的相邻“滋养”细胞中合成,随后被运进卵母细胞,在那里与一种名为Staufen的蛋白质结合,形成微小的颗粒。起初,这些颗粒散布在整个细胞中;几小时后,其中大部分在后极形成一个“帽子”,而后极正是未来生殖细胞被确定的位置。
它们是怎么到达那里的?纽约熨斗研究所的Mohammadhossein Firouznia和Michael Shelley,与芝加哥西北大学Vladimir Gelfand的团队一起,结合活体显微成像、遗传学和一个物理模型来寻找答案。
边缘上的拔河
这几个研究组此前的工作已经表明,两种马达蛋白在细胞边缘——即细胞皮层——争夺oskar。肌球蛋白V(Myosin-V)沿肌动蛋白丝行走,把颗粒固定在皮层上。驱动蛋白-1(Kinesin-1)沿微管行走,把它们拉回细胞内部。肌动蛋白在边缘各处都一样。微管则不然:卵母细胞在大约12小时内从约27微米长到77微米,在此期间,越靠近后端,微管就变得越稀疏。
因此,oskar的释放在前端应该很强,在后端应该很弱。团队对此进行了直接测量。他们把Staufen与一种在紫光照射下由绿色变为红色的蛋白质融合,用光照射皮层的三个点——前端、侧面和后端——然后观察红色荧光的消退。
- 颗粒落到皮层上的速率约为每分钟2.6次。
- 它们离开的速率在前端约为每分钟1.15次,侧面为0.80次,而后端仅为每分钟0.24次。
- 因此在后端,捕获的速度大约是释放速度的20倍。
一个随时可能形成的液滴
这里有一个复杂之处。oskar颗粒倾向于彼此粘连,就像水中的油一样:超过一定浓度,它们就会分离出来形成一个液滴。模型用一个经典的混合物公式描述了这一点,拟合得到的黏性与此前研究中测得的秀丽隐杆线虫(C. elegans)“P颗粒”液滴的黏性相近。
结果只取决于两个数字:细胞中oskar的总量,以及皮层上释放与捕获之比。代入测得的数值,模型重现了野生型卵:后端有一个“帽子”,内部均匀。它还预测了平衡被打破时会发生什么,而实验结果与之相符:
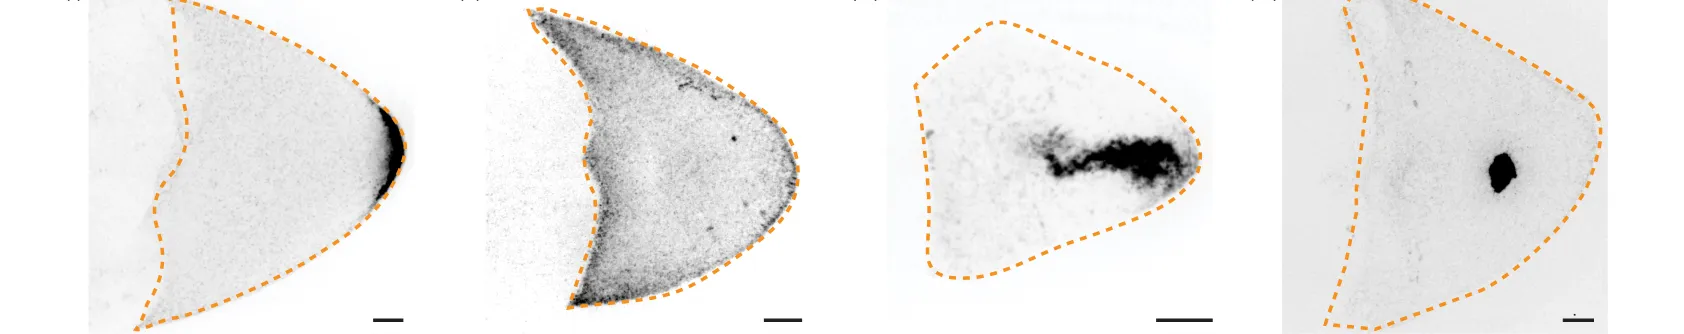
oskar的最终位置,从左到右依次为:正常卵母细胞(后端的“帽子”)、敲低驱动蛋白-1(整个边缘)、过度活跃的驱动蛋白-1(细胞质中的团块)以及额外的Patronin(液滴)。比例尺为10 µm。——图4D,Firouznia、Lu、Lakonishok、Farhadifar、Gelfand & Shelley(2026),arXiv:2610.10916,CC BY 4.0。
- 没有驱动蛋白-1,也就没有释放:oskar覆盖整个边缘,不偏向后端。
- 过度活跃的驱动蛋白-1,即一种永不关闭的突变体:oskar被拉离皮层,在细胞质中凝聚成一个液滴。
- 额外的Patronin,这种蛋白质能稳定微管,从而加强驱动蛋白的轨道:同样形成一个液滴。
稳健,但有剂量限度
在oskar的自然含量下,释放与捕获之比可以变化约八倍,而RNA不会落入液滴状态。但只要把oskar的量加倍,就足以触发液滴的形成。作者推测,果蝇合成的oskar的量本身可能就是由进化调校的——足以构建“帽子”,又不至于多到让多余部分与之竞争。
在突变卵中,液滴在各个发育阶段也始终停留在后极附近,团队将其解释为卵母细胞主要在前端生长。在发育后期,卵中会出现强烈的涡旋流;这些流动是否有助于修复位置错误的“帽子”,是作者清单上的下一个问题。