ఈగ గుడ్డుకు దాని వెనుక భాగం ఎక్కడో చెప్పే తాడు లాగుడు
పిండంగా మారడానికి చాలా ముందే, పండ్ల ఈగ అండ కణం — దాని ఊసైట్ (oocyte) — ఏ చివర ముందు, ఏ చివర వెనుక అని నిర్ణయించుకోవాలి. ఈ పనిలో ఒక భాగం oskar అనే మెసెంజర్ RNA ది. ముందు భాగంలోని పొరుగు “నర్సు” కణాల్లో తయారై, అది ఊసైట్లోకి పంపబడుతుంది, అక్కడ Staufen అనే ప్రోటీన్తో జతకట్టి సూక్ష్మ కణాలను ఏర్పరుస్తుంది. మొదట్లో ఈ కణాలు కణమంతటా చెల్లాచెదురుగా ఉంటాయి; కొన్ని గంటల తర్వాత, వాటిలో చాలావరకు వెనుక ధ్రువం వద్ద ఒక టోపీని ఏర్పరుస్తాయి — భవిష్యత్ జనన కణాలు నిర్దేశించబడే చోటు అది.
అవి అక్కడికి ఎలా చేరతాయి? న్యూయార్క్లోని ఫ్లాటైరన్ ఇన్స్టిట్యూట్కు చెందిన మొహమ్మద్హొస్సేన్ ఫిరూజ్నియా (Mohammadhossein Firouznia), మైఖేల్ షెల్లీ (Michael Shelley), చికాగోలోని నార్త్వెస్టర్న్ విశ్వవిద్యాలయానికి చెందిన వ్లాదిమిర్ గెల్ఫాండ్ (Vladimir Gelfand) బృందంతో కలిసి, దీన్ని తెలుసుకోవడానికి సజీవ సూక్ష్మదర్శనం, జన్యుశాస్త్రం, ఒక భౌతిక మోడల్ను కలిపారు.
అంచున తాడు లాగుడు
ఇవే బృందాలు ఇంతకుముందు చేసిన పనిలో, కణం అంచు వద్ద, అంటే దాని కార్టెక్స్ వద్ద, రెండు మోటార్ ప్రోటీన్లు oskar కోసం పోటీపడతాయని తేలింది. మయోసిన్-V ఆక్టిన్ తంతువులపై నడుస్తూ కణాలను కార్టెక్స్ వద్ద పట్టి ఉంచుతుంది. కైనెసిన్-1 సూక్ష్మనాళికలపై (microtubules) నడుస్తూ వాటిని తిరిగి కణం లోపలికి లాగుతుంది. అంచు వెంట అంతటా ఆక్టిన్ ఒకేలా ఉంటుంది. సూక్ష్మనాళికలు అలా కాదు: సుమారు 12 గంటల్లో ఊసైట్ పొడవు సుమారు 27 నుంచి 77 మైక్రోమీటర్లకు పెరుగుతుండగా, అవి వెనుక వైపు చాలా పలచబడతాయి.
కాబట్టి oskar విడుదల ముందు భాగంలో బలంగా, వెనుక భాగంలో బలహీనంగా ఉండాలి. బృందం దీన్ని నేరుగా కొలిచింది. వారు Staufen ను ఊదా కాంతి కింద ఆకుపచ్చ నుంచి ఎరుపుకు మారే ఒక ప్రోటీన్తో కలిపి, కార్టెక్స్లోని మూడు చోట్ల — ముందు, పక్క, వెనుక — కాంతి మెరుపు వేసి, ఎరుపు మెరుపు మసకబారడాన్ని గమనించారు.
- కణాలు కార్టెక్స్పై నిమిషానికి సుమారు 2.6 సార్లు వాలుతాయి.
- అవి ముందు భాగంలో నిమిషానికి సుమారు 1.15, పక్కన 0.80, వెనుక భాగంలో నిమిషానికి కేవలం 0.24 రేటుతో వెళ్లిపోతాయి.
- కాబట్టి వెనుక భాగంలో, పట్టుబడటం విడుదల కంటే సుమారు 20 రెట్లు వేగంగా జరుగుతుంది.
ఎప్పుడైనా ఏర్పడగల బిందువు
ఇక్కడ ఒక చిక్కు ఉంది. oskar కణాలు నీటిలో నూనెలాగా ఒకదానికొకటి అతుక్కునే ధోరణి కలిగి ఉంటాయి: ఒక నిర్దిష్ట గాఢత దాటితే, అవి వేరుపడి ఒక బిందువుగా మారతాయి. మోడల్ దీన్ని మిశ్రమాల కోసం ఉన్న ఒక సాంప్రదాయ సూత్రంతో పట్టుకుంటుంది, ఫిట్ చేసిన అతుక్కునే గుణం C. elegans యొక్క “P రేణువుల” — మునుపటి పనిలో కొలిచిన బిందువుల — అతుక్కునే గుణానికి దగ్గరగా వస్తుంది.
ఫలితం కేవలం రెండు సంఖ్యలపై ఆధారపడుతుంది: కణంలోని oskar మొత్తం పరిమాణం, కార్టెక్స్ వద్ద విడుదలకు, పట్టుబడటానికి మధ్య నిష్పత్తి. కొలిచిన విలువలతో, మోడల్ సహజ (wild-type) గుడ్డును పునరుత్పత్తి చేస్తుంది: వెనుక భాగంలో టోపీ, ఏకరీతి లోపలి భాగం. సమతుల్యత దెబ్బతిన్నప్పుడు ఏం జరుగుతుందో కూడా అది అంచనా వేస్తుంది, ప్రయోగాలు కూడా అలాగే జరిగాయి:
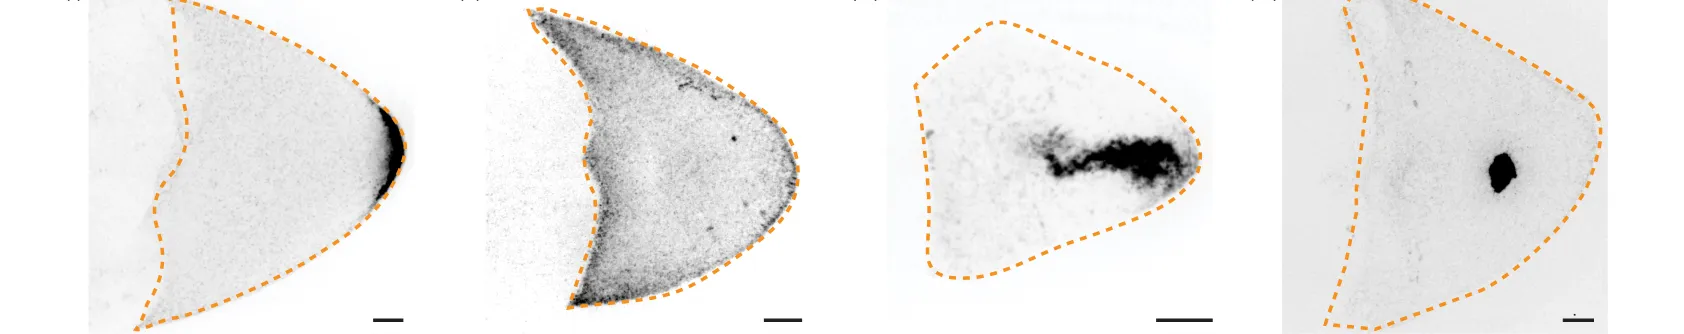
oskar ఎక్కడ చేరుతుంది, ఎడమ నుంచి కుడికి: సాధారణ ఊసైట్ (వెనుక టోపీ), కైనెసిన్-1 తగ్గించినది (మొత్తం అంచు), అతి చురుకైన కైనెసిన్-1 (కణద్రవ్యంలో ముద్ద), అదనపు Patronin (బిందువు). స్కేల్ బార్లు, 10 µm. — చిత్రం 4D, Firouznia, Lu, Lakonishok, Farhadifar, Gelfand & Shelley (2026), arXiv:2610.10916, CC BY 4.0.
- కైనెసిన్-1 లేదు, కాబట్టి విడుదల లేదు: oskar మొత్తం అంచునూ కప్పేస్తుంది, వెనుక భాగానికి ఏ ప్రాధాన్యమూ ఉండదు.
- అతి చురుకైన కైనెసిన్-1, ఎప్పుడూ ఆగిపోని ఒక ఉత్పరివర్తితం: oskar కార్టెక్స్ నుంచి లాగివేయబడి కణద్రవ్యంలో ఒక బిందువుగా ఘనీభవిస్తుంది.
- అదనపు Patronin, సూక్ష్మనాళికలను స్థిరపరిచి తద్వారా కైనెసిన్ పట్టాలను బలపరిచే ఒక ప్రోటీన్: మళ్లీ ఒక బిందువు.
దృఢమైనది, కానీ ఒక మోతాదు వరకే
oskar సహజ పరిమాణం వద్ద, విడుదల-పట్టుబడటం నిష్పత్తి సుమారు ఎనిమిది రెట్లు మారినా RNA బిందువుగా మారదు. కానీ oskar పరిమాణాన్ని రెట్టింపు చేస్తే చాలు, బిందువు ఏర్పడుతుంది. ఒక ఈగ తయారుచేసే oskar పరిమాణమే పరిణామం ద్వారా సర్దుబాటు చేయబడి ఉండవచ్చని రచయితలు సూచిస్తారు — టోపీని నిర్మించడానికి సరిపడా, కానీ అదనపు భాగం దానితో పోటీపడేంత ఎక్కువ కాదు.
ఉత్పరివర్తిత గుడ్లలో, బిందువు ఒక దశ నుంచి మరో దశకు వెనుక ధ్రువం దగ్గరే ఉండిపోయింది; ఊసైట్ ప్రధానంగా ముందు భాగంలో పెరగడం దీనికి కారణమని బృందం వివరిస్తుంది. అభివృద్ధిలో తర్వాతి దశలో, గుడ్డులో బలమైన సుడిగుండం లాంటి ప్రవాహాలు కనిపిస్తాయి; తప్పు చోట ఏర్పడిన టోపీని సరిచేయడంలో అవి సహాయపడతాయా అనేది రచయితల జాబితాలోని తదుపరి ప్రశ్న.