ハエの卵に「後ろ」の場所を教える綱引き
胚になるずっと前に、ショウジョウバエの卵細胞(卵母細胞)は、どちらの端が前でどちらが後ろかを決めなければならない。この仕事の一部を担うのが、oskarと呼ばれる伝令RNAだ。前側にある隣の「ナース細胞」でつくられたoskarは、卵母細胞へ送り込まれ、そこでStaufenというタンパク質と組んで小さな粒子をつくる。初めのうち、こうした粒子は細胞全体に散らばっている。数時間後には、その大部分が後極に帽子のような塊をつくる。後極は、将来の生殖細胞が決まる場所だ。
粒子はどうやってそこにたどり着くのか。ニューヨークのフラットアイアン研究所のモハンマドホセイン・フィルーズニア(Mohammadhossein Firouznia)とマイケル・シェリー(Michael Shelley)は、シカゴのノースウェスタン大学のウラジーミル・ゲルファンド(Vladimir Gelfand)のチームとともに、生細胞顕微鏡観察、遺伝学、物理モデルを組み合わせてそれを調べた。
縁での綱引き
同じグループによる以前の研究で、細胞の縁、つまり皮層で、二つのモータータンパク質がoskarを奪い合っていることがわかっていた。ミオシンVはアクチン繊維の上を歩き、粒子を皮層にとどめる。キネシン1は微小管の上を歩き、粒子を細胞の内側へ引き戻す。アクチンは縁に沿ってどこでも同じだ。微小管はそうではない。卵母細胞が約12時間で長さ約27マイクロメートルから77マイクロメートルへと成長するにつれ、微小管は後ろに向かうほどずっとまばらになる。
したがって、oskarが放される力は前側で強く、後ろ側で弱いはずだ。チームはこれを直接測定した。Staufenを、紫色の光で緑から赤に変わるタンパク質と融合させ、皮層の三か所(前、横、後ろ)に光を当てて、赤い光が薄れていく様子を観察した。
- 粒子は、1分あたり約2.6回の割合で皮層に着地する。
- 皮層を離れる割合は、前側で1分あたり約1.15、横で0.80、後ろ側ではわずか1分あたり0.24だった。
- したがって後ろ側では、捕まる速さが放される速さの約20倍になる。
いつでも液滴になりうる
一つ厄介な点がある。oskarの粒子は、水の中の油のように互いにくっつきやすい。ある濃度を超えると、分離して液滴になるのだ。モデルはこれを混合物についての古典的な式でとらえている。フィットで得られたくっつきやすさは、以前の研究で測定された線虫C. elegansの液滴「P顆粒」の値に近かった。
結果は、たった二つの数で決まる。細胞内のoskarの総量と、皮層での放出と捕捉の比だ。測定された値を使うと、モデルは野生型の卵を再現する。後ろ側に帽子があり、内部は一様だ。モデルはまた、この釣り合いが崩れたときに何が起きるかも予測し、実験はそのとおりになった。
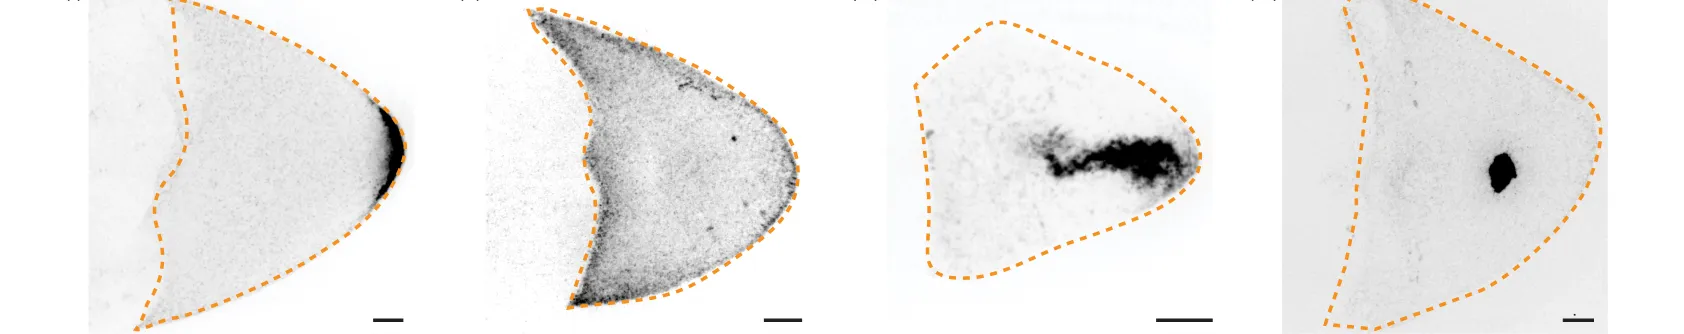
oskarが行き着く場所。左から、正常な卵母細胞(後ろに帽子)、キネシン1をノックダウンしたもの(縁全体)、過剰に活性なキネシン1(細胞質内の塊)、Patroninを過剰にしたもの(液滴)。スケールバーは10 µm。— 図4D、Firouznia, Lu, Lakonishok, Farhadifar, Gelfand & Shelley (2026), arXiv:2610.10916, CC BY 4.0.
- キネシン1がない場合、放出がない。oskarは縁全体を覆い、後ろ側への偏りはない。
- 過剰に活性なキネシン1(決してスイッチが切れない変異体)の場合、oskarは皮層から引きはがされ、細胞質の中で凝縮して液滴になる。
- Patroninを過剰にした場合(Patroninは微小管を安定化させ、キネシンの線路を強化するタンパク質)、やはり液滴になる。
頑健だが、量には限りがある
自然なoskarの量では、放出と捕捉の比が約8倍変わっても、RNAは液滴にならない。しかしoskarの量を2倍にするだけで、液滴ができてしまう。著者らは、ハエがつくるoskarの量そのものが、進化によって調整されているのかもしれないと示唆している。帽子をつくるには十分で、余った分が帽子と競合するほどには多くない量だ。
変異体の卵では、液滴は発生段階が進んでも後極の近くにとどまっていた。チームはこれを、卵母細胞が主に前側で成長するためだと説明している。発生の後の段階では、卵の中に強い渦巻くような流れが現れる。その流れが、間違った場所にできた帽子の修復を助けるのかどうか。それが、著者らのリストにある次の問いだ。