TRÒ KÉO CO CHỈ CHO TRỨNG RUỒI BIẾT ĐẦU SAU Ở ĐÂU
Từ rất lâu trước khi trở thành phôi, tế bào trứng của ruồi giấm — noãn bào (oocyte) — phải xác định đầu nào là trước, đầu nào là sau. Một phần công việc này thuộc về một RNA thông tin tên là oskar. Được tạo ra trong các tế bào “nuôi dưỡng” (nurse cell) bên cạnh ở phía trước, nó được chuyển vào noãn bào, nơi nó kết hợp với một protein tên là Staufen để tạo thành những hạt nhỏ li ti. Lúc đầu, các hạt này rải rác khắp tế bào; vài giờ sau, phần lớn chúng tạo thành một chiếc mũ ở cực sau, nơi các tế bào mầm tương lai sẽ được xác định.
Chúng đến đó bằng cách nào? Mohammadhossein Firouznia và Michael Shelley tại Viện Flatiron ở New York, cùng nhóm của Vladimir Gelfand tại Đại học Northwestern ở Chicago, đã kết hợp hiển vi tế bào sống, di truyền học và một mô hình vật lý để tìm hiểu.
Trò kéo co ở rìa
Nghiên cứu trước đây của cùng các nhóm đã cho thấy hai protein động cơ cạnh tranh giành oskar ở rìa tế bào, tức lớp vỏ (cortex). Myosin-V di chuyển trên các sợi actin và giữ các hạt ở lớp vỏ. Kinesin-1 di chuyển trên các vi ống và kéo chúng trở lại vào trong tế bào. Actin ở đâu dọc theo rìa cũng như nhau. Vi ống thì không: khi noãn bào dài ra từ khoảng 27 lên 77 micromet trong khoảng 12 giờ, chúng trở nên thưa hơn nhiều về phía sau.
Vậy việc thả oskar phải mạnh ở phía trước và yếu ở phía sau. Nhóm nghiên cứu đã đo trực tiếp điều này. Họ gắn Staufen với một protein chuyển từ xanh lục sang đỏ dưới ánh sáng tím, chiếu chớp sáng vào ba điểm trên lớp vỏ — trước, bên và sau — rồi quan sát ánh đỏ mờ dần.
- Các hạt bám xuống lớp vỏ với tốc độ khoảng 2,6 lần mỗi phút.
- Chúng rời đi với tốc độ khoảng 1,15 mỗi phút ở phía trước, 0,80 ở bên và chỉ 0,24 mỗi phút ở phía sau.
- Do đó ở phía sau, việc bắt giữ nhanh hơn việc thả ra khoảng 20 lần.
Một giọt chực chờ hình thành
Có một điều phức tạp. Các hạt oskar có xu hướng dính vào nhau, giống như dầu trong nước: vượt quá một nồng độ nhất định, chúng tách ra thành một giọt. Mô hình nắm bắt điều này bằng một công thức kinh điển cho hỗn hợp, và độ dính được khớp ra hóa ra gần với độ dính của “hạt P” ở C. elegans, những giọt đã được đo trong các nghiên cứu trước.
Kết quả chỉ phụ thuộc vào hai con số: tổng lượng oskar trong tế bào, và tỷ lệ giữa thả ra và bắt giữ ở lớp vỏ. Với các giá trị đo được, mô hình tái tạo được trứng kiểu dại: một chiếc mũ ở phía sau và phần bên trong đồng đều. Nó cũng dự đoán điều gì xảy ra khi thế cân bằng bị phá vỡ, và các thí nghiệm đã diễn ra đúng như vậy:
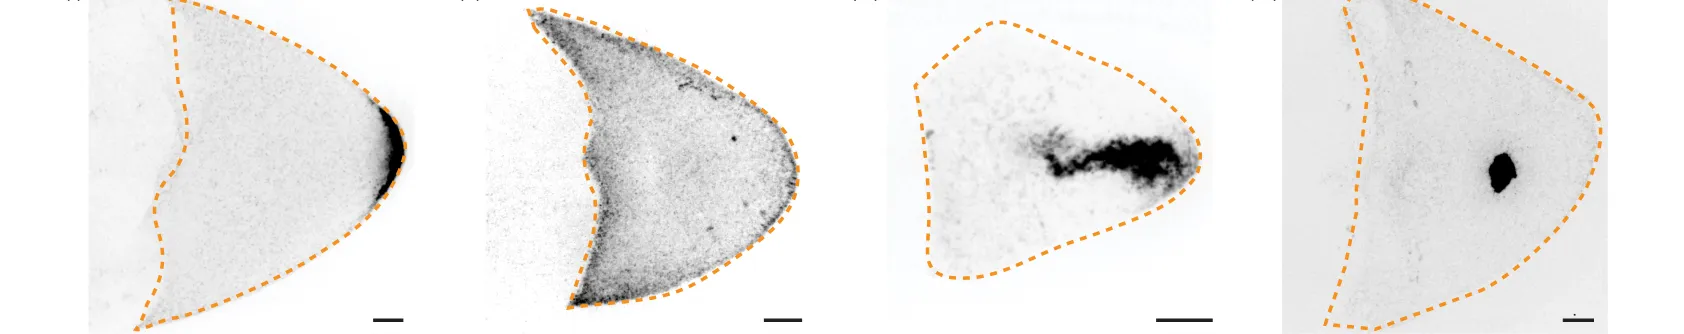
Nơi oskar kết thúc, từ trái sang phải: noãn bào bình thường (mũ ở phía sau), kinesin-1 bị làm giảm biểu hiện (toàn bộ rìa), kinesin-1 hoạt động quá mức (khối vón trong tế bào chất) và thừa Patronin (giọt). Thanh tỷ lệ, 10 µm. — Hình 4D, Firouznia, Lu, Lakonishok, Farhadifar, Gelfand & Shelley (2026), arXiv:2610.10916, CC BY 4.0.
- Không có kinesin-1, nên không có việc thả ra: oskar phủ khắp rìa, không ưu tiên phía sau.
- Kinesin-1 hoạt động quá mức, một thể đột biến không bao giờ tắt: oskar bị kéo khỏi lớp vỏ và ngưng tụ thành một giọt trong tế bào chất.
- Thừa Patronin, một protein làm ổn định vi ống và do đó củng cố đường ray của kinesin: lại là một giọt.
Bền vững, nhưng chỉ đến một liều lượng
Ở lượng oskar tự nhiên, tỷ lệ thả ra so với bắt giữ có thể thay đổi khoảng tám lần mà RNA không rơi vào trạng thái giọt. Nhưng chỉ cần tăng gấp đôi lượng oskar là đủ để kích hoạt giọt. Các tác giả gợi ý rằng chính lượng oskar mà một con ruồi tạo ra có thể đã được tiến hóa tinh chỉnh — đủ để dựng chiếc mũ, nhưng không nhiều đến mức phần dư cạnh tranh với nó.
Ở các trứng đột biến, giọt cũng nằm gần cực sau từ giai đoạn này sang giai đoạn tiếp theo, điều mà nhóm giải thích là do noãn bào lớn lên chủ yếu ở phía trước. Về sau trong quá trình phát triển, những dòng chảy xoáy mạnh xuất hiện trong trứng; liệu chúng có giúp sửa một chiếc mũ bị đặt sai chỗ hay không là câu hỏi tiếp theo trong danh sách của các tác giả.