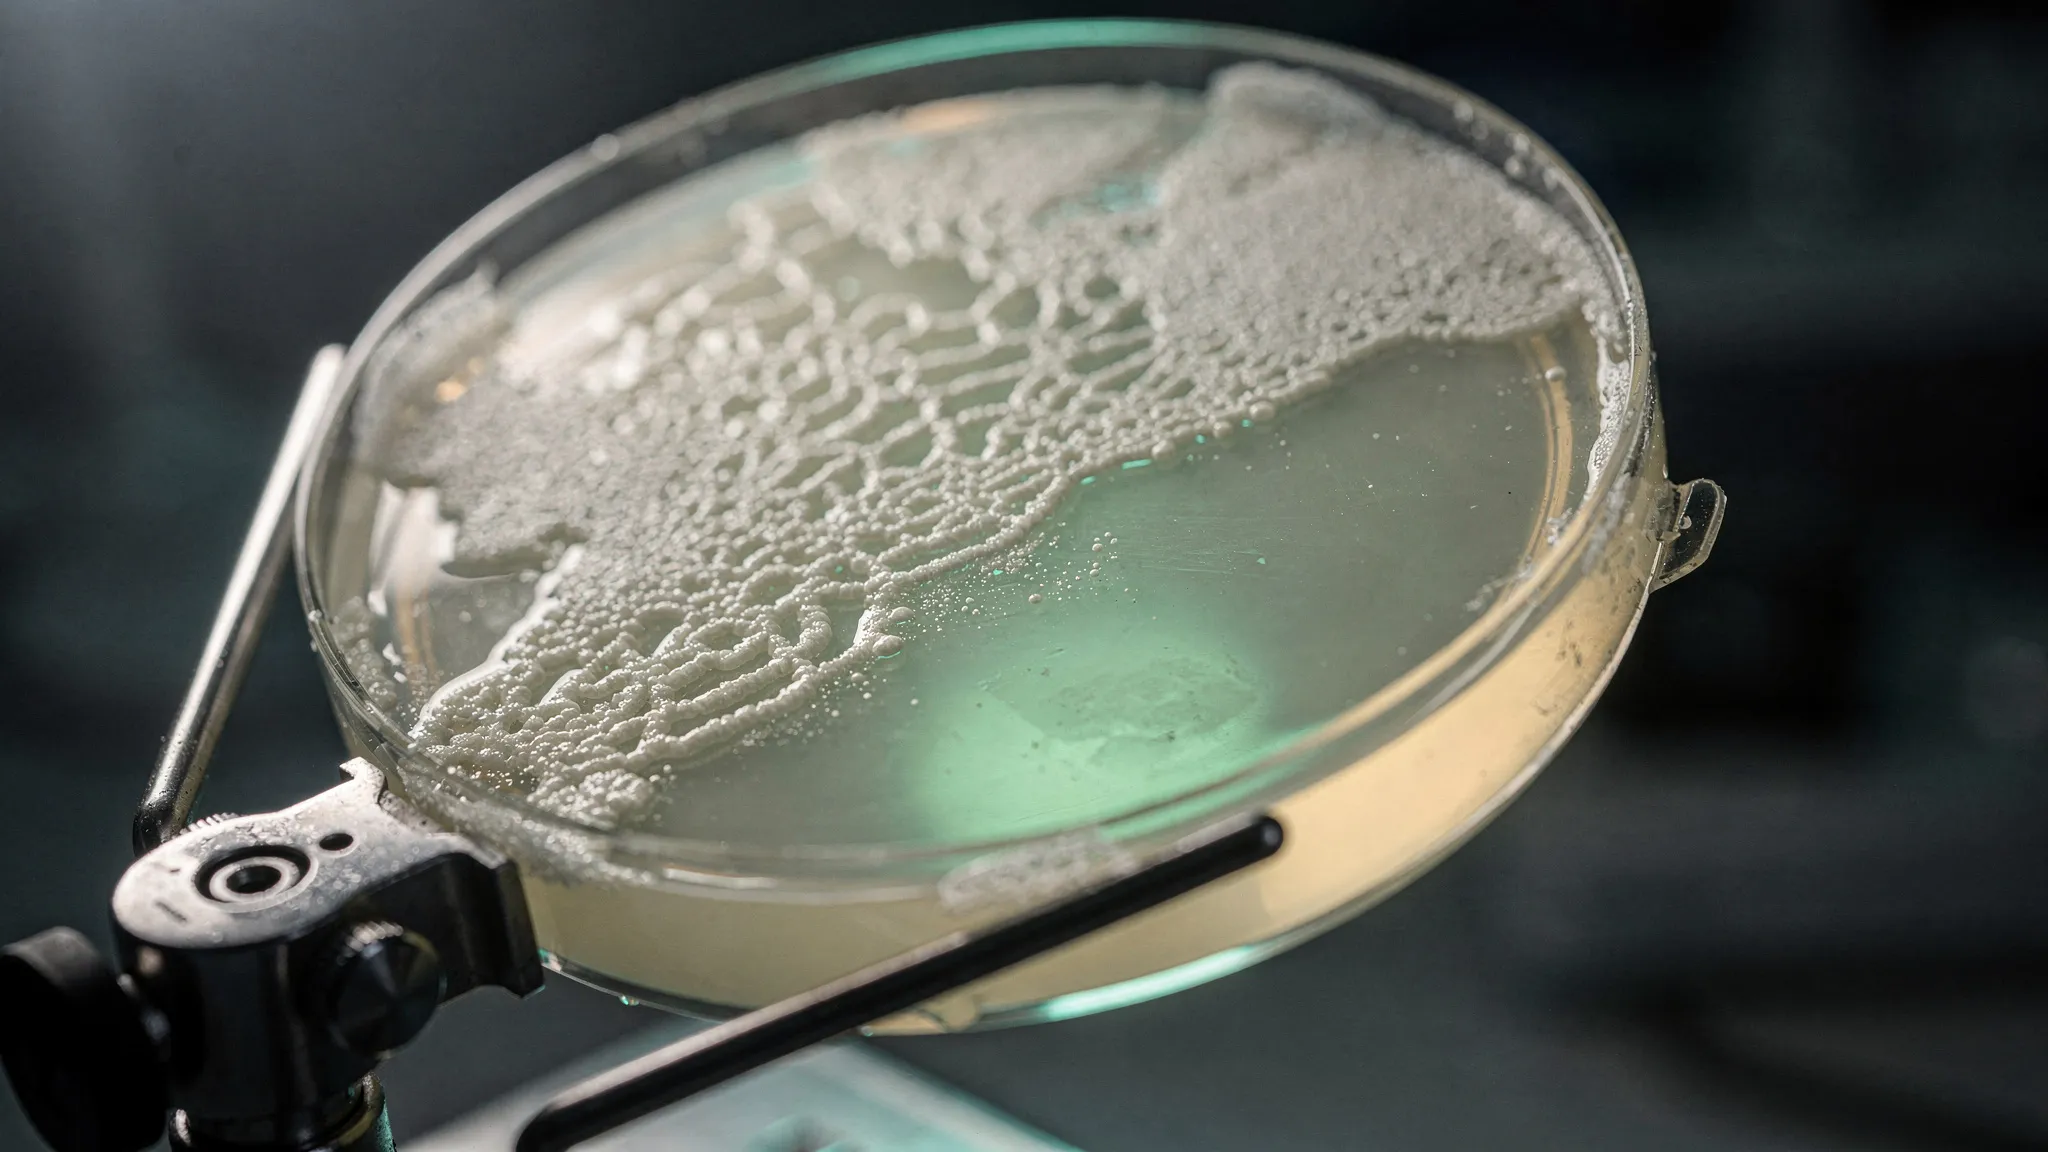
NGHIÊNG ĐĨA NUÔI CẤY, VI KHUẨN LAN XUỐNG DỐC
Di chuyển bầy đàn (swarming) là cách một số vi khuẩn cùng nhau di chuyển: những đám tế bào chuyển động dày đặc lan rộng trên một bề mặt mềm và ẩm, bên trong một lớp chất lỏng mỏng, tạo thành các cụm, xoáy và dòng chảy tập thể. Trong phòng thí nghiệm, bầy vi khuẩn phát triển thành hình tròn, hình phân nhánh hoặc những tua dài.
Môi trường vật lý xung quanh có vai trò quan trọng — lượng nước mà lớp gel cung cấp, sức căng bề mặt của màng chất lỏng. Nhưng bài báo lưu ý rằng có một yếu tố phần lớn bị bỏ qua: trọng lực. Các thí nghiệm tiêu chuẩn dùng đĩa nằm ngang, nơi trọng lực chỉ là một nền cố định, trung tính. Một nghiên cứu cũ hơn, được các tác giả trích dẫn, đã cho thấy hướng của trọng lực làm thay đổi hình dạng của các khuẩn lạc tụ cầu khuẩn nuôi trong gel mềm.
Tám góc, từ nằm phẳng đến úp ngược
Pengxi Gu, Zijie Qu và các cộng sự tại Học viện Toàn cầu của Đại học Giao thông Thượng Hải, cùng các đồng tác giả tại Viện Công nghệ Georgia, Đại học Johns Hopkins và Đại học Phục Đán, đã làm việc với Enterobacter sp. SM3, một loài vi khuẩn di chuyển bầy đàn vốn được phân lập từ ruột chuột — một môi trường nơi các bề mặt cong và hiếm khi nằm ngang. Trên đĩa nằm phẳng, SM3 tạo thành một khuẩn lạc gần như tròn, một mốc tham chiếu gọn gàng.
Họ đặt một giọt vi khuẩn vào giữa các đĩa gel mềm, để bầy bắt đầu lan trong ba giờ trên một mặt phẳng, rồi đặt các đĩa theo tám hướng: nằm phẳng (0°), nghiêng ngửa mặt lên ở 30°, 45° và 75°, nghiêng úp mặt xuống ở 105°, 135° và 150°, và úp ngược nằm phẳng (180°). Họ chụp ảnh các khuẩn lạc mỗi giờ cho đến giờ thứ chín — 15 khuẩn lạc độc lập cho mỗi góc — và quay phim các tế bào chuyển động tại năm điểm dọc mép mỗi khuẩn lạc dưới kính hiển vi.
Các góc ở giữa chiến thắng
Sự khác biệt tích tụ dần theo thời gian. Đến cuối cùng, mức phát triển của bầy phụ thuộc vào góc nghiêng theo cách không đơn điệu: các khuẩn lạc phát triển mạnh nhất ở các góc nghiêng trung bình, lớn nhất ở 75° và 45°, và kém nhất trên các đĩa gần như hoặc hoàn toàn úp ngược (150° và 180°). Các đĩa chỉ nghiêng nhẹ, ở 30°, phát triển kém hơn một chút so với đĩa nằm phẳng.
Mặt nào hướng lên cũng có ảnh hưởng. Các cặp đĩa có cùng độ nghiêng, một ngửa lên và một úp xuống — 30° và 150°, 45° và 135°, 75° và 105° — cho kết quả khác nhau: cấu hình ngửa lên có xu hướng tạo ra khuẩn lạc lớn hơn ở mọi cặp.
Những hình dạng bị kéo xuống dốc
Các khuẩn lạc nằm phẳng vẫn gần như tròn. Những khuẩn lạc bị nghiêng trở nên lệch, kéo dài về phía dưới dốc:
- Một thước đo độ bất đối xứng hình dạng giữ ở mức khoảng 0,1 trên đĩa phẳng và đạt 0,90 ở 75°.
- Phía dưới dốc vươn xa gấp khoảng 1,46 đến 1,52 lần phía trên dốc trong khoảng từ 75° đến 135°.
- Một số khuẩn lạc mọc ra chiếc đuôi như sao chổi: ở 75°, chóp dưới dốc tiến nhanh gấp khoảng 2,2 lần hai sườn bên cạnh.
Dưới kính hiển vi, bức tranh tinh tế hơn. Nhìn chung, các tế bào di chuyển chậm hơn trên đĩa nghiêng so với đĩa phẳng, và chậm hơn ở chóp dưới dốc so với đỉnh khuẩn lạc. Các xoáy ở chóp hơi nhỏ hơn và nhiều hơn. Như vậy, mặt trận tiến nhanh nhất lại là nơi các tế bào di chuyển chậm nhất — theo các tác giả, đó là dấu hiệu cho thấy chỉ riêng tốc độ tế bào cục bộ không thể giải thích cách mép khuẩn lạc tiến lên.
Một màng nước bị kéo theo hai hướng
Để lý giải các xu hướng này, nhóm đã mở rộng một mô hình có sẵn mô tả bầy vi khuẩn như một màng mỏng hai lớp gồm tế bào và nước, bổ sung trọng lực được tách thành hai thành phần. Thành phần dọc theo bề mặt đẩy màng xuống dốc. Thành phần vuông góc với bề mặt thay đổi áp suất trong màng, và cùng với đó là tốc độ nước thấm lên từ lớp gel bên dưới.
Mô hình này, vốn không được tinh chỉnh theo kích thước hay thời gian thực của thí nghiệm, đã tái hiện các quy luật chính, kể cả góc tối ưu 75°. Lần lượt tắt từng thành phần giúp làm rõ vai trò của chúng: trọng lực dọc bề mặt tạo ra sự kéo dài xuống dốc, còn trọng lực vuông góc với bề mặt là cần thiết để phân biệt đĩa ngửa lên với đĩa úp xuống.
Một mép bị mắc kẹt rồi bật ra?
Nghiên cứu dùng một chủng vi khuẩn duy nhất, trong điều kiện phòng thí nghiệm có kiểm soát, và mô hình chỉ là một mô tả đơn giản hóa. Các tác giả gợi ý rằng ở chóp dưới dốc, chất lỏng và tế bào có thể dồn ứ sau một mép bị mắc kẹt cho đến khi nó đột ngột bật ra, lặp đi lặp lại, điều này cũng sẽ phá vỡ các xoáy lớn hơn — nhưng họ nói rõ cơ chế này chỉ là giả thuyết, cần được kiểm chứng bằng các phép đo đồng bộ mặt trận và dòng chảy. Thông điệp rộng hơn của họ thì đơn giản: trong các thí nghiệm về di chuyển bầy đàn, hướng của bề mặt không phải là một chi tiết trung tính.