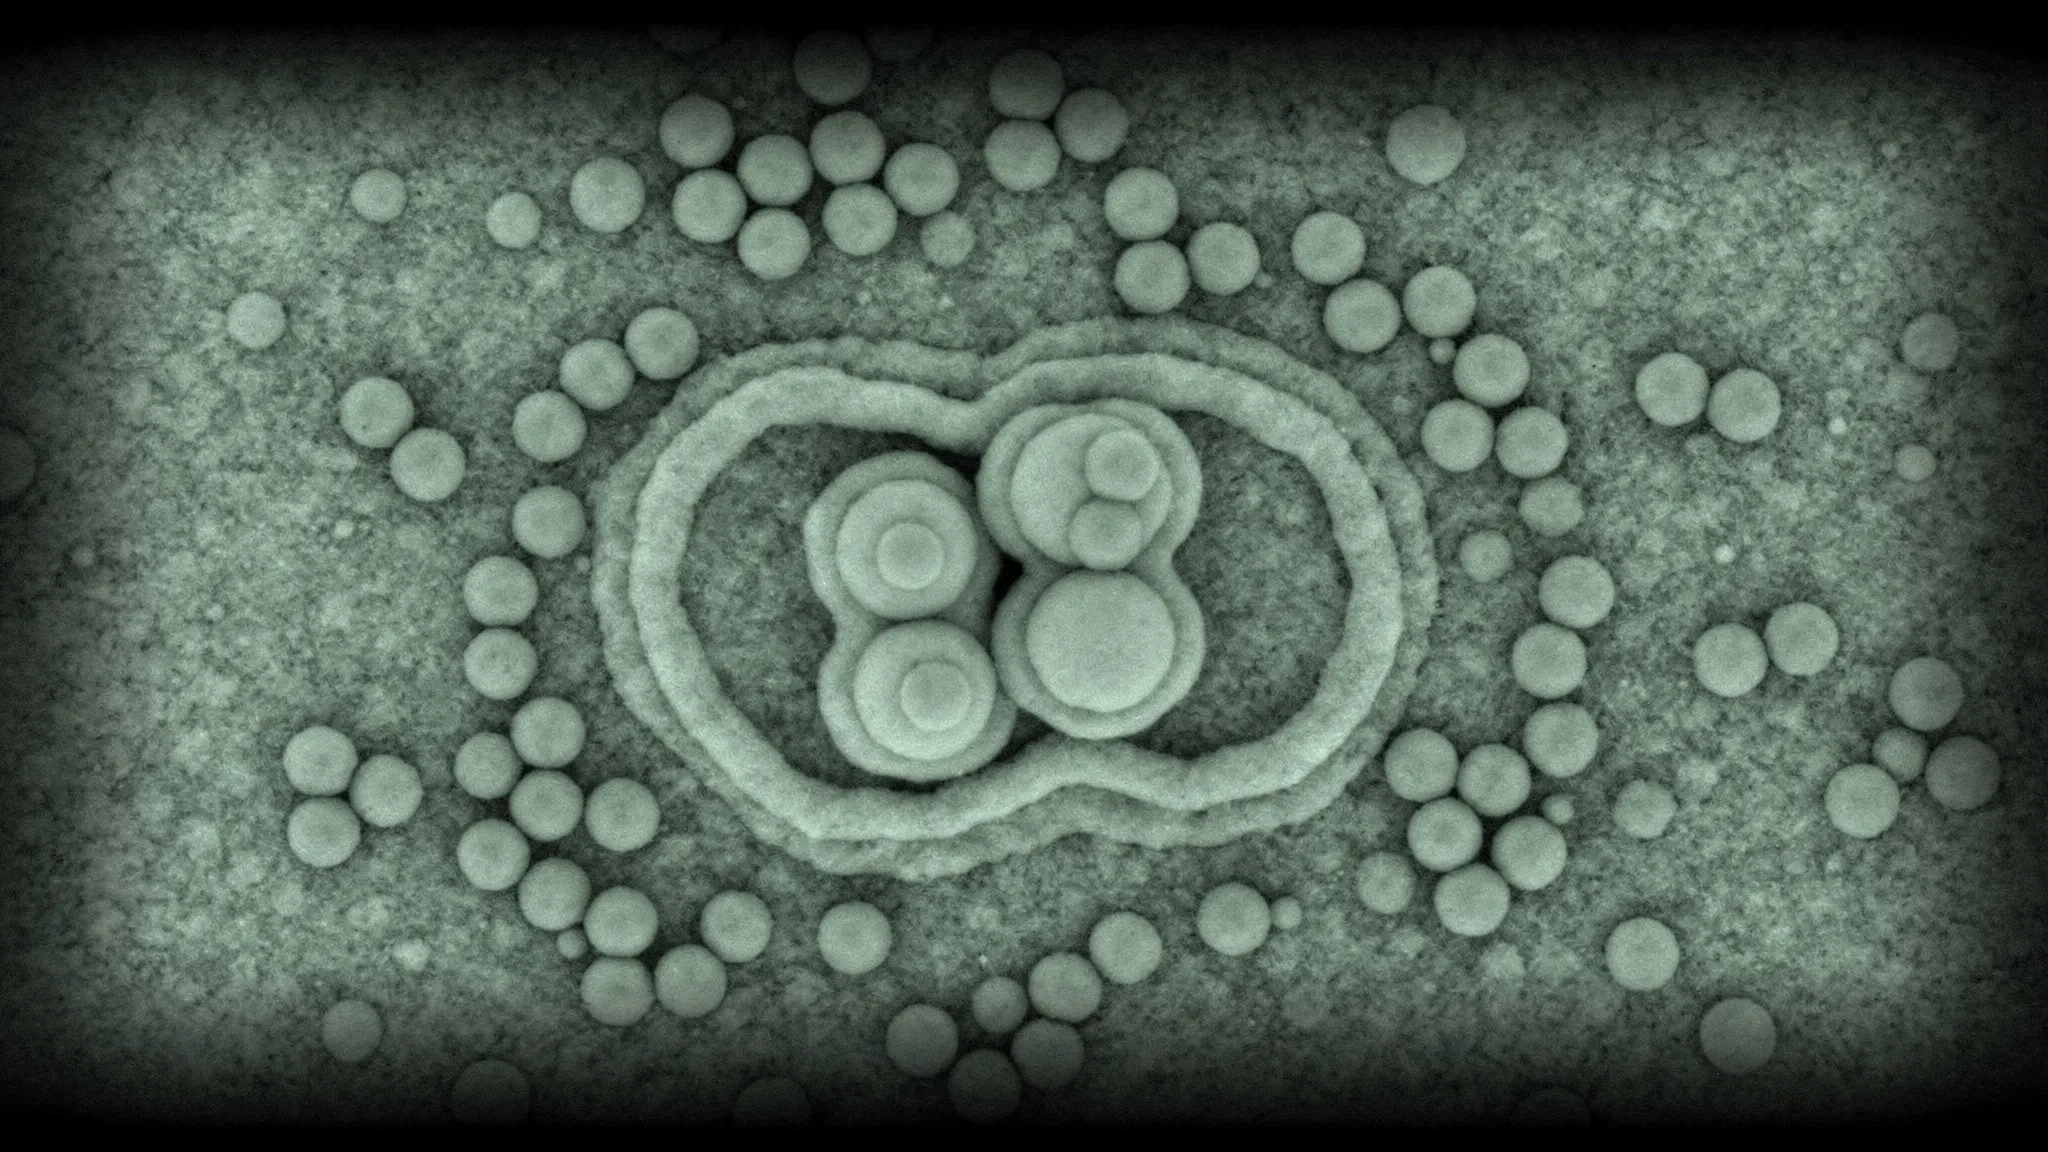
فيروس يكتسي معطفًا ثانيًا، يبنيه التجاذب الكهربائي
كثير من الفيروسات البسيطة ذات الجينوم من RNA تبني نفسها بنفسها. فالخلايا المصابة تنتج نسخًا من بروتين غلاف، وتتجمع هذه النسخ حول RNA الفيروس في غلاف واقٍ، هو القُفَيصة (capsid). وفي حالة العاثية (bacteriophage) MS2، وهي فيروس يصيب بكتيريا E. coli، ينجح ذلك حتى في أنبوب اختبار: إذ تتجمع 180 بروتين غلاف حول RNA الفيروس MS2 في غلاف عرضه نحو 30 نانومترًا، بالبنية نفسها التي للفيروس الحقيقي.
ما الذي يقود هذا التجميع؟ تركّز معظم دراسات MS2 على رابطة قوية ونوعية بين منطقة واحدة من الـRNA الخاص به وبروتين الغلاف. لكن الأغلفة تتكوّن أيضًا حول RNA يفتقر إلى تلك المنطقة. ومن المرشحين الآخرين التجاذب الكهربائي البسيط بين المجموعات المشحونة على الـRNA وعلى البروتين، والذي يضبطه الملح في المحلول. وفي MS2 يصعب الفصل بين الأثرين.
الفيروس قالبٌ لنفسه
توصّل كلٌّ من LaNell Williams وAmelia Paine وKellianne Kornick وRees Garmann وVinothan Manoharan، في جامعة هارفارد وجامعة برينستون وجامعة ولاية سان دييغو، إلى طريقة للفصل بينهما. فبدلًا من الـRNA، قدّموا لبروتين الغلاف فيروس MS2 كاملًا بوصفه قالبًا. فالـRNA الخاص به محبوس داخل القُفَيصة، فلا مجال لأي رابطة نوعية مع الـRNA، كما أن حجمه لا يتغير مع الملح.
مزج الباحثون الفيروسات بأزواج من بروتين الغلاف (ثنائيات، dimers) بتركيزات من 1.25 إلى 20 ميكرومولار، وفحصوا النتيجة بعد 10 دقائق بمجهر إلكتروني، وبالهلامات، وبتشتّت الضوء، وباختبارات العدوى.
أغلفة تنمو على أغلفة
- تحت 5 ميكرومولار، لم يحدث شيء. وابتداءً من هذا التركيز، تكوّنت طبقات بروتينية إضافية حول الفيروسات.
- عند 5 ميكرومولار — أي 100 زوج من بروتين الغلاف لكل فيروس، وهو ما يكفي نظريًا لغلاف ثانٍ كامل — لم تحمل طبقةً إلا قلةٌ من الفيروسات، وكانت ناقصة.
- عند 15 ميكرومولار فما فوق، بدت معظم الفيروسات ملفوفة بالكامل في صور المجهر، وكثير منها بطبقة ثالثة أو أكثر، وتشاركت بعض أزواج الفيروسات غلافًا خارجيًا واحدًا. ومع ذلك يذكر المؤلفون أيضًا جسيمات كثيرة بلا طبقة أو بطبقة جزئية فقط عند 15 ميكرومولار، وبعض الفيروسات العارية حتى عند 20.
- بروتينات الغلاف وحدها، عند 15 ميكرومولار، لم تبنِ شيئًا في غياب الفيروسات: فالفيروس يعمل بمثابة بذرة.
الشحنات والملح
عند القياس في الظروف نفسها، تحمل أزواج بروتين الغلاف شحنة ظاهرية موجبة، والفيروسات شحنة سالبة. والملح مهم: فالطبقات الإضافية النظيفة لم تتكوّن إلا عند نحو 100 ميليمولار من كلوريد الصوديوم. ومن دون ملح، تكتّلت الفيروسات معًا؛ وعند 1,000 ميليمولار، خرجت الأغلفة متقطعة.
هل كان بروتين النضج الخاص بالفيروس — البروتين الذي يستخدمه للتشبث بالبكتيريا — هو نقطة البداية؟ لا: فقد تكوّنت طبقات إضافية أيضًا حول جسيمات شبيهة بالفيروسات تفتقر إليه. لكن الطبقات الجديدة تحجبه أحيانًا بالفعل. فكلما أُضيف مزيد من بروتين الغلاف، قلّ التصاق الفيروسات المغلَّفة بالشُّعيرات F (F-pili) لدى البكتيريا، وهي البنى التي يرتبط بها هذا البروتين، وقلّ عدد البكتيريا التي أصابتها. وبما أن بعض الفيروسات المغلَّفة ظل يلتصق، فيبدو أن الطبقات تستقر في مواضع عشوائية من الغلاف.
معطف يتوقف في منتصف الطريق
يرى المؤلفون أن الطبقات الإضافية تنمو انطلاقًا من بذرة: إذ يجب أن تتكوّن رقعة أولى، وهو ما يتطلب كمية كافية من البروتين، ثم تنتشر. والعتبة، 5 ميكرومولار، أعلى من نحو 2 ميكرومولار التي وُجدت سابقًا للأغلفة النامية حول RNA عارٍ، وهو ما يتسق مع قالب لا يقدّم أي روابط نوعية.
لماذا يتوقف كثير من المعاطف الثانية قبل أن ينغلق؟ يقترح المؤلفون كلفة مرونية: فالقُفَيصة أكثر صلابة من الـRNA، والطبقة الخارجية تحتاج إلى انحناء مختلف عن انحناء الغلاف الذي تستند إليه. ويخلصون إلى أن التجاذب الكهربائي وحده قادر على قيادة تجميع الأغلفة، حتى في فيروس معروف بروابط RNA–بروتين النوعية. وقد تساعد الجسيمات متعددة الطبقات يومًا ما على تصميم جسيمات شبيهة بالفيروسات أكثر متانة، لنقل الأدوية مثلًا — لكن ذلك يبقى احتمالًا، لم يُختبر هنا إلا في أنبوب اختبار.