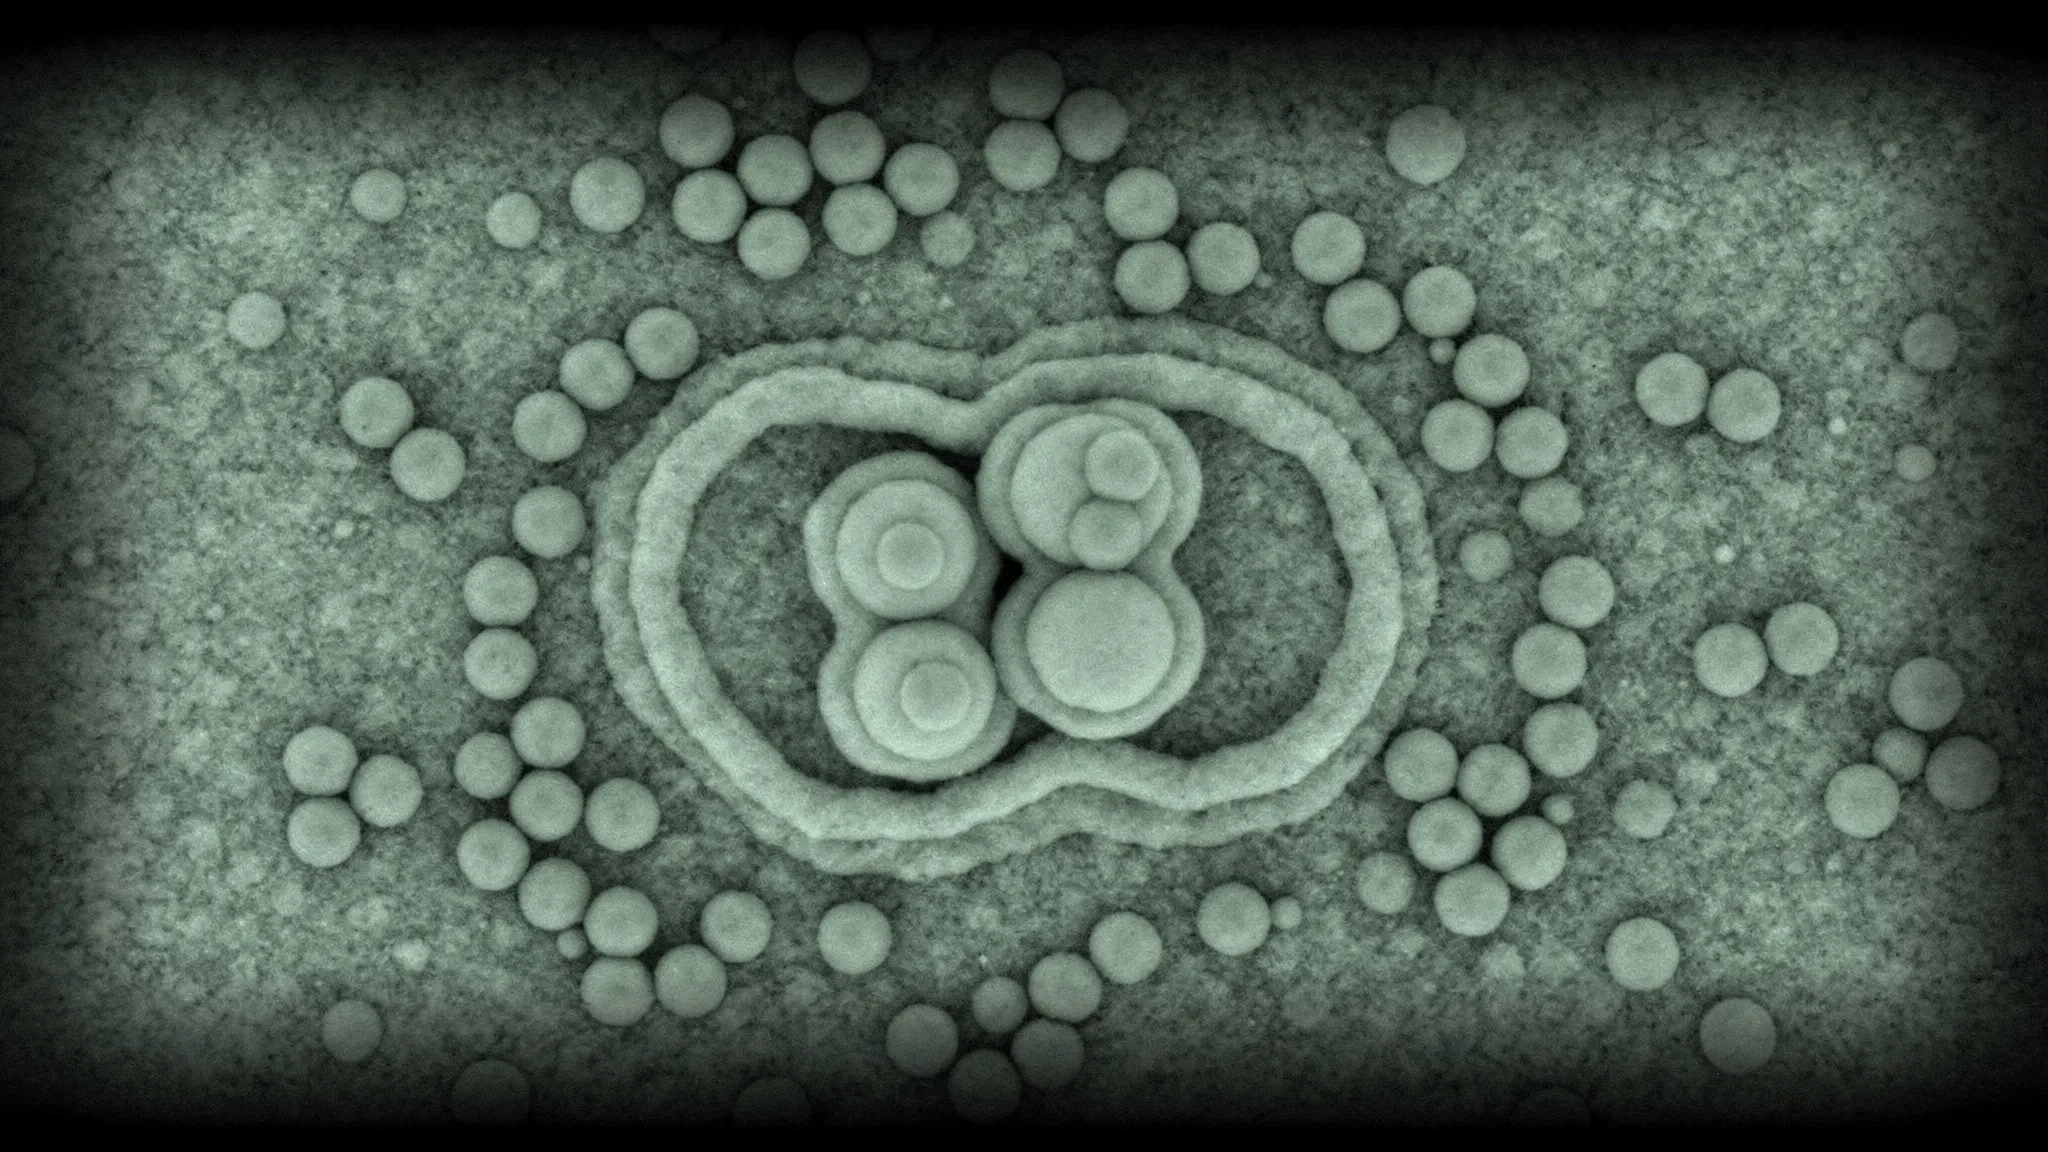
மின் ஈர்ப்பால் கட்டப்பட்ட இரண்டாவது மேலங்கியைப் பெறும் ஒரு வைரஸ்
RNA மரபணுத்தொகுதியைக் (genome) கொண்ட பல எளிய வைரஸ்கள் தம்மைத் தாமே கட்டியெழுப்புகின்றன. தொற்றுக்குள்ளான செல்கள் ஒரு கேப்சிட் புரதத்தின் (coat protein) பிரதிகளை ஏராளமாக உற்பத்தி செய்கின்றன; இந்தப் பிரதிகள் வைரஸ் RNA-வைச் சுற்றி ஒன்றுகூடி, கேப்சிட் (capsid) எனும் பாதுகாப்பு ஓட்டை உருவாக்குகின்றன. E. coli பாக்டீரியத்தைத் தொற்றும் வைரஸான MS2 எனும் பாக்டீரியா உண்ணியில் (bacteriophage), இது ஒரு சோதனைக் குழாயிலும் நிகழ்கிறது: 180 கேப்சிட் புரதங்கள் MS2-இன் RNA-வைச் சுற்றி ஒன்றுகூடி, சுமார் 30 நானோமீட்டர் அகலமுள்ள, உண்மையான வைரஸின் அதே கட்டமைப்பைக் கொண்ட ஓர் ஓட்டை உருவாக்குகின்றன.
இந்த ஒன்றுகூடலை இயக்குவது எது? MS2 பற்றிய பெரும்பாலான ஆய்வுகள், அதன் RNA-வின் ஒரு பகுதிக்கும் கேப்சிட் புரதத்துக்கும் இடையிலான வலுவான, குறிப்பிட்ட ஒரு பிணைப்பின் மீது கவனம் செலுத்துகின்றன. ஆனால் அந்தப் பகுதி இல்லாத RNA-வைச் சுற்றியும் ஓடுகள் உருவாகின்றன. மற்றொரு சாத்தியம், RNA-விலும் புரதத்திலும் உள்ள மின்னூட்டம் கொண்ட தொகுதிகளுக்கு இடையிலான வெறும் மின் ஈர்ப்பு; கரைசலில் உள்ள உப்பு அதைச் சீர்செய்கிறது. MS2-இல் இந்த இரண்டு விளைவுகளையும் பிரித்தறிவது கடினம்.
தனக்குத் தானே வார்ப்புருவாகும் வைரஸ்
ஹார்வர்ட் பல்கலைக்கழகம் (Harvard University), பிரின்ஸ்டன் பல்கலைக்கழகம் (Princeton University), சான் டியேகோ மாநிலப் பல்கலைக்கழகம் (San Diego State University) ஆகியவற்றில் உள்ள LaNell Williams, Amelia Paine, Kellianne Kornick, Rees Garmann, Vinothan Manoharan ஆகியோர் அவற்றைப் பிரிக்க ஒரு வழியைக் கண்டறிந்தனர். RNA-வுக்குப் பதிலாக, அவர்கள் கேப்சிட் புரதத்துக்கு ஒரு முழு MS2 வைரஸை வார்ப்புருவாக (template) அளித்தனர். அதன் RNA கேப்சிட்டுக்குள் பூட்டப்பட்டுள்ளதால், குறிப்பிட்ட RNA பிணைப்பு எதுவும் சாத்தியமில்லை; மேலும் அதன் அளவு உப்புடன் மாறுவதில்லை.
அவர்கள் வைரஸ்களை, 1.25 முதல் 20 மைக்ரோமோலார் வரையிலான செறிவுகளில் கேப்சிட் புரத இணைகளுடன் (இருபடிகள், dimers) கலந்து, 10 நிமிடங்களுக்குப் பிறகு விளைவை ஓர் எலக்ட்ரான் நுண்ணோக்கி, ஜெல்கள், ஒளிச் சிதறல் (light scattering), தொற்றுச் சோதனைகள் ஆகியவற்றைக் கொண்டு ஆராய்ந்தனர்.
ஓடுகளின் மேல் வளரும் ஓடுகள்
- 5 மைக்ரோமோலாருக்குக் கீழே, எதுவும் நிகழவில்லை. அந்தச் செறிவிலிருந்து மேலே, வைரஸ்களைச் சுற்றி கூடுதல் புரத அடுக்குகள் உருவாயின.
- 5 மைக்ரோமோலாரில் — ஒரு வைரஸுக்கு 100 கேப்சிட் புரத இணைகள், கொள்கையளவில் ஒரு முழு இரண்டாவது ஓட்டுக்குப் போதுமானது — ஒரு சில வைரஸ்களுக்கு மட்டுமே ஓர் அடுக்கு இருந்தது; அதுவும் முழுமையற்றதாக இருந்தது.
- 15 மைக்ரோமோலாரிலும் அதற்கு மேலும், நுண்ணோக்கிப் படங்களில் பெரும்பாலான வைரஸ்கள் முழுமையாகச் சுற்றப்பட்டவையாகத் தோன்றின; பலவற்றுக்கு மூன்றாவது அடுக்கோ அதற்கு மேலோ இருந்தது; சில வைரஸ் இணைகள் ஒரே வெளி ஓட்டைப் பகிர்ந்துகொண்டன. ஆயினும், 15 மைக்ரோமோலாரில் அடுக்கே இல்லாத அல்லது பகுதி அடுக்கு மட்டுமே கொண்ட பல துகள்களையும், 20-இல் கூடச் சில வெற்று வைரஸ்களையும் ஆசிரியர்கள் பதிவு செய்கின்றனர்.
- வைரஸ்கள் இல்லாதபோது, 15 மைக்ரோமோலாரில் கேப்சிட் புரதங்கள் தனியாக எதையும் கட்டவில்லை: வைரஸ் ஒரு விதையாக (seed) செயல்படுகிறது.
மின்னூட்டங்களும் உப்பும்
அதே நிலைமைகளில் அளக்கப்பட்டபோது, கேப்சிட் புரத இணைகள் நேர் தோற்ற மின்னூட்டத்தையும் (apparent charge), வைரஸ்கள் எதிர் மின்னூட்டத்தையும் கொண்டுள்ளன. உப்பு முக்கியமானது: சுமார் 100 மில்லிமோலார் சோடியம் குளோரைடில் மட்டுமே தூய்மையான கூடுதல் அடுக்குகள் உருவாயின. உப்பு இல்லாமல், வைரஸ்கள் ஒன்றாகக் கொத்தாகத் திரண்டன; 1,000 மில்லிமோலாரில், ஓடுகள் திட்டுத்திட்டாக உருவாயின.
பாக்டீரியாக்களைப் பற்றிக்கொள்ள வைரஸ் பயன்படுத்தும் புரதமான அதன் முதிர்வுப் புரதம் (maturation protein) தொடக்கப் புள்ளியாகச் செயல்பட்டதா? இல்லை: அது இல்லாத வைரஸ் போன்ற துகள்களைச் (virus-like particles) சுற்றியும் கூடுதல் அடுக்குகள் உருவாயின. எனினும், புதிய அடுக்குகள் சில நேரங்களில் அதை மூடி மறைக்கின்றன. எவ்வளவு அதிகக் கேப்சிட் புரதம் சேர்க்கப்பட்டதோ, அவ்வளவு குறைவாகவே மேலங்கியணிந்த வைரஸ்கள், இந்தப் புரதம் பிணையும் அமைப்புகளான பாக்டீரியாக்களின் F-பைலைகளுடன் (F-pili) ஒட்டிக்கொண்டன; அவை தொற்றிய பாக்டீரியாக்களின் எண்ணிக்கையும் அவ்வளவு குறைவாக இருந்தது. மேலங்கியணிந்த சில வைரஸ்கள் இன்னும் ஒட்டிக்கொண்டதால், அடுக்குகள் ஓட்டின் மீது சீரற்ற இடங்களில் அமர்வதாகத் தெரிகிறது.
பாதியிலேயே நின்றுவிடும் ஒரு மேலங்கி
கூடுதல் அடுக்குகள் ஒரு விதையிலிருந்து வளர்வதாக ஆசிரியர்கள் பார்க்கின்றனர்: முதலில் ஒரு திட்டு உருவாக வேண்டும், அதற்குப் போதுமான புரதம் தேவை; பின்னர் அது பரவுகிறது. வாசல் அளவான 5 மைக்ரோமோலார், வெற்று RNA-வைச் சுற்றி வளரும் ஓடுகளுக்கு முன்பு கண்டறியப்பட்ட சுமார் 2 மைக்ரோமோலாரை விட அதிகம்; குறிப்பிட்ட பிணைப்புகள் எதையும் வழங்காத ஒரு வார்ப்புருவுக்கு இது பொருந்துகிறது.
இரண்டாவது மேலங்கிகளில் பல ஏன் மூடுவதற்கு முன்பே நின்றுவிடுகின்றன? ஆசிரியர்கள் ஒரு மீள்தன்மைச் (elastic) செலவை முன்மொழிகின்றனர்: ஒரு கேப்சிட் RNA-வை விட விறைப்பானது; ஒரு வெளி அடுக்குக்கு, அது தாங்கியிருக்கும் ஓட்டை விட வேறுபட்ட ஒரு வளைவு தேவைப்படும். குறிப்பிட்ட RNA–புரதப் பிணைப்புகளுக்குப் பெயர்பெற்ற ஒரு வைரஸிலும் கூட, மின் ஈர்ப்பு மட்டுமே ஓடு ஒன்றுகூடலை இயக்க முடியும் என்று அவர்கள் முடிவு செய்கின்றனர். அடுக்குகளாலான துகள்கள், எடுத்துக்காட்டாக மருந்துகளைச் சுமந்து செல்ல, இன்னும் உறுதியான வைரஸ் போன்ற துகள்களை வடிவமைக்க ஒருநாள் உதவக்கூடும் — ஆனால் அது ஒரு சாத்தியம் மட்டுமே; இங்கே ஒரு சோதனைக் குழாயில் மட்டுமே சோதிக்கப்பட்டது.