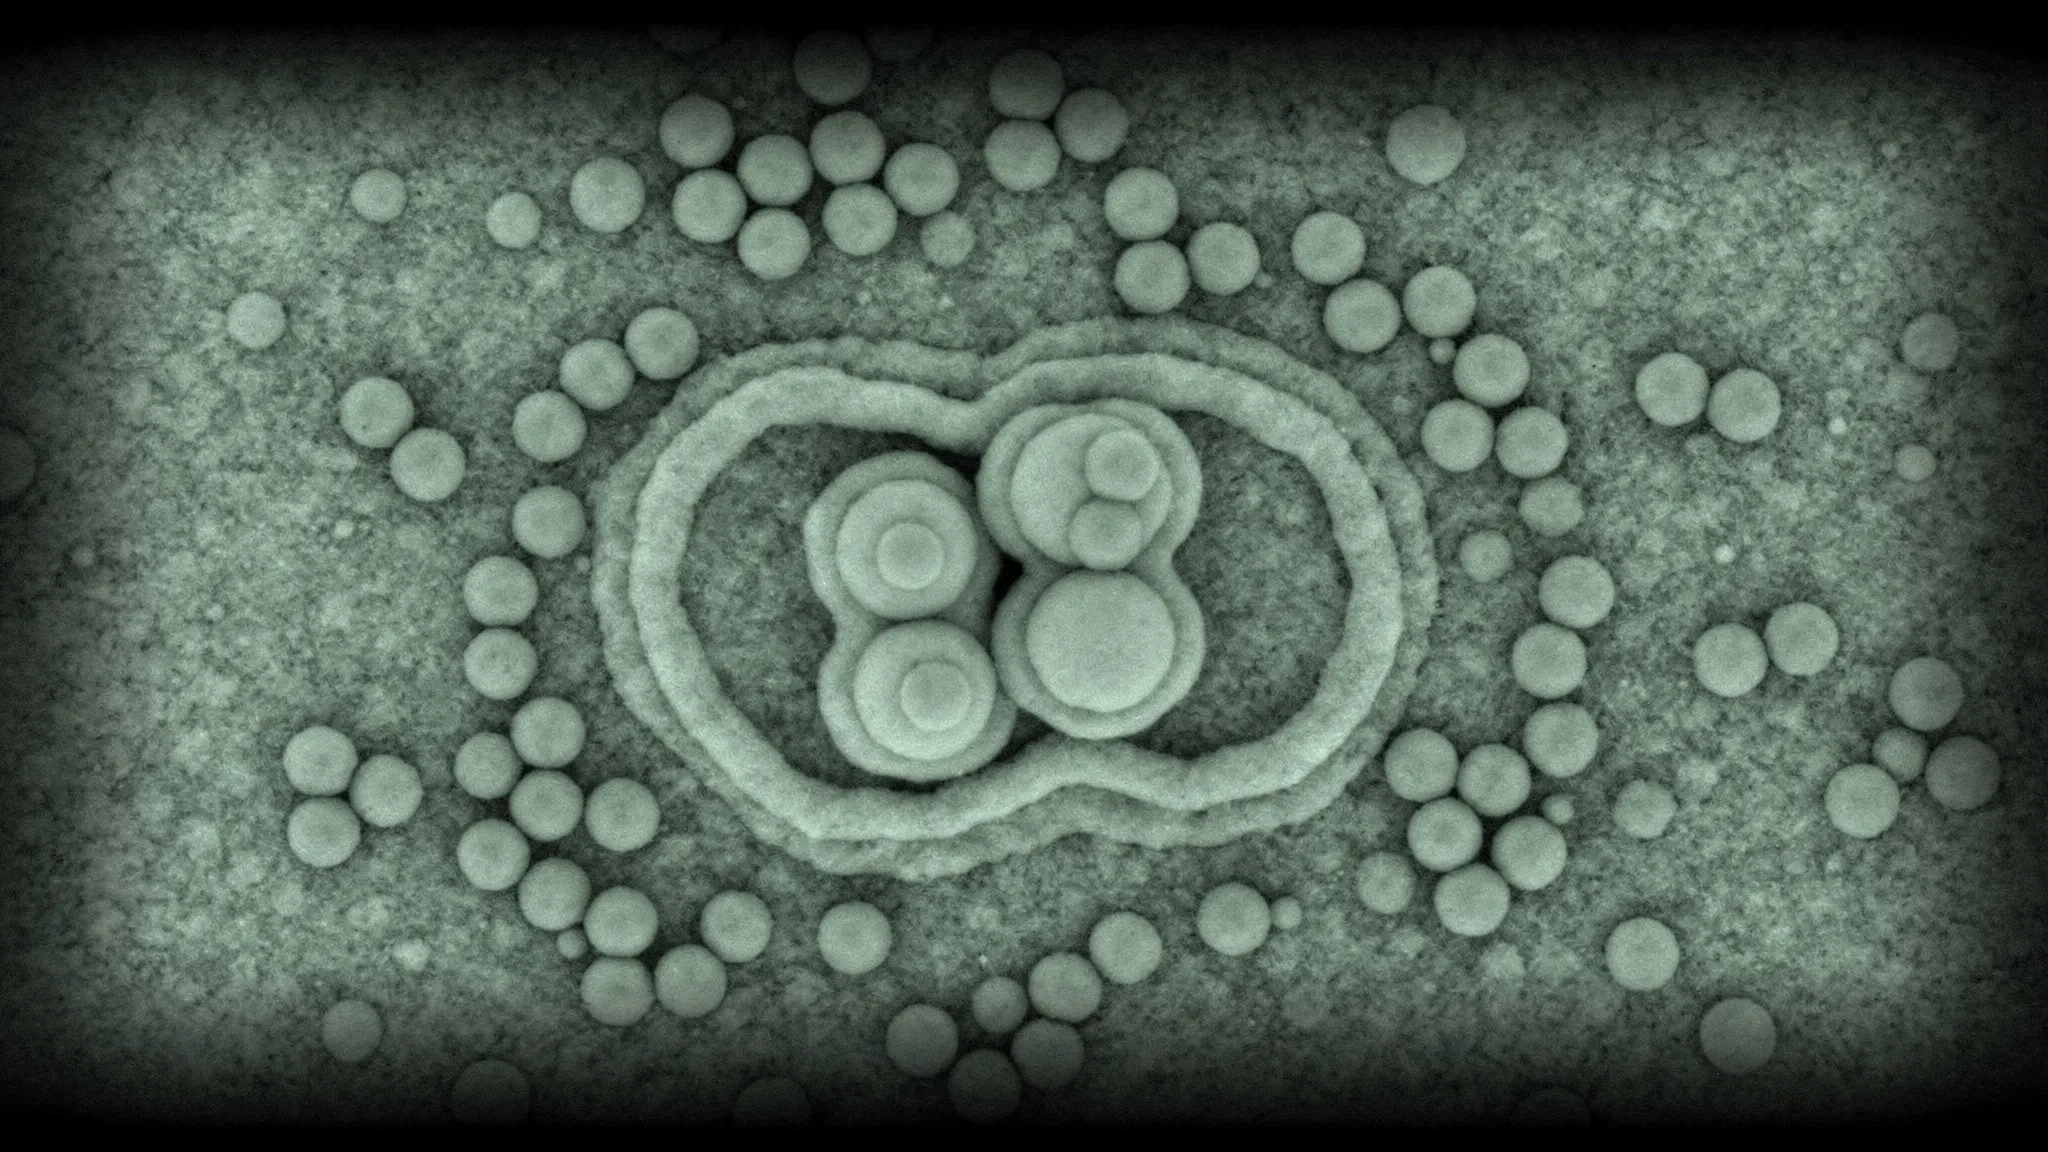
ウイルスが電気的な引力で二枚目の殻をまとう
RNAをゲノムとする単純なウイルスの多くは、自分自身を組み立てる。感染した細胞は殻タンパク質のコピーを次々と作り出し、そのコピーがウイルスRNAの周りに集まって保護用の殻、すなわちカプシドになる。大腸菌(E. coli)に感染するバクテリオファージMS2では、これが試験管の中でも起こる。殻タンパク質180個がMS2のRNAの周りに集まり、本物のウイルスと同じ構造をもつ幅約30ナノメートルの殻ができるのだ。
何がこの組み立てを駆動しているのか。MS2の研究の多くは、そのRNAの一領域と殻タンパク質との間の強く特異的な結合に注目してきた。しかし、その領域を欠いたRNAの周りにも殻はできる。もう一つの候補は、RNAとタンパク質の荷電した部分のあいだに働く単純な電気的な引力で、これは溶液中の塩によって加減される。MS2では、この二つの効果を切り分けるのが難しい。
ウイルス自身を鋳型にする
ハーバード大学、プリンストン大学、サンディエゴ州立大学のLaNell Williams、Amelia Paine、Kellianne Kornick、Rees Garmann、Vinothan Manoharanは、両者を切り分ける方法を見つけた。殻タンパク質に、RNAではなくMS2ウイルスそのものを鋳型として差し出したのである。ウイルスのRNAはカプシドの中に閉じ込められているので、特異的なRNA結合は起こりえず、その大きさも塩によって変わらない。
研究チームは、ウイルスに殻タンパク質の二量体を1.25〜20マイクロモルの濃度で混ぜ、10分後の結果を電子顕微鏡、ゲル、光散乱、感染実験で調べた。
殻の上に育つ殻
- 5マイクロモルを下回ると、何も起こらなかった。その濃度以上では、ウイルスの周りに余分なタンパク質の層ができた。
- 5マイクロモル、つまりウイルスあたり殻タンパク質の二量体100組(原理的には二枚目の殻をまるごと作れる量)では、層をもつウイルスはわずかで、その層も不完全だった。
- 15マイクロモル以上では、顕微鏡写真の大半のウイルスが完全に包まれて見え、三層目以上をもつものも多く、二個のウイルスが一枚の外殻を共有している例もあった。ただし著者らは、15マイクロモルでも層のない粒子や部分的な層しかもたない粒子が多数あり、20マイクロモルでも裸のウイルスがいくらか残ると報告している。
- ウイルスがないと、15マイクロモルの殻タンパク質だけでは何もできなかった。ウイルスが種として働いているのである。
電荷と塩
同じ条件で測ると、殻タンパク質の二量体は見かけ上正の電荷を、ウイルスは負の電荷をもっていた。塩も重要だった。きれいな追加の層ができたのは、塩化ナトリウムが約100ミリモルのときだけである。塩がないとウイルスは互いに固まり、1,000ミリモルでは殻がむらのある仕上がりになった。
ウイルスが細菌に取りつくために使うタンパク質、成熟タンパク質が出発点になっていたのだろうか。そうではない。それを欠いたウイルス様粒子の周りにも追加の層はできた。ただし新しい層は、ときにこのタンパク質を覆い隠す。殻タンパク質を加えるほど、層をまとったウイルスは、このタンパク質が結合する細菌のF線毛に付きにくくなり、感染させる細菌も減った。層をまとっても付着するウイルスがあることから、層は殻の上の無作為な場所にできるらしい。
途中で止まる殻
著者らは、追加の層が種から育つものと見ている。まず最初の小片ができなければならず、そのためには十分な量のタンパク質が必要で、そこから広がっていく。その閾値である5マイクロモルは、裸のRNAの周りに殻ができるときに以前得られた約2マイクロモルより高く、特異的な結合を差し出せない鋳型と符合する。
では、なぜこれほど多くの二枚目の殻が閉じる前に止まってしまうのか。著者らは弾性的な代償を挙げる。カプシドはRNAより硬く、外側の層は、その下の殻とは異なる曲率を必要とするからだ。そして、特異的なRNA–タンパク質結合で知られるウイルスでさえ、電気的な引力だけで殻の組み立てを駆動できると結論づけている。層をもつ粒子は、いずれより頑丈なウイルス様粒子を設計する役に立つかもしれない。たとえば薬を運ばせるために。ただしそれは可能性にとどまり、ここで試されたのは試験管の中だけである。