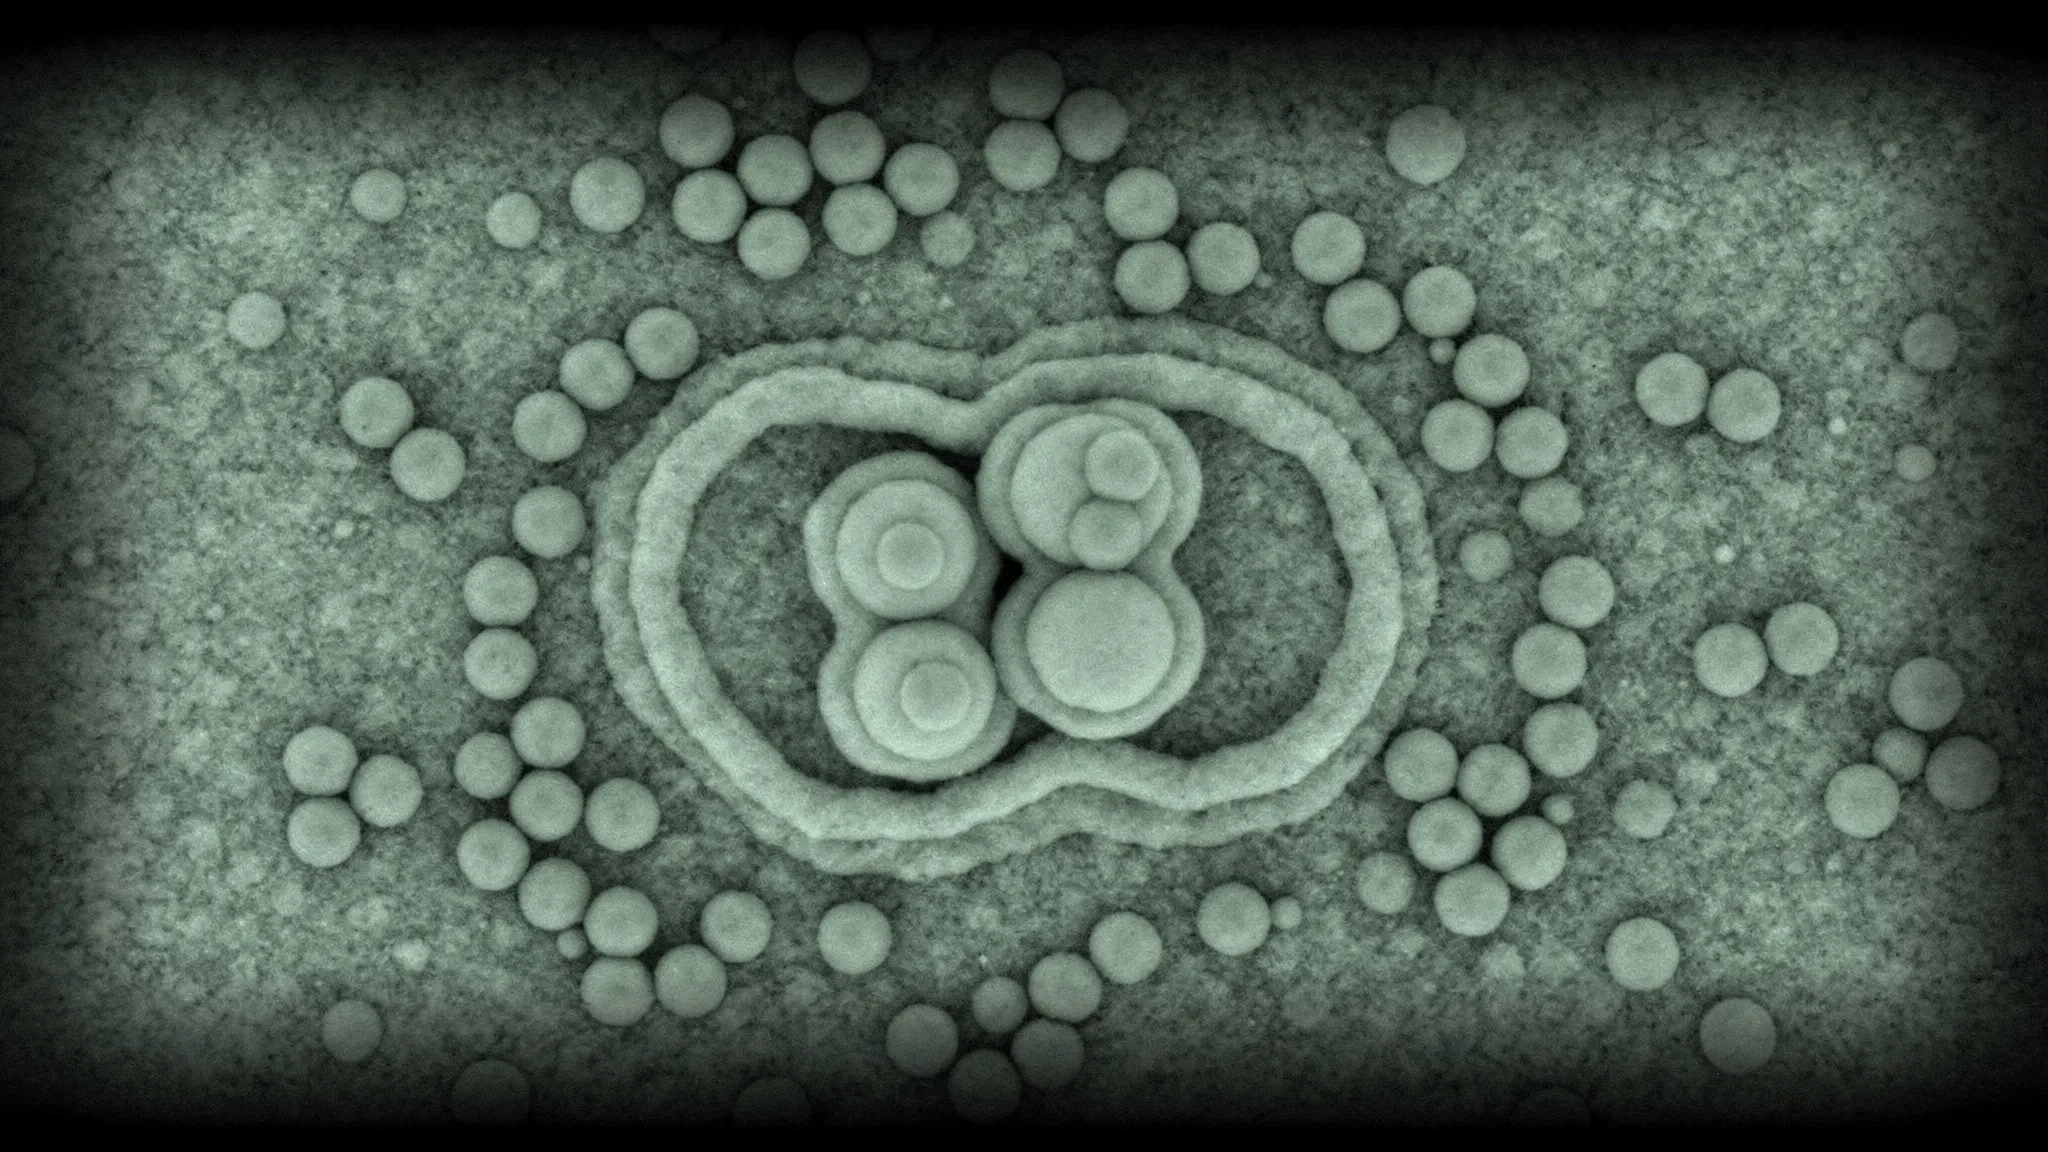
ویروسی که پوشش دوم میگیرد، ساختهٔ کشش الکتریکی
بسیاری از ویروسهای ساده با ژنوم RNA خودشان را سر هم میکنند. سلولهای آلوده پشت سر هم نسخههایی از یک پروتئین کپسید تولید میکنند، و این نسخهها دور RNA ویروس به پوستهای محافظ سر هم میشوند که کپسید نام دارد. برای باکتریوفاژ MS2، ویروسی که باکتری E. coli را آلوده میکند، این کار حتی در لولهٔ آزمایش هم جواب میدهد: 180 پروتئین کپسید دور RNA ویروس MS2 به پوستهای به پهنای حدود 30 نانومتر سر هم میشوند، با همان ساختار ویروس واقعی.
چه چیزی این سرهمشدن را پیش میبرد؟ بیشتر پژوهشها دربارهٔ MS2 بر پیوندی قوی و ویژه میان یک ناحیه از RNA آن و پروتئین کپسید تمرکز دارند. اما پوستهها دور RNAهایی که این ناحیه را ندارند هم شکل میگیرند. نامزد دیگر، کشش الکتریکی ساده میان گروههای باردار روی RNA و روی پروتئین است که نمکِ محلول آن را تنظیم میکند. در MS2 جدا کردن این دو اثر از هم دشوار است.
ویروس در نقش قالب خودش
لانل ویلیامز (LaNell Williams)، آملیا پین (Amelia Paine)، کلیان کورنیک (Kellianne Kornick)، ریس گارمان (Rees Garmann) و وینوتان منوهران (Vinothan Manoharan)، در دانشگاه هاروارد، دانشگاه پرینستون و دانشگاه ایالتی سندیگو، راهی برای جدا کردن آنها یافتند. آنها بهجای RNA، یک ویروس کامل MS2 را بهعنوان قالب به پروتئین کپسید عرضه کردند. RNA این ویروس درون کپسید محبوس است، پس هیچ پیوند ویژهای با RNA ممکن نیست، و اندازهٔ آن با نمک تغییر نمیکند.
آنها ویروسها را با جفتهای پروتئین کپسید (دیمرها) در غلظتهایی از 1.25 تا 20 میکرومولار مخلوط کردند و پس از 10 دقیقه نتیجه را با میکروسکوپ الکترونی، ژلها، پراکندگی نور و آزمونهای عفونت بررسی کردند.
پوستههایی که روی پوستهها میرویند
- زیر 5 میکرومولار، هیچ اتفاقی نیفتاد. از همین غلظت به بالا، لایههای پروتئینی اضافی دور ویروسها شکل گرفتند.
- در 5 میکرومولار — یعنی 100 جفت پروتئین کپسید به ازای هر ویروس، که در اصل برای یک پوستهٔ دوم کامل کافی است — تنها چند ویروس لایهای داشتند، و آن لایه ناقص بود.
- در 15 میکرومولار و بیشتر، بیشتر ویروسها در تصاویر میکروسکوپی کاملاً پوشیده به نظر میرسیدند، بسیاری با لایهٔ سوم یا بیشتر، و برخی جفتهای ویروس یک پوستهٔ بیرونی مشترک داشتند. با این حال نویسندگان در 15 میکرومولار ذرههای فراوانی را هم گزارش میکنند که هیچ لایهای نداشتند یا تنها لایهای ناقص داشتند، و حتی در 20 هم چند ویروس برهنه.
- پروتئینهای کپسید بهتنهایی، در 15 میکرومولار، بدون حضور ویروسها هیچ چیزی نساختند: ویروس نقش هستهٔ آغازگر را دارد.
بارها و نمک
در همان شرایط اندازهگیری، جفتهای پروتئین کپسید بار ظاهری مثبت دارند و ویروسها بار منفی. نمک اهمیت دارد: لایههای اضافی تمیز فقط در حدود 100 میلیمولار کلرید سدیم شکل گرفتند. بدون نمک، ویروسها به هم چسبیدند و توده شدند؛ در 1,000 میلیمولار، پوستهها وصلهوصله از کار درآمدند.
آیا پروتئین بلوغ ویروس — پروتئینی که ویروس برای چسبیدن به باکتریها به کار میبرد — نقطهٔ آغاز بود؟ نه: لایههای اضافی دور ذرههای شبهویروسی که این پروتئین را ندارند هم شکل گرفتند. با این حال، لایههای تازه گاهی آن را میپوشانند. هرچه پروتئین کپسید بیشتری افزوده شد، ویروسهای پوشیده کمتر به پیلیهای F باکتریها، یعنی همان ساختارهایی که این پروتئین به آنها متصل میشود، چسبیدند و باکتریهای کمتری را آلوده کردند. از آنجا که برخی ویروسهای پوشیده همچنان میچسبیدند، به نظر میرسد لایهها در نقاطی تصادفی روی پوسته مینشینند.
پوششی که نیمهکاره میماند
نویسندگان لایههای اضافی را حاصل رشد از یک هستهٔ آغازگر میدانند: نخست باید وصلهای اولیه شکل بگیرد، که به پروتئین کافی نیاز دارد، سپس این وصله گسترش مییابد. آستانه، یعنی 5 میکرومولار، بالاتر از حدود 2 میکرومولاری است که پیشتر برای رشد پوستهها دور RNA برهنه به دست آمده بود، و این با قالبی جور درمیآید که هیچ پیوند ویژهای برای عرضه ندارد.
چرا این همه پوشش دوم پیش از بسته شدن متوقف میشوند؟ نویسندگان یک هزینهٔ کشسانی را پیشنهاد میکنند: کپسید از RNA سختتر است، و یک لایهٔ بیرونی به انحنایی متفاوت با پوستهای که رویش قرار گرفته نیاز دارد. آنها نتیجه میگیرند که کشش الکتریکی بهتنهایی میتواند سرهمشدن پوسته را پیش ببرد، حتی در ویروسی که به پیوندهای ویژهٔ RNA–پروتئیناش شناخته میشود. ذرههای لایهلایه شاید روزی به طراحی ذرههای شبهویروسی مقاومتر کمک کنند، برای نمونه برای حمل دارو؛ اما این هنوز تنها یک امکان است که اینجا فقط در لولهٔ آزمایش آزموده شده است.