جدلٌ عمره عقود حول أقوى رابطة في التقنية الحيوية تحسمه ماصّة
الستربتافيدين (streptavidin) بروتين يقبض على جزيء يُسمّى البيوتين (biotin) بقوة استثنائية. فثابت التفكك (dissociation constant) بينهما، نحو 4 × 10⁻¹⁴ مولار، يُذكر كثيرًا بوصفه من أقوى التفاعلات غير التساهمية في علم الأحياء. ومع تحرّر بطيء جدًا ونوعية عالية، يجعل ذلك هذا الثنائي أداةً أساسية في التقنية الحيوية النانوية، من المقايسات المناعية إلى تثبيت الجزيئات على الأسطح.
يتكوّن الستربتافيدين من أربع وحدات فرعية متطابقة، فيها أربعة مواضع ارتباط للبيوتين. وهذا يطرح سؤالًا قديمًا: هل هذه المواضع تعاونية (cooperative)؟ هل يجعل بيوتينٌ مستقرّ في مكانه ارتباطَ التالي أسهل، أم أصعب؟ على مرّ العقود، أفادت دراسات بتعاونية موجبة، وأخرى بتعاونية سالبة، وأخرى بانعدامها. ووجدت دراسة من عام 1995 يُستشهد بها كثيرًا انعدامَ التعاونية، ولكن فقط بعد ترك الخليط يبلغ التوازن طوال يومين، وهي مدة أطول بكثير مما تنتظره معظم التطبيقات الحديثة.
مشكلة الواسمات
يستطيع الفحص المجهري الفلوري تتبّع جزيئات منفردة، لذا يبدو مثاليًا لمراقبة ارتباط البيوتين. لكنه يتطلب عادةً تثبيت أصباغ فلورية. وعلى الستربتافيدين، تقع الأصباغ على بُعد نانومترات بعضها من بعض فيُخفت بعضها بعضًا، مما يطمس عدّ أحداث الارتباط، وقد ثبت أن ربط الأصباغ يُضعف ارتباط البيوتين نفسه.
تجنّبت مالافيكا كاييل فيدو (Malavika Kayyil Veedu) وجيروم فنغر (Jérôme Wenger) وزملاؤهما في معهد فرينل (Fresnel Institute) في مرسيليا (جامعة إكس-مرسيليا، والمركز الوطني للبحث العلمي CNRS، وCentrale Med) الواسماتِ كليًا. فقد أضاؤوا البروتين بضوء فوق بنفسجي طوله الموجي 295 نانومترًا وسجّلوا التوهّج الخافت لبقايا التريبتوفان (tryptophan) فيه، وهي من لبنات بناء البروتين.
عدّ البروتينات الممتلئة
لا يعدّ البروتوكول إلا جزيئات الستربتافيدين التي تحمل البيوتينات الأربعة كلها. خلط الفريق 200 نانومولار من الستربتافيدين مع كميات متزايدة من البيوتين، ثم أضاف حبيبات سيليكا مغلّفة بالبيوتين: فكل بروتين فيه موضع شاغر يلتصق بها ويُزال بالطرد المركزي. وما يبقى في المحلول، أي البروتينات الممتلئة بالكامل، يُقاس بتوهّجه فوق البنفسجي.
شكل المنحنى الناتج يروي القصة. فإذا كانت المواضع مستقلة، يرتفع كسر البروتينات الممتلئة بالكامل تدريجيًا مع إضافة البيوتين. ومع التعاونية الموجبة، يتراكم البيوتين على بضعة بروتينات أولًا فيرتفع المنحنى مبكرًا وبحدّة؛ ومع التعاونية السالبة، يتأخر الامتلاء الكامل. وترسم عمليات محاكاة، يرد رمزها البرمجي كاملًا في الورقة، كل حالة من هذه الحالات.
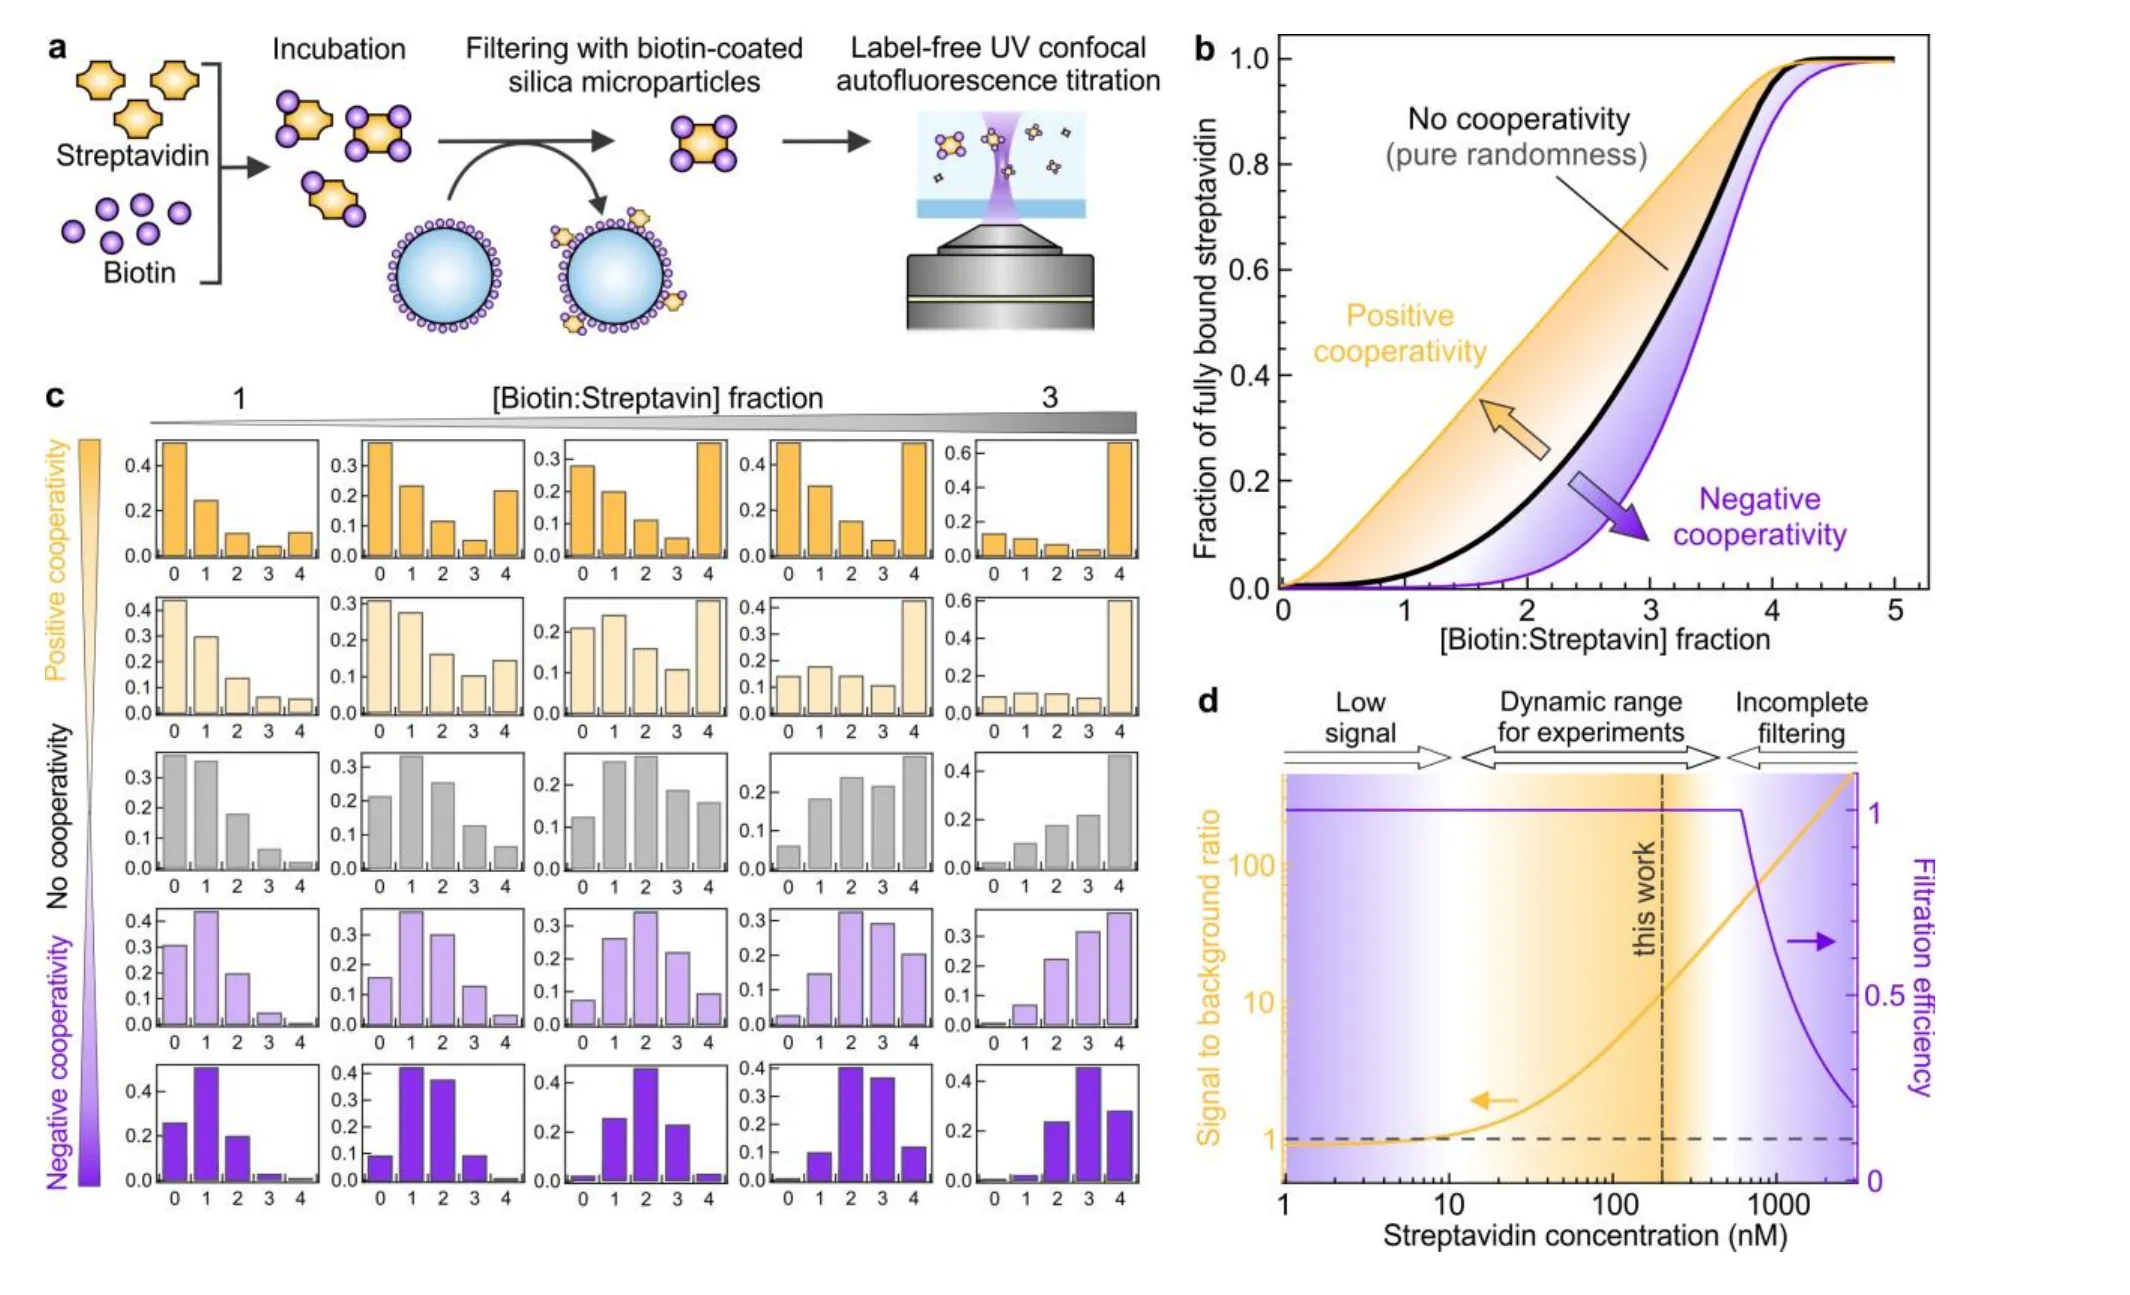
(a) البروتوكول: الحضن، ثم إزالة البروتينات غير الممتلئة بالكامل على حبيبات مغلّفة بالبيوتين، ثم القياس بالأشعة فوق البنفسجية بلا واسم. (b) كسر الستربتافيدين الممتلئ بالكامل في المحاكاة، في حالات انعدام التعاونية والتعاونية الموجبة والتعاونية السالبة. (c) إشغال المواضع الأربعة في المحاكاة. (d) نطاق العمل. — الشكل 1، Kayyil Veedu وآخرون (2026)، arXiv:2610.41363.
تجربة واحدة وجوابان
أجرى الفريق التجربة نفسها مرتين، ولم يغيّر سوى تركيز محلول البيوتين الذي أضافه بالماصّة. فمع بيوتين مخفّف (1.25 أو 2.5 ميكرومولار، يُضاف بأحجام تزيد دائمًا على 15 ميكرولترًا)، تتبع البيانات منحنى المواضع المستقلة. ومع بيوتين مركّز (25 ميكرومولار، يُضاف في قطرات من بضعة ميكرولترات)، تقع البيانات تمامًا في منطقة التعاونية الموجبة.
لا يمكن أن يكون البروتين الأمرين معًا. فبيانات المحلول المخفّف تطابق نموذجًا بلا تعاونية، بعد احتساب قدر يسير من عدم كمال الترشيح. فماذا حدث إذن مع القطرات المركّزة؟
أسرع من التحريك
يرتبط البيوتين بالستربتافيدين بسرعة كبيرة: ففي تراكيز من رتبة الميكرومولار، يحدث ذلك في غضون بضع عشرات من أجزاء الألف من الثانية، أي أسرع بكثير مما يمكن خلط محلول به. لذا تتفاعل قطرة صغيرة من بيوتين مركّز مع البروتينات المحيطة بها قبل أن تنتشر. فيكون هناك محليًا من البيوتين لكل بروتين أكثر بكثير من المتوسط، فتمتلئ مجموعة فرعية من البروتينات بالكامل. وعلى المنحنى، يبدو ذلك تمامًا مثل التعاونية.
نمذج الفريق ذلك ببساطة: يحدث التفاعل داخل كرة نصف قطرها 1.5 R + 1 مليمتر، حيث R نصف قطر القطرة المضافة. ويأتي المعامل 1.5 من تصوير قطرات حبر أسود تنتشر في الماء؛ أما المليمتر الإضافي فضُبط على البيانات. ومن دون أي تعاونية على الإطلاق، يعيد هذا النموذج إنتاج النقاط «التعاونية».
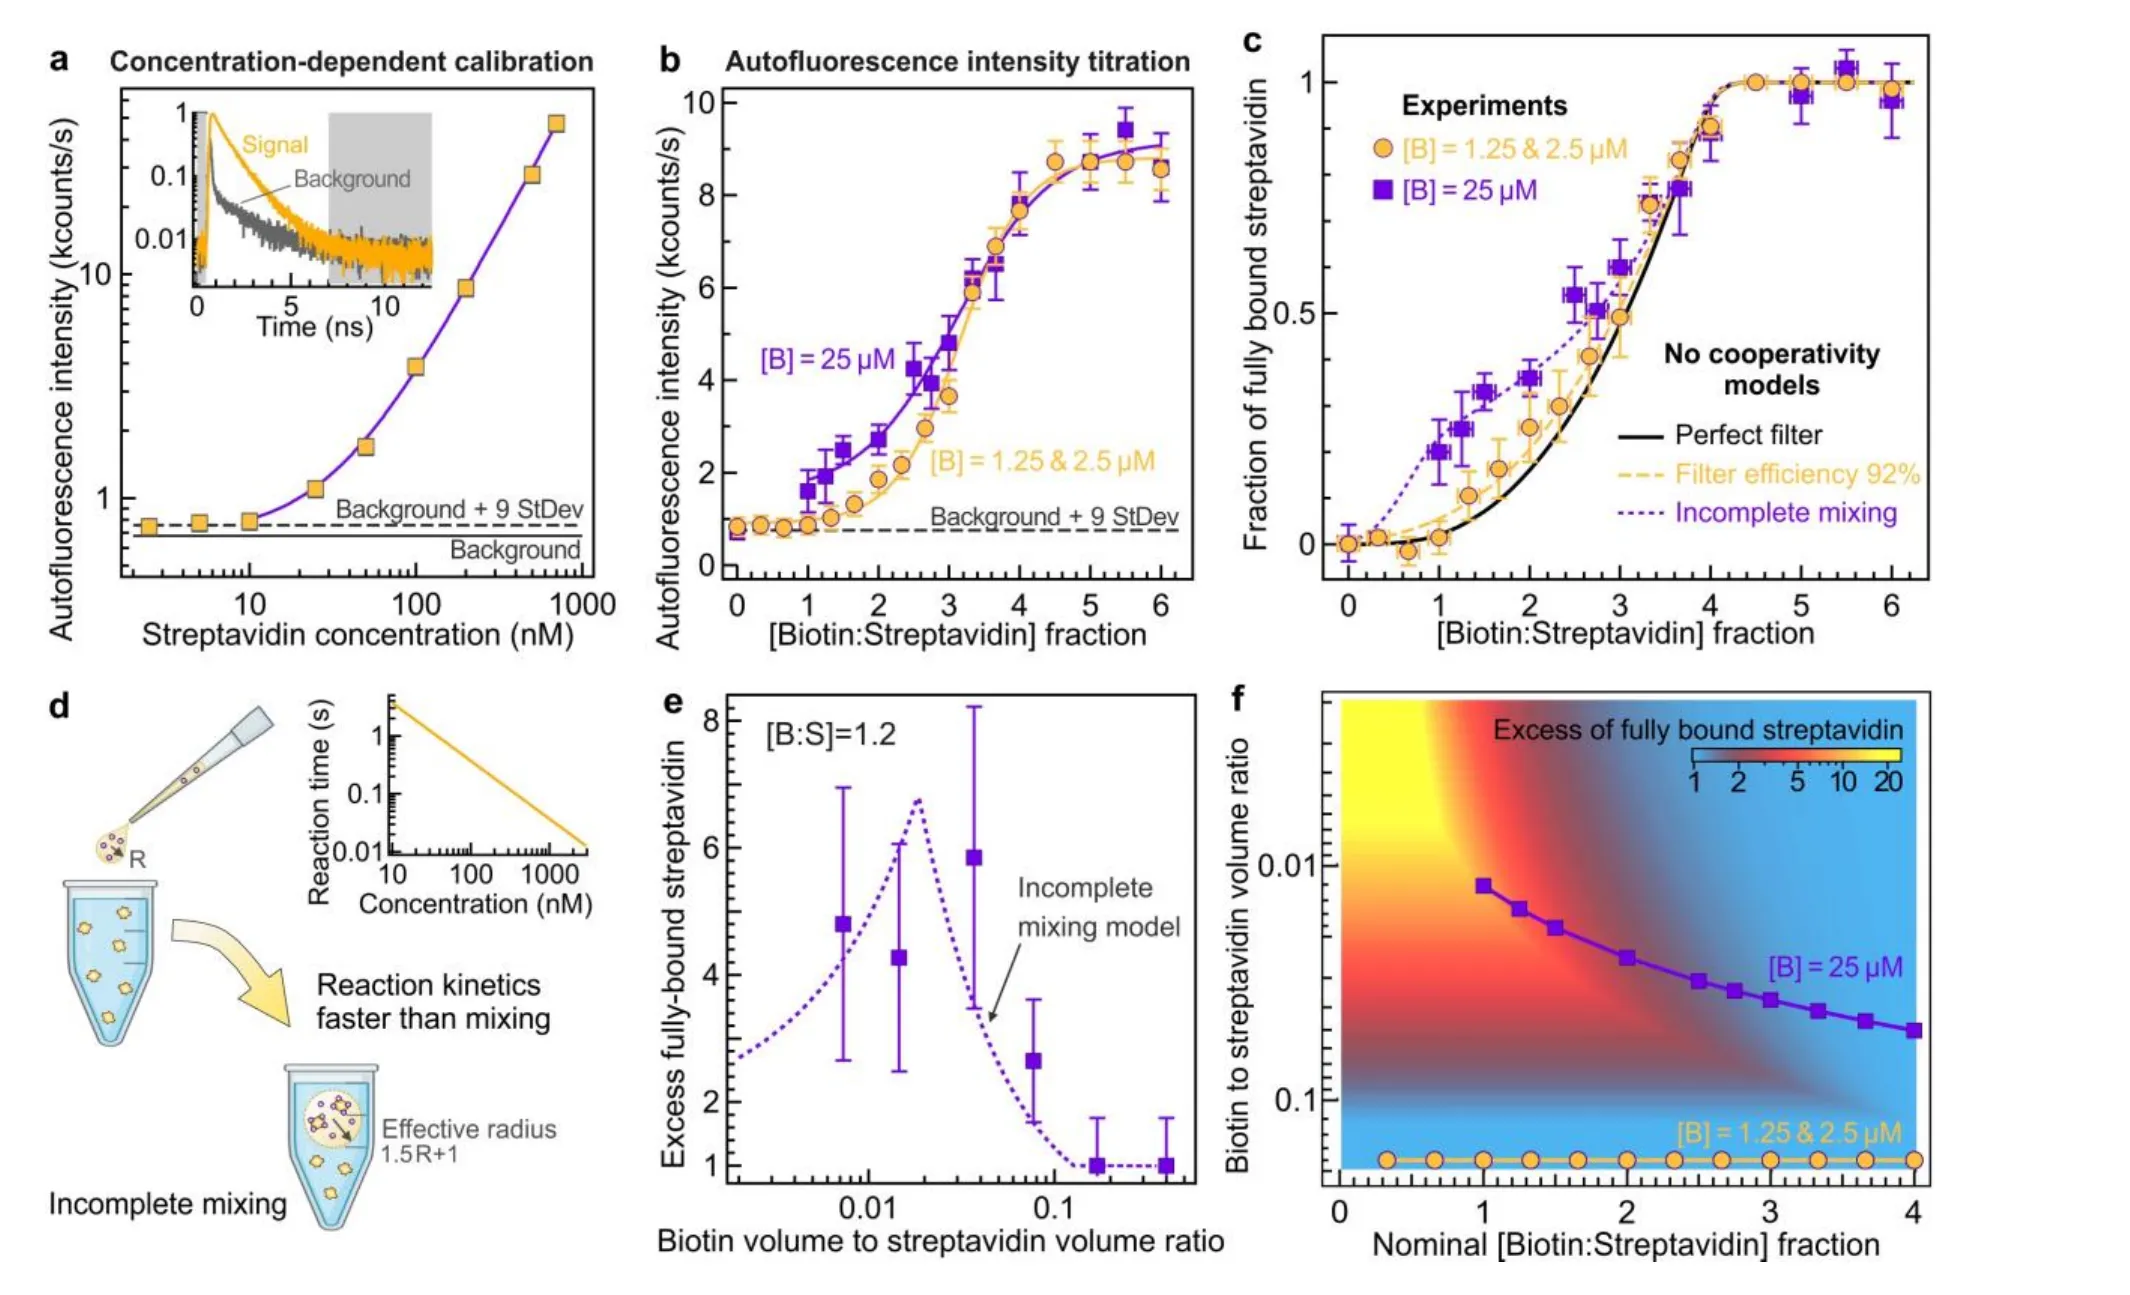
(c) البيوتين المخفّف (بالبرتقالي) يتبع المنحنى بلا تعاونية؛ والبيوتين المركّز (بالبنفسجي) يبدو تعاونيًا، ويطابقه نموذج الخلط غير المكتمل. (d) النموذج. (e) فائض البروتينات الممتلئة بالكامل مع تقلّص الحجم المضاف. (f) خريطة الظروف المعرّضة للأثر الزائف. — الشكل 2، Kayyil Veedu وآخرون (2026)، arXiv:2610.41363.
خريطة لإضافة البيوتين بحذر
لاختبار الفكرة مباشرة، ثبّت الفريق النسبة عند 1.2 بيوتين لكل ستربتافيدين ولم يغيّر سوى حجم البيوتين المضاف. ومع تقلّص القطرة، ازداد فائض البروتينات الممتلئة بالكامل، وبلغ ذروته حين كان حجم البيوتين 2% من حجم البروتين، حيث تبلغ النسبة المحلية داخل منطقة التفاعل نحو 4 بيوتينات لكل بروتين، وهو ما يكفي لملء كل المواضع.
ومن النموذج الذي ثبتت صحته، رسم الفريق خريطة. فإضافة البيوتين بحجم يزيد على 15% من محلول البروتين تُبقي الخلط سليمًا. أما الأحجام الصغيرة عند نسب منخفضة فيمكن أن تضخّم عدد البروتينات الممتلئة بالكامل أكثر من أربعة أضعاف.
ما يفعله البروتين حقًا
من المعروف أن ارتباط البيوتين يجعل الستربتافيدين أكثر تراصًّا وأكثر استقرارًا. ويخلص الفريق إلى أن هذه التغيرات لا تُترجم إلى ارتباط تعاوني في الظروف التي يُستخدم فيها الثنائي فعلًا. لا تستطيع طريقتهم قياس عدد المواضع الممتلئة في المتوسط، ولا يمكنهم استبعاد أثر موجب ضعيف جدًا؛ لكن نتيجةً تتغير بحسب طريقة إضافة البيوتين بالماصّة، وتُفسَّر بالكامل من دون تعاونية، لا تترك للتعاون إلا مجالًا ضيقًا. وبالنسبة إلى المختبرات التي تعتمد على هذه الرابطة، فالدرس عملي: حين يسبق التفاعلُ الخلطَ، يمكن لحجم القطرة أن يكتب النتيجة.