UM DEBATE DE DÉCADAS SOBRE A LIGAÇÃO MAIS FORTE DA BIOTECNOLOGIA, RESOLVIDO POR UMA PIPETA
A estreptavidina é uma proteína que agarra uma molécula chamada biotina com uma força extraordinária. Sua constante de dissociação, em torno de 4 × 10⁻¹⁴ molar, é frequentemente citada como uma das interações não covalentes mais fortes da biologia. Somada a uma liberação muito lenta e a uma alta especificidade, isso faz do par um burro de carga da nanobiotecnologia, dos imunoensaios à imobilização de moléculas em superfícies.
A estreptavidina é formada por quatro subunidades idênticas, com quatro sítios de ligação para a biotina. Isso levanta uma velha questão: os sítios são cooperativos? Uma biotina já instalada faz a próxima se ligar com mais facilidade — ou com menos? Ao longo das décadas, estudos relataram cooperatividade positiva, cooperatividade negativa e nenhuma. Um estudo de 1995, muito citado, não encontrou nenhuma, mas só depois de deixar a mistura chegar ao equilíbrio durante dois dias, muito mais do que a maioria das aplicações modernas espera.
O problema dos marcadores
A microscopia de fluorescência consegue acompanhar moléculas isoladas, por isso parece ideal para observar a biotina se ligar. Mas ela costuma exigir a fixação de corantes fluorescentes. Na estreptavidina, os corantes ficam a nanômetros uns dos outros e atenuam o brilho uns dos outros, o que embaralha a contagem dos eventos de ligação, e já se mostrou que o acoplamento dos corantes prejudica a própria ligação da biotina.
Malavika Kayyil Veedu, Jérôme Wenger e colegas do Instituto Fresnel, em Marselha (Universidade Aix-Marseille, CNRS, Centrale Med), dispensaram totalmente os marcadores. A equipe iluminou a proteína com luz ultravioleta a 295 nanômetros e registrou o brilho tênue de seus próprios resíduos de triptofano, peças constituintes da proteína.
Contar as proteínas cheias
O protocolo conta apenas as estreptavidinas que carregam as quatro biotinas. A equipe misturou estreptavidina a 200 nanomolar com quantidades crescentes de biotina e depois adicionou esferas de sílica revestidas de biotina: qualquer proteína com um lugar livre gruda nelas e é retirada por centrifugação. O que permanece em solução — as proteínas totalmente carregadas — é medido por seu brilho ultravioleta.
A forma da curva resultante conta a história. Se os sítios forem independentes, a fração de proteínas totalmente carregadas sobe aos poucos à medida que se adiciona biotina. Com cooperatividade positiva, a biotina se acumula primeiro em algumas proteínas e a curva sobe cedo e de forma abrupta; com cooperatividade negativa, o carregamento completo é retardado. Simulações, cujo código completo é fornecido no artigo, traçam cada caso.
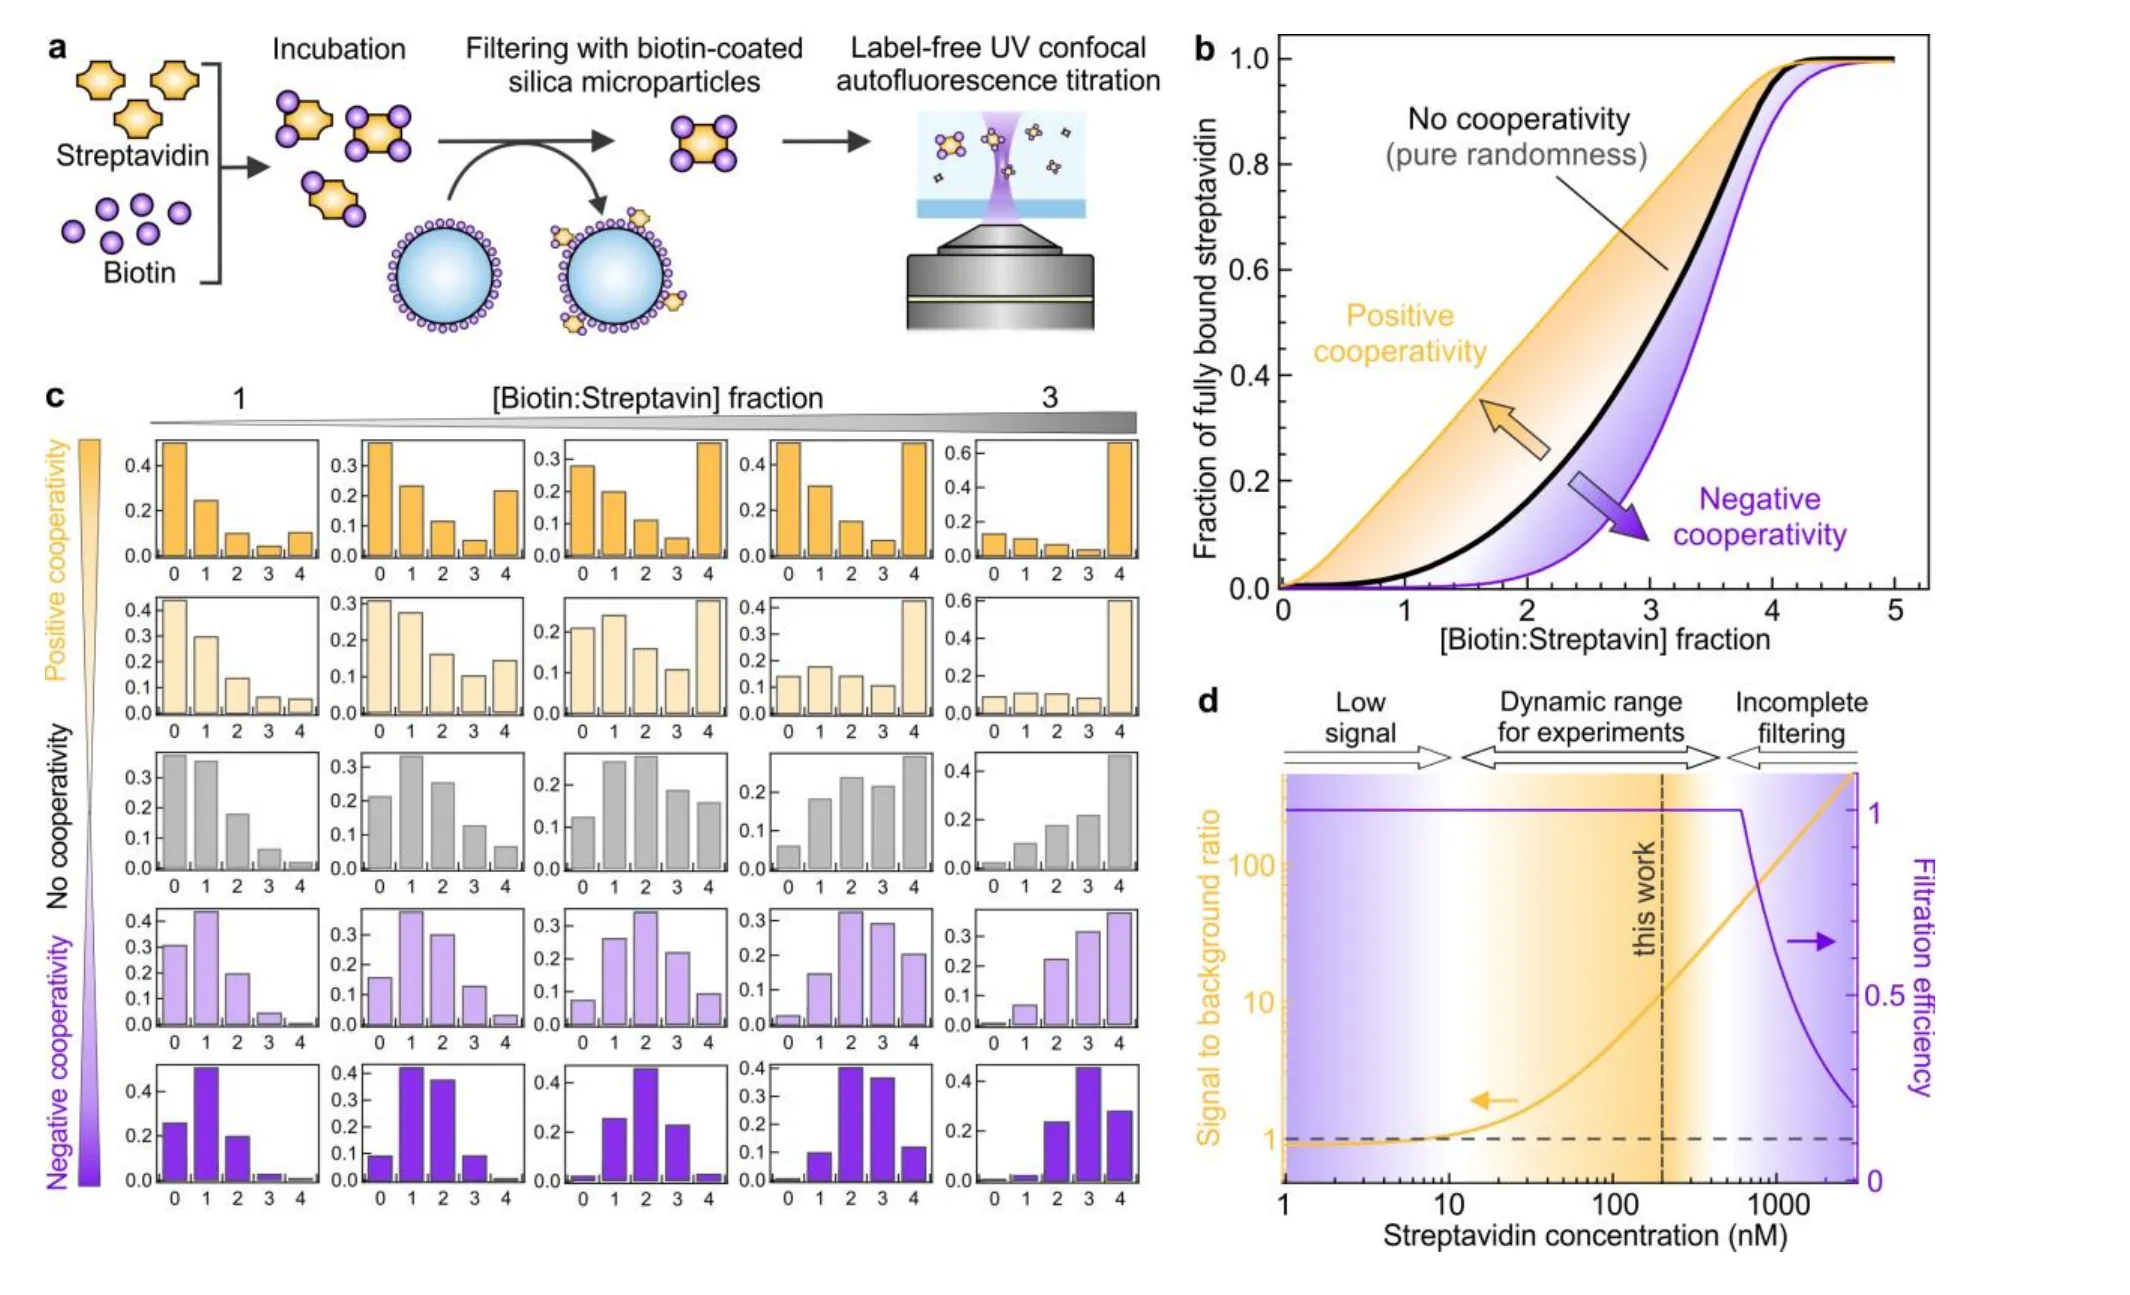
(a) O protocolo: incubação, remoção das proteínas carregadas de forma incompleta em esferas revestidas de biotina, medição ultravioleta sem marcador. (b) Fração simulada de estreptavidina totalmente carregada para cooperatividade nula, positiva e negativa. (c) Ocupação simulada dos quatro sítios. (d) A faixa de trabalho. — Figura 1, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Um experimento, duas respostas
A equipe fez o mesmo experimento duas vezes, mudando apenas a concentração da solução de biotina que pipetava. Com biotina diluída (1,25 ou 2,5 micromolar, adicionada em volumes sempre acima de 15 microlitros), os dados seguem a curva de sítios independentes. Com biotina concentrada (25 micromolar, adicionada em gotas de poucos microlitros), os dados caem em cheio na zona de cooperatividade positiva.
A proteína não pode ser as duas coisas. Os dados diluídos se ajustam a um modelo sem cooperatividade, desde que se admita uma filtragem um pouco imperfeita. Então, o que aconteceu com as gotas concentradas?
Mais rápido que a agitação
A biotina se liga à estreptavidina muito depressa: em concentrações micromolares, em poucas dezenas de milissegundos — muito mais rápido do que se consegue misturar uma solução. Uma gotinha de biotina concentrada reage, portanto, com as proteínas ao seu redor antes de ter se espalhado. Localmente, há muito mais biotina por proteína do que a média, e assim um subconjunto de proteínas se enche por completo. Na curva, isso se parece exatamente com cooperatividade.
A equipe modelou isso de forma simples: a reação acontece dentro de uma esfera de raio 1,5 R + 1 milímetro, em que R é o raio da gota adicionada. O fator 1,5 vem da filmagem de gotas de tinta preta se espalhando na água; o milímetro extra foi ajustado aos dados. Sem nenhuma cooperatividade, esse modelo reproduz os pontos “cooperativos”.
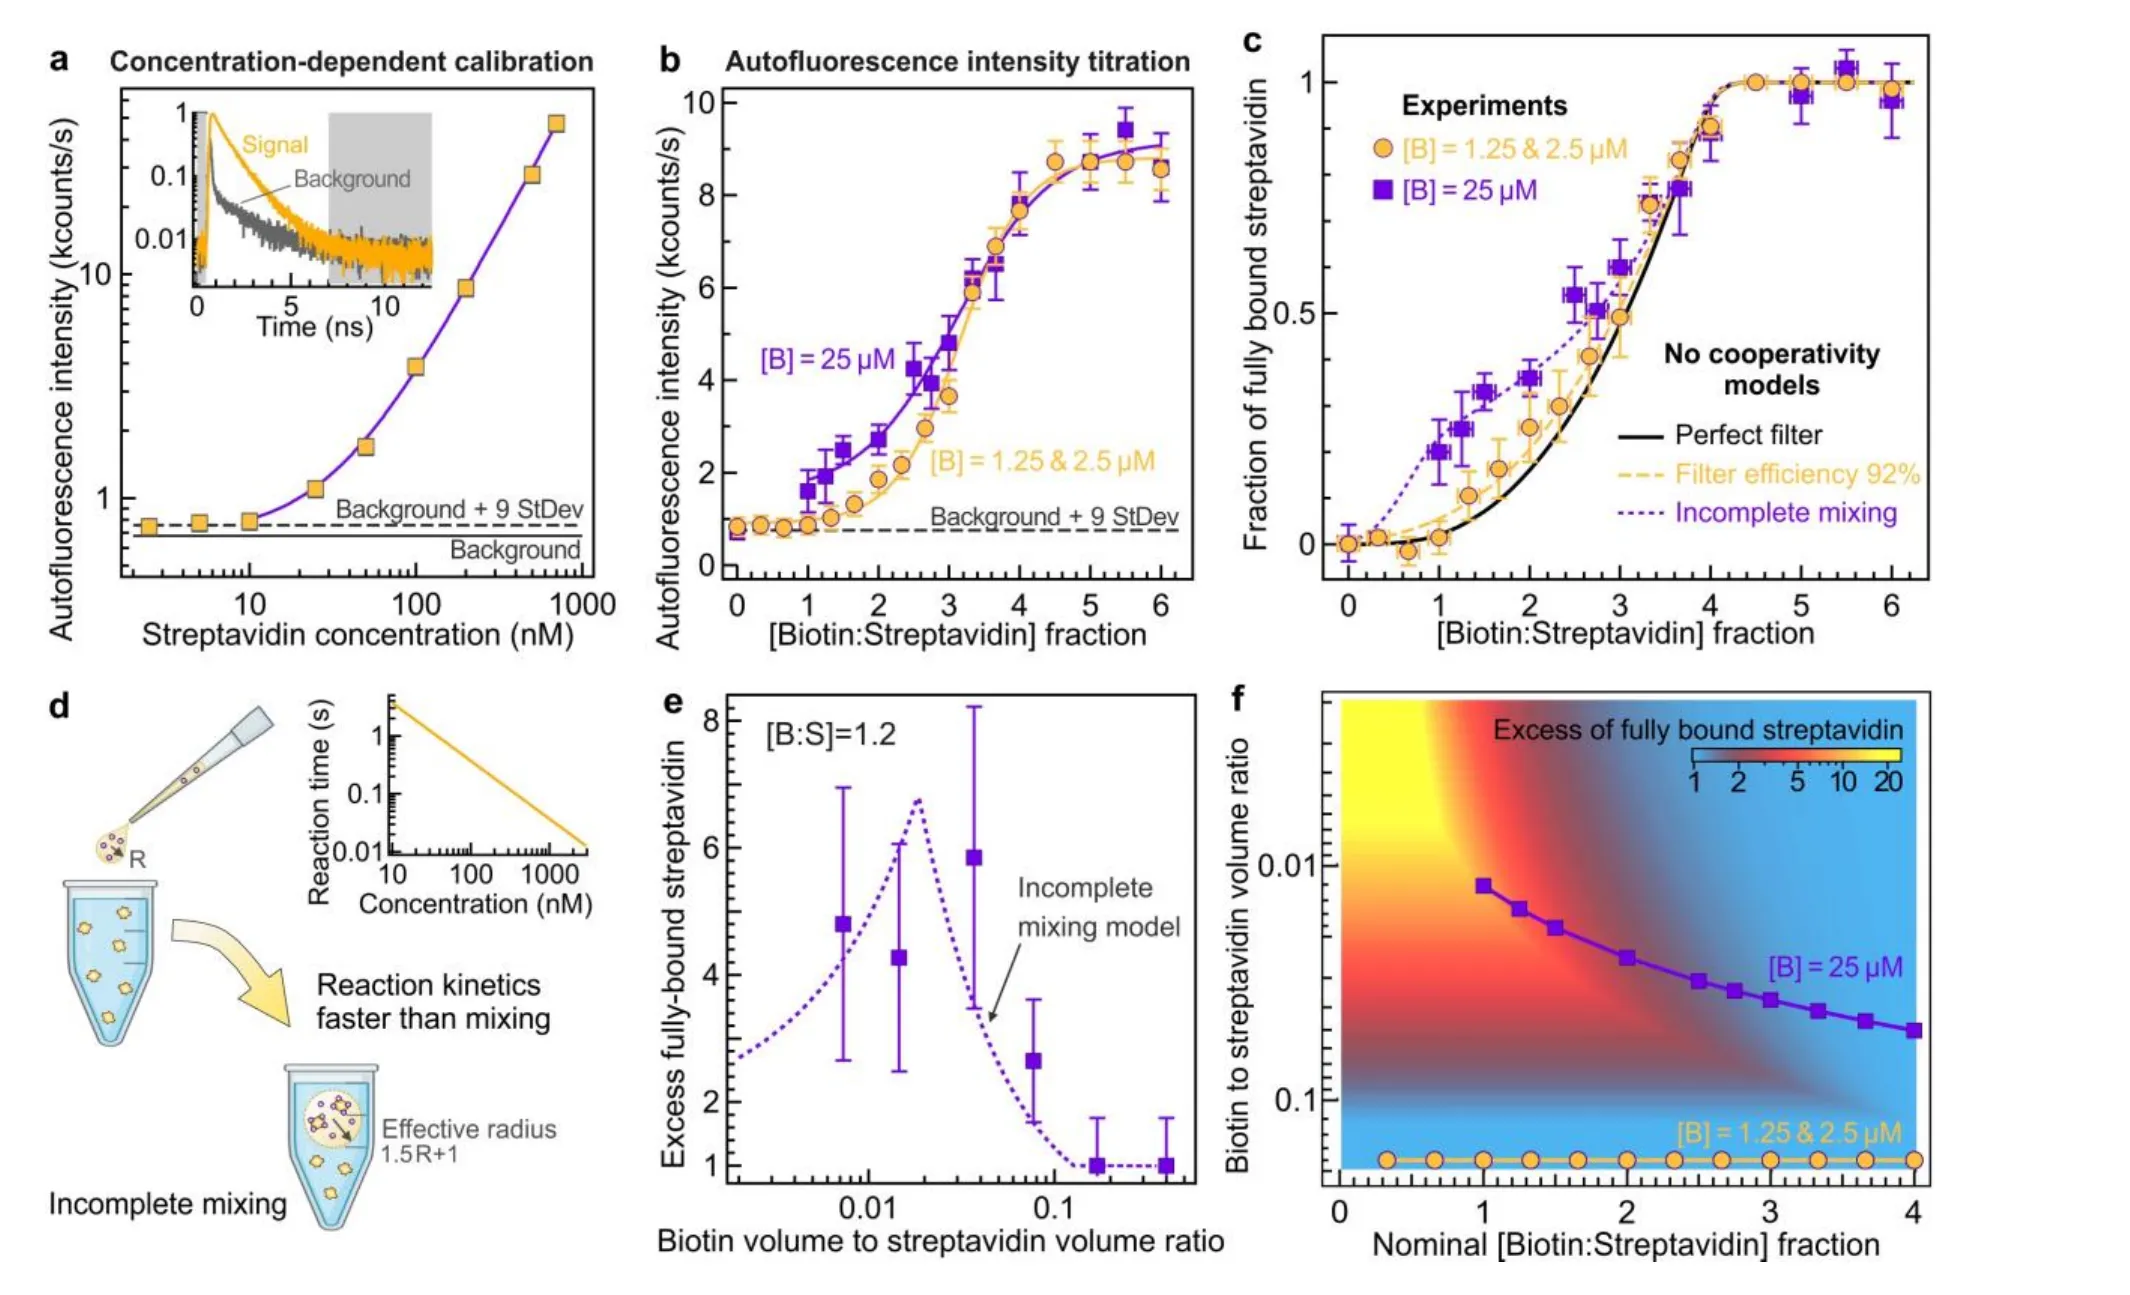
(c) A biotina diluída (laranja) segue a curva sem cooperatividade; a biotina concentrada (roxo) parece cooperativa, e é reproduzida pelo modelo de mistura incompleta. (d) O modelo. (e) Excesso de proteínas totalmente carregadas à medida que o volume adicionado diminui. (f) Mapa das condições propensas ao artefato. — Figura 2, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Um mapa para pipetar com cuidado
Para testar a ideia diretamente, a equipe fixou a razão em 1,2 biotina por estreptavidina e variou apenas o volume de biotina adicionado. À medida que a gota diminuía, o excesso de proteínas totalmente carregadas crescia, chegando ao máximo quando o volume de biotina era 2% do volume de proteína — ponto em que, dentro da zona de reação, a razão local atinge cerca de 4 biotinas por proteína, o suficiente para preencher todos os lugares.
A partir do modelo validado, a equipe traçou um mapa. Adicionar a biotina num volume acima de 15% da solução de proteína mantém a mistura limpa. Volumes pequenos com razões baixas podem inflar o número de proteínas totalmente carregadas mais de quatro vezes.
O que a proteína realmente faz
Sabe-se que a ligação da biotina torna a estreptavidina mais compacta e mais estável. A equipe conclui que essas mudanças não se traduzem em ligação cooperativa nas condições em que o par é realmente usado. Seu método não consegue medir quantos sítios estão ocupados em média, e não é possível descartar um efeito positivo muito fraco; mas um resultado que muda conforme a maneira de pipetar a biotina, e que se explica por completo sem cooperatividade, deixa pouco espaço para a cooperação. Para os laboratórios que dependem dessa ligação, a lição é prática: quando uma reação é mais rápida que a mistura, o tamanho da gota pode escrever o resultado.