UN DÉBAT DE PLUSIEURS DÉCENNIES SUR LA LIAISON LA PLUS FORTE DES BIOTECHNOLOGIES, TRANCHÉ PAR UNE PIPETTE
La streptavidine est une protéine qui agrippe une molécule appelée biotine avec une force extraordinaire. Leur constante de dissociation — la concentration de biotine à laquelle la moitié des sites sont occupés ; plus elle est basse, plus la prise est forte — vaut environ 4 × 10⁻¹⁴ molaire, souvent citée comme l’une des plus fortes interactions non covalentes de la biologie. Avec une libération très lente et une grande spécificité, cela fait du couple un outil de base des nanobiotechnologies, des tests immunologiques à la fixation de molécules sur des surfaces.
La streptavidine est formée de quatre sous-unités identiques, avec quatre sites de liaison pour la biotine. D’où une vieille question : ces sites sont-ils coopératifs ? Une biotine déjà en place aide-t-elle la suivante à se lier — ou la gêne-t-elle ? Au fil des décennies, des études ont conclu à une coopérativité positive, négative, ou nulle. Une étude de 1995 souvent citée n’en trouvait aucune, mais après avoir laissé le mélange atteindre l’équilibre pendant deux jours, bien plus longtemps que la plupart des applications modernes.
Le problème des marqueurs
La microscopie de fluorescence peut suivre des molécules une à une : elle semble idéale pour regarder la biotine se lier. Mais elle demande d’ordinaire d’attacher des colorants fluorescents. Sur la streptavidine, les colorants se trouvent à quelques nanomètres les uns des autres et s’éteignent mutuellement, ce qui brouille le décompte des liaisons ; et il a été montré que la fixation d’un colorant gêne nettement la liaison de la biotine elle-même.
Malavika Kayyil Veedu, Jérôme Wenger et leurs collègues de l’Institut Fresnel à Marseille (Aix-Marseille Université, CNRS, Centrale Med) ont écarté tout marqueur. L’équipe a éclairé la protéine avec une lumière ultraviolette à 295 nanomètres et enregistré la faible lueur de ses propres résidus de tryptophane, des briques de la protéine.
Compter les protéines pleines
Le protocole ne compte que les streptavidines qui portent leurs quatre biotines. L’équipe a mélangé de la streptavidine à 200 nanomolaires avec des quantités croissantes de biotine, puis ajouté des billes de silice couvertes de biotine : toute protéine qui a encore une place libre s’y accroche et part à la centrifugation. Ce qui reste en solution — les protéines pleines — est mesuré par sa lueur ultraviolette.
La forme de la courbe obtenue raconte l’histoire. Si les sites sont indépendants, la fraction de protéines pleines monte progressivement à mesure qu’on ajoute de la biotine. Avec une coopérativité positive, la biotine s’entasse d’abord sur quelques protéines et la courbe monte tôt et raide ; avec une coopérativité négative, le remplissage complet est retardé. Des simulations, dont le code complet figure dans l’article, tracent chaque cas.
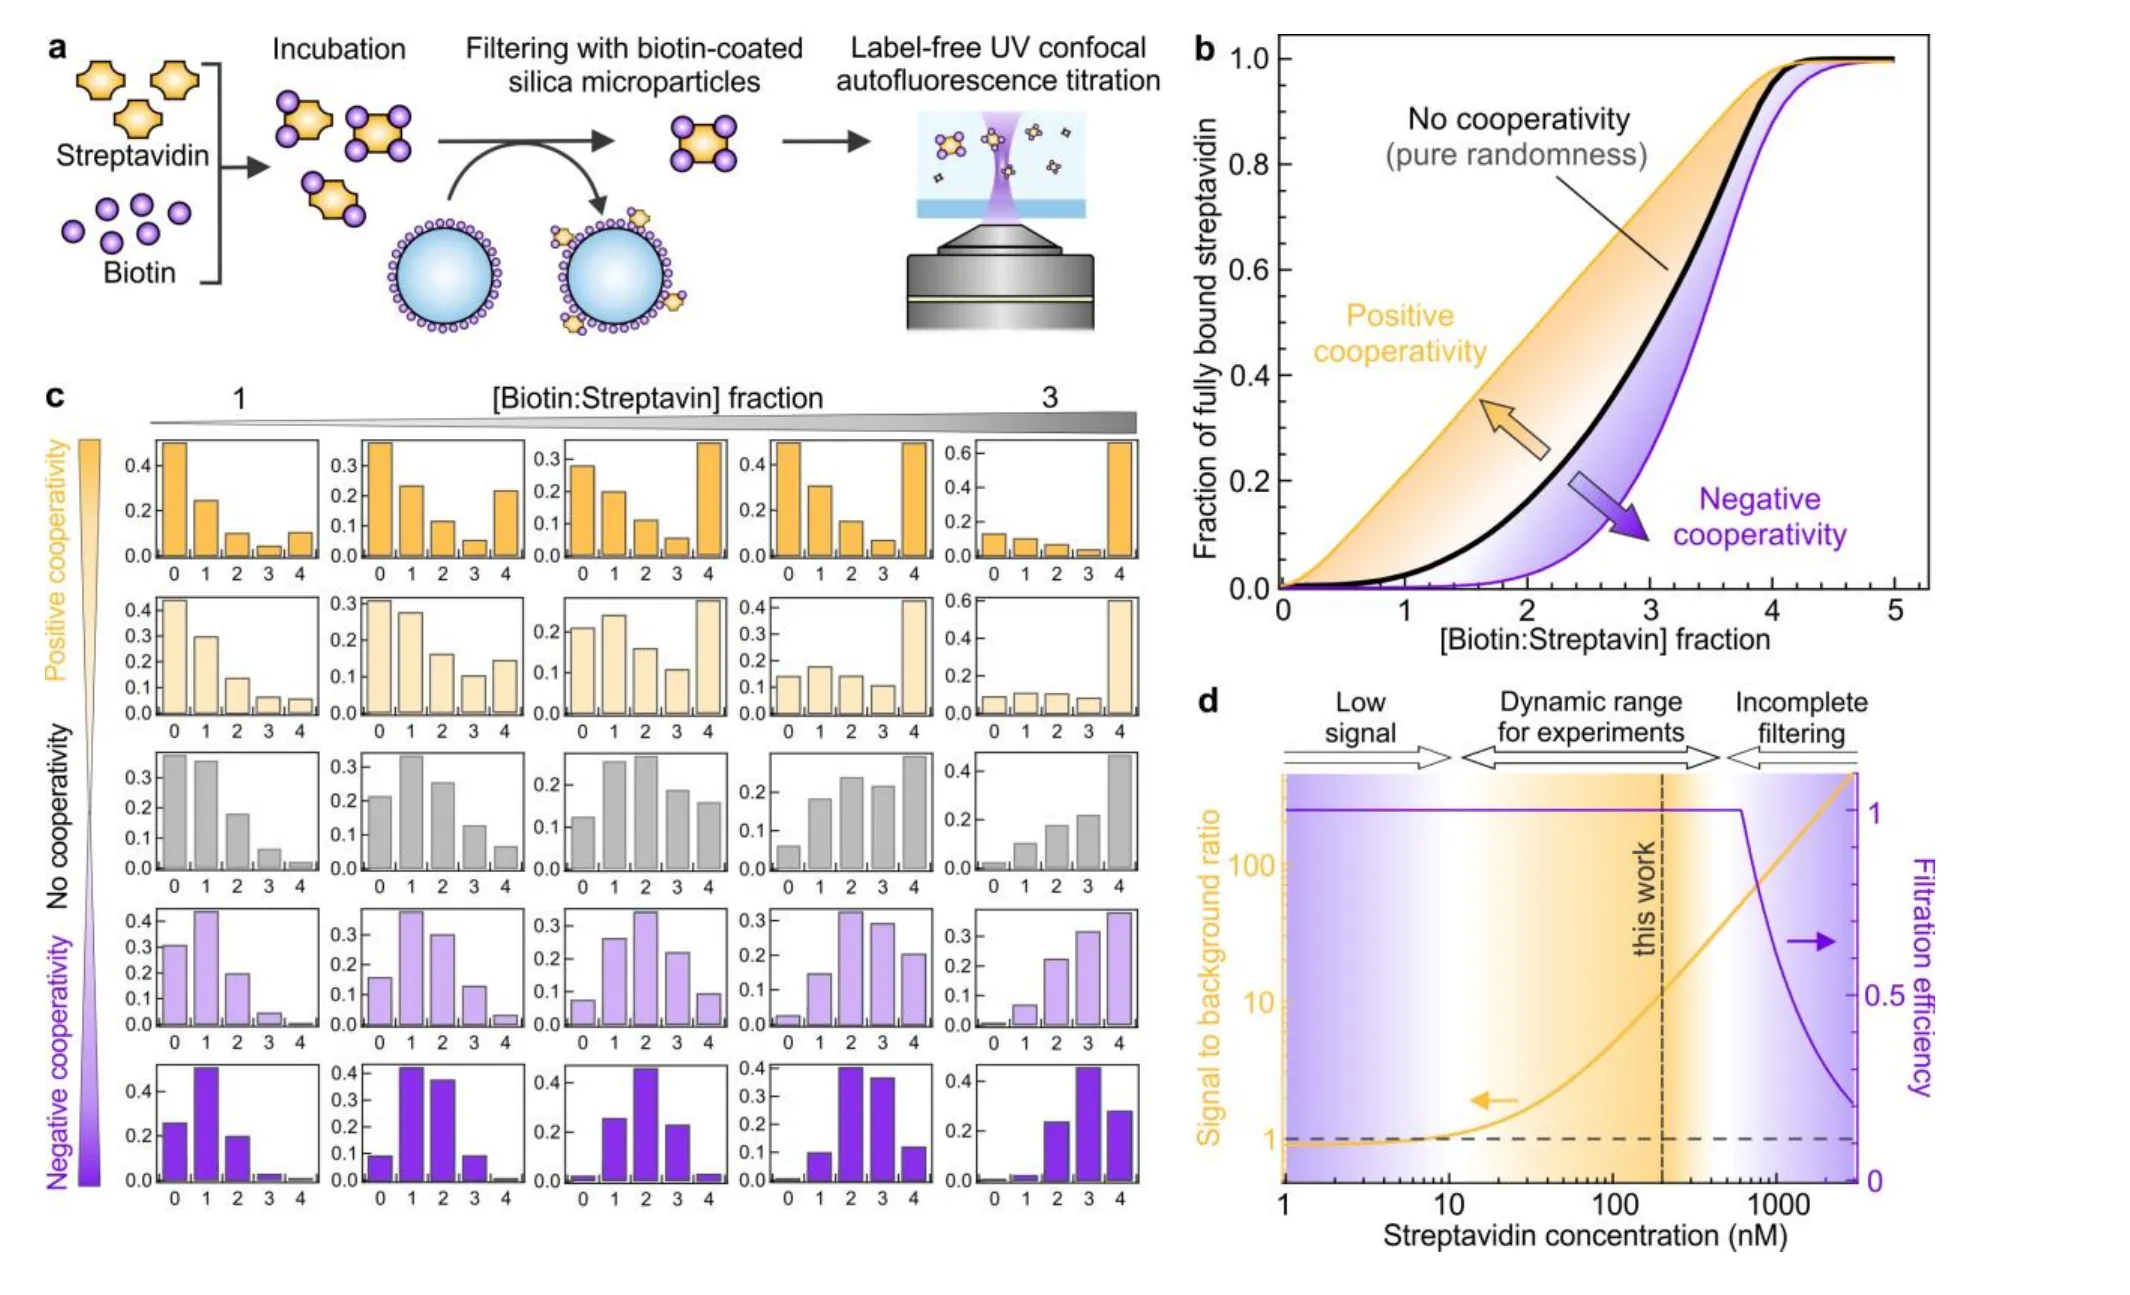
(a) Le protocole : incubation, retrait des protéines incomplètes sur des billes couvertes de biotine, mesure ultraviolette sans marqueur. (b) Fraction simulée de streptavidine pleine sans coopérativité, avec coopérativité positive ou négative. (c) Occupation simulée des quatre sites. (d) La plage de travail. — Figure 1, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Une expérience, deux réponses
L’équipe a fait deux fois la même expérience, en changeant seulement la concentration de la solution de biotine pipetée. Avec une biotine diluée (1,25 ou 2,5 micromolaires, ajoutée en volumes toujours supérieurs à 15 microlitres), les données suivent la courbe des sites indépendants. Avec une biotine concentrée (25 micromolaires, ajoutée en gouttes de quelques microlitres), les données tombent en plein dans la zone de coopérativité positive.
La protéine ne peut pas être les deux à la fois. Les données diluées s’expliquent par un modèle sans coopérativité, une fois admise une filtration un peu imparfaite. Que s’est-il donc passé avec les gouttes concentrées ?
Plus vite que l’agitation
La biotine se lie très vite à la streptavidine : aux concentrations micromolaires, en quelques dizaines de millisecondes — bien plus vite qu’on ne peut mélanger une solution. Une petite goutte de biotine concentrée réagit donc avec les protéines qui l’entourent avant de s’être diluée. Localement, il y a bien plus de biotine par protéine que la moyenne, et une partie des protéines se remplit entièrement. Sur la courbe, cela ressemble trait pour trait à une coopérativité.
L’équipe l’a modélisé simplement : la réaction a lieu dans une sphère de rayon 1,5 R + 1 millimètre, où R est le rayon de la goutte ajoutée. Le facteur 1,5 vient de films de gouttes d’encre noire qui se diluent dans l’eau ; le millimètre supplémentaire a été ajusté sur les données. Sans aucune coopérativité, ce modèle reproduit les points « coopératifs ».
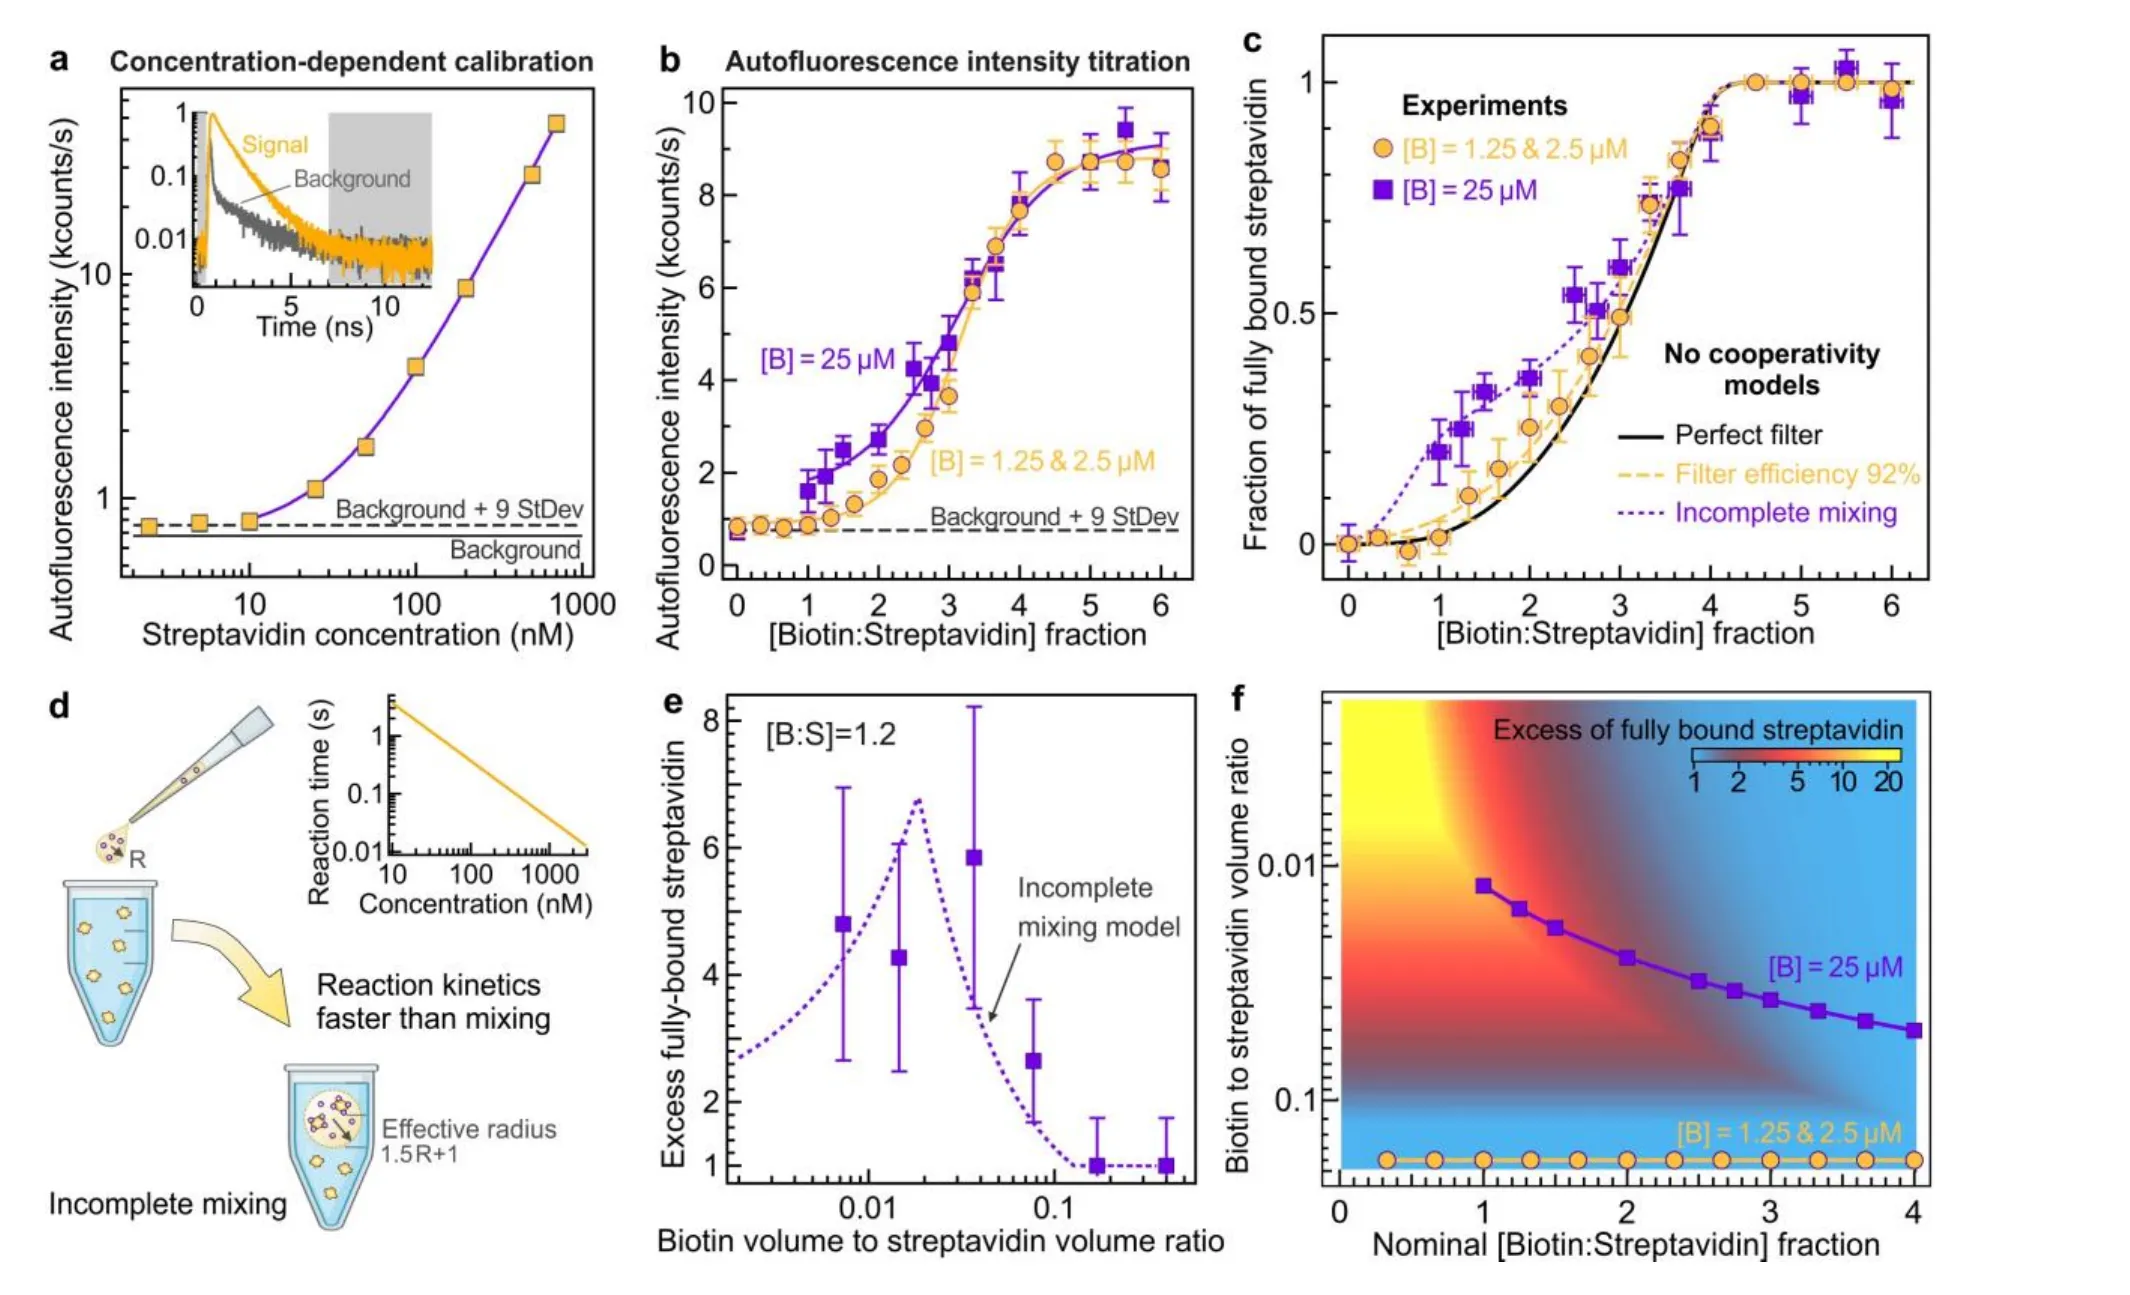
(c) La biotine diluée (orange) suit la courbe sans coopérativité ; la biotine concentrée (violet) semble coopérative et correspond au modèle de mélange incomplet. (d) Le modèle. (e) Excès de protéines pleines quand le volume ajouté diminue. (f) Carte des conditions propices à l’artefact. — Figure 2, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Une carte pour bien pipeter
Pour tester l’idée directement, l’équipe a fixé le rapport à 1,2 biotine par streptavidine et n’a fait varier que le volume de biotine ajouté. À mesure que la goutte rétrécissait, l’excès de protéines pleines, par rapport à une référence bien mélangée, augmentait, avec un pic quand le volume de biotine valait 2 % du volume de protéine — là où, dans la zone de réaction, le rapport local atteint environ 4 biotines par protéine, de quoi remplir toutes les places.
À partir du modèle validé, l’équipe a dressé une carte. Ajouter la biotine dans un volume supérieur à 15 % de la solution de protéine garde le mélange propre. De petits volumes à faibles rapports peuvent gonfler le nombre de protéines pleines plus de quatre fois.
Ce que fait vraiment la protéine
On sait que la liaison de la biotine rend la streptavidine plus compacte et plus stable. L’équipe conclut que ces changements ne se traduisent pas en liaison coopérative dans les conditions où le couple est réellement utilisé. Sa méthode ne mesure pas combien de sites sont remplis en moyenne, et elle ne peut pas exclure un très faible effet positif ; mais un résultat qui change selon la façon de pipeter la biotine, et qui s’explique entièrement sans coopérativité, laisse peu de place à la coopération. Pour les laboratoires qui comptent sur cette liaison, la leçon est pratique : quand la réaction va plus vite que le mélange, la taille de la goutte peut écrire le résultat.