بایوٹیکنالوجی کے مضبوط ترین بندھن پر دہائیوں پرانی بحث، جس کا فیصلہ ایک پپیٹ نے کر دیا
اسٹریپٹاویڈن (streptavidin) ایک پروٹین ہے جو بایوٹن (biotin) نامی ایک سالمے کو غیر معمولی قوت سے پکڑتا ہے۔ ان کا افتراقی مستقل (dissociation constant)، تقریباً 4 × 10⁻¹⁴ مولر، اکثر حیاتیات کے مضبوط ترین غیر ہم گرفتی (non-covalent) تعاملات میں سے ایک کے طور پر بیان کیا جاتا ہے۔ نہایت سست علیحدگی اور اعلیٰ مخصوصیت کے ساتھ مل کر، یہ خوبی اس جوڑی کو نینو بایوٹیکنالوجی کا ایک بنیادی اوزار بنا دیتی ہے، مدافعتی جانچوں (immunoassays) سے لے کر سطحوں پر سالمات کو جمانے تک۔
اسٹریپٹاویڈن چار یکساں ذیلی اکائیوں سے بنا ہے، جن میں بایوٹن کے لیے چار جڑنے کے مقامات ہیں۔ اس سے ایک پرانا سوال اٹھتا ہے: کیا یہ مقامات باہم تعاون کرنے والے (cooperative) ہیں؟ کیا پہلے سے موجود ایک بایوٹن اگلے کے جڑنے کو آسان بناتا ہے — یا مشکل؟ دہائیوں کے دوران مطالعات نے مثبت تعاون، منفی تعاون اور کوئی تعاون نہ ہونے، سبھی کی اطلاع دی ہے۔ 1995 کے ایک کثرت سے حوالہ دیے جانے والے مطالعے کو کوئی تعاون نہیں ملا، مگر صرف اس وقت جب آمیزے کو دو دن تک توازن میں پہنچنے دیا گیا، جو زیادہ تر جدید استعمالات میں انتظار کے وقت سے کہیں زیادہ ہے۔
لیبلز کا مسئلہ
فلوریسنس خوردبینی واحد سالمات کا پیچھا کر سکتی ہے، اس لیے بایوٹن کو جڑتے دیکھنے کے لیے مثالی معلوم ہوتی ہے۔ لیکن اس کے لیے عموماً فلوریسنٹ رنگ (dyes) جوڑنے پڑتے ہیں۔ اسٹریپٹاویڈن پر یہ رنگ ایک دوسرے سے چند نینومیٹر کے فاصلے پر ہوتے ہیں اور ایک دوسرے کی چمک مدھم کر دیتے ہیں، جس سے جڑنے کے واقعات کی گنتی دھندلا جاتی ہے، اور یہ دکھایا جا چکا ہے کہ رنگ جوڑنا خود بایوٹن کے جڑنے کو بھی متاثر کرتا ہے۔
مارسے کے فرینل انسٹی ٹیوٹ (Fresnel Institute؛ Aix-Marseille University، CNRS، Centrale Med) میں مالویکا کیئل ویدو (Malavika Kayyil Veedu)، ژیروم وینگر (Jérôme Wenger) اور ان کے ساتھیوں نے لیبلز سے مکمل طور پر گریز کیا۔ انہوں نے پروٹین پر 295 نینومیٹر کی بالائے بنفشی روشنی ڈالی اور اس کے اپنے ٹرپٹوفین (tryptophan) باقیات کی مدھم چمک ریکارڈ کی، جو پروٹین کے بنیادی اجزا ہیں۔
پورے بھرے پروٹینز کی گنتی
یہ طریقۂ کار صرف ان اسٹریپٹاویڈنز کو گنتا ہے جن پر چاروں بایوٹن موجود ہوں۔ ٹیم نے 200 نینو مولر اسٹریپٹاویڈن کو بایوٹن کی بڑھتی ہوئی مقداروں کے ساتھ ملایا، پھر بایوٹن سے ڈھکے سلیکا کے دانے شامل کیے: جس پروٹین میں بھی کوئی خانہ خالی ہو وہ ان سے چپک جاتا ہے اور گھما کر الگ کر دیا جاتا ہے۔ جو محلول میں باقی رہ جاتا ہے — یعنی پوری طرح بھرے ہوئے پروٹین — اسے اس کی بالائے بنفشی چمک سے ناپا جاتا ہے۔
حاصل ہونے والے منحنی خط کی شکل ساری کہانی بتا دیتی ہے۔ اگر مقامات ایک دوسرے سے آزاد ہوں تو بایوٹن ڈالنے کے ساتھ پوری طرح بھرے پروٹینز کا تناسب بتدریج بڑھتا ہے۔ مثبت تعاون کی صورت میں بایوٹن پہلے چند پروٹینز پر جمع ہو جاتا ہے اور منحنی خط جلدی اور تیزی سے اوپر اٹھتا ہے؛ منفی تعاون کی صورت میں مکمل بھراؤ دیر سے ہوتا ہے۔ نقلی تجربات (simulations)، جن کا پورا کوڈ مقالے میں دیا گیا ہے، ہر صورت کا خاکہ کھینچتے ہیں۔
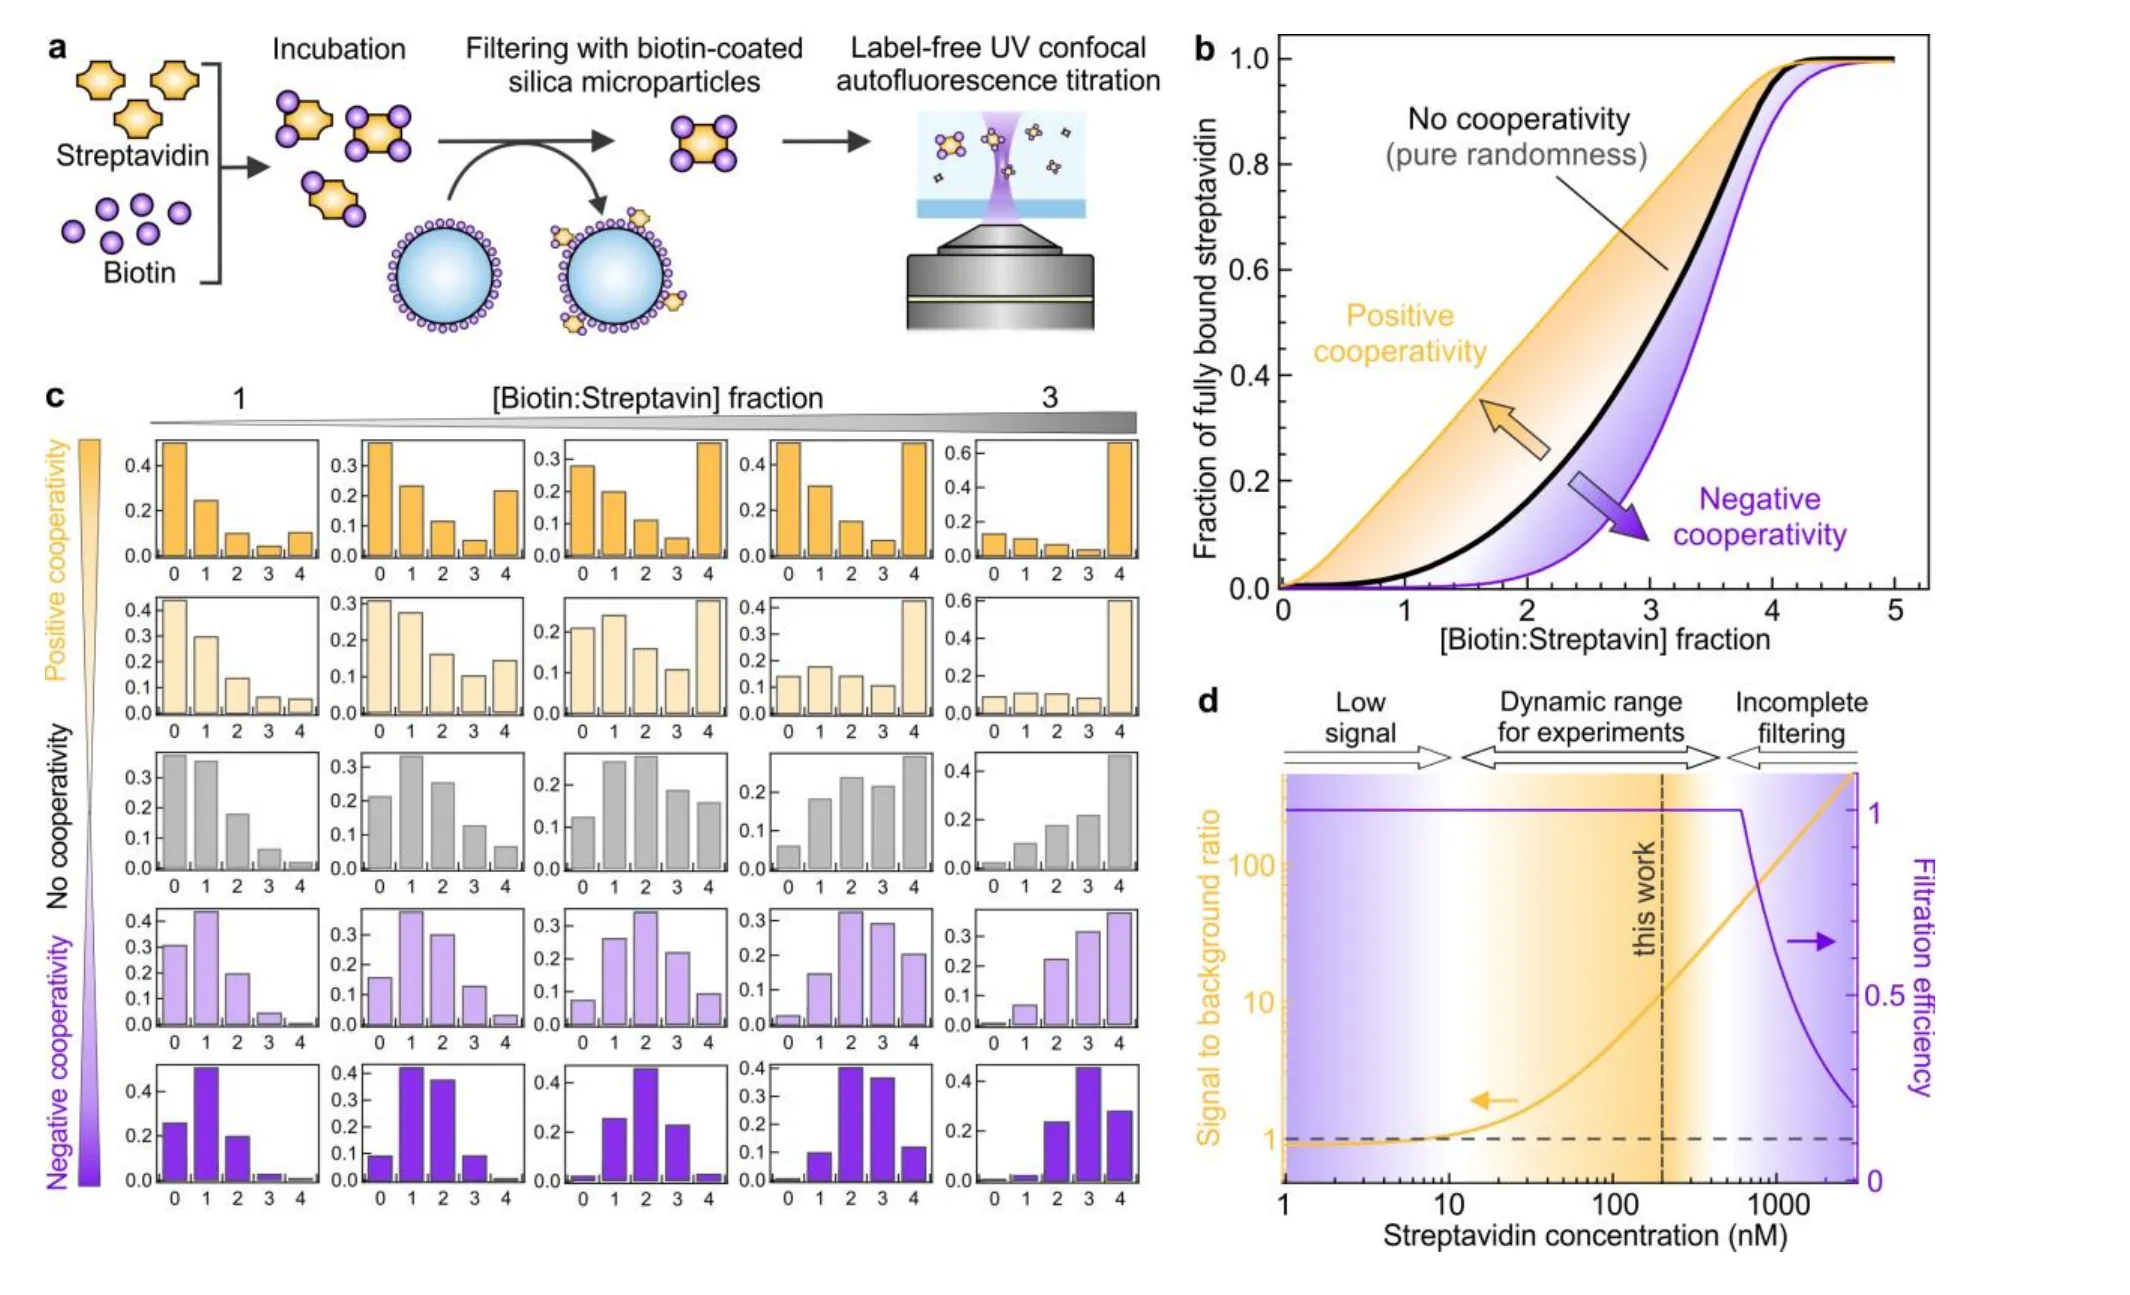
(a) طریقۂ کار: سینکائی (incubation)، بایوٹن سے ڈھکے دانوں پر نامکمل بھرے پروٹینز کی علیحدگی، لیبل کے بغیر بالائے بنفشی پیمائش۔ (b) بغیر تعاون، مثبت اور منفی تعاون کی صورت میں پوری طرح بھرے اسٹریپٹاویڈن کا نقلی تناسب۔ (c) چاروں مقامات کا نقلی بھراؤ۔ (d) کام کرنے کی حد۔ — شکل 1، Kayyil Veedu et al. (2026)، arXiv:2610.41363۔
ایک تجربہ، دو جواب
ٹیم نے ایک ہی تجربہ دو بار کیا، اور صرف اس بایوٹن محلول کا ارتکاز بدلا جو وہ پپیٹ سے ڈال رہے تھے۔ ہلکے بایوٹن (1.25 یا 2.5 مائیکرو مولر، ہمیشہ 15 مائیکرو لیٹر سے زیادہ حجم میں ڈالا گیا) کے ساتھ اعداد و شمار آزاد مقامات والے منحنی خط پر چلتے ہیں۔ گاڑھے بایوٹن (25 مائیکرو مولر، چند مائیکرو لیٹر کے قطروں میں ڈالا گیا) کے ساتھ اعداد و شمار ٹھیک مثبت تعاون کے علاقے میں جا گرتے ہیں۔
پروٹین بیک وقت دونوں نہیں ہو سکتا۔ ہلکے محلول والے اعداد و شمار ایک ایسے ماڈل پر پورے اترتے ہیں جس میں کوئی تعاون نہیں، بشرطیکہ چھاننے کے عمل میں تھوڑی سی خامی کی گنجائش رکھی جائے۔ تو پھر گاڑھے قطروں کے ساتھ کیا ہوا؟
ہلانے سے بھی تیز
بایوٹن اسٹریپٹاویڈن سے بہت تیزی سے جڑتا ہے: مائیکرو مولر ارتکاز پر چند دسیوں ملی سیکنڈ کے اندر — اس سے کہیں زیادہ تیز جتنی دیر میں کسی محلول کو ملایا جا سکتا ہے۔ چنانچہ گاڑھے بایوٹن کا ایک چھوٹا قطرہ پھیلنے سے پہلے ہی اپنے آس پاس کے پروٹینز سے ردِعمل کر لیتا ہے۔ مقامی طور پر فی پروٹین بایوٹن اوسط سے کہیں زیادہ ہوتا ہے، اس لیے پروٹینز کا ایک حصہ پوری طرح بھر جاتا ہے۔ منحنی خط پر یہ بالکل تعاون جیسا دکھائی دیتا ہے۔
ٹیم نے اسے سادہ انداز میں ماڈل کیا: ردِعمل 1.5 R + 1 ملی میٹر رداس کے ایک کرے کے اندر ہوتا ہے، جہاں R ڈالے گئے قطرے کا رداس ہے۔ 1.5 کا عدد پانی میں پھیلتے ہوئے سیاہ روشنائی کے قطروں کی فلم بندی سے آیا ہے؛ اضافی ملی میٹر کو اعداد و شمار کے مطابق فٹ کیا گیا۔ بالکل کسی تعاون کے بغیر، یہ ماڈل “تعاون والے” نقاط کو دہرا دیتا ہے۔
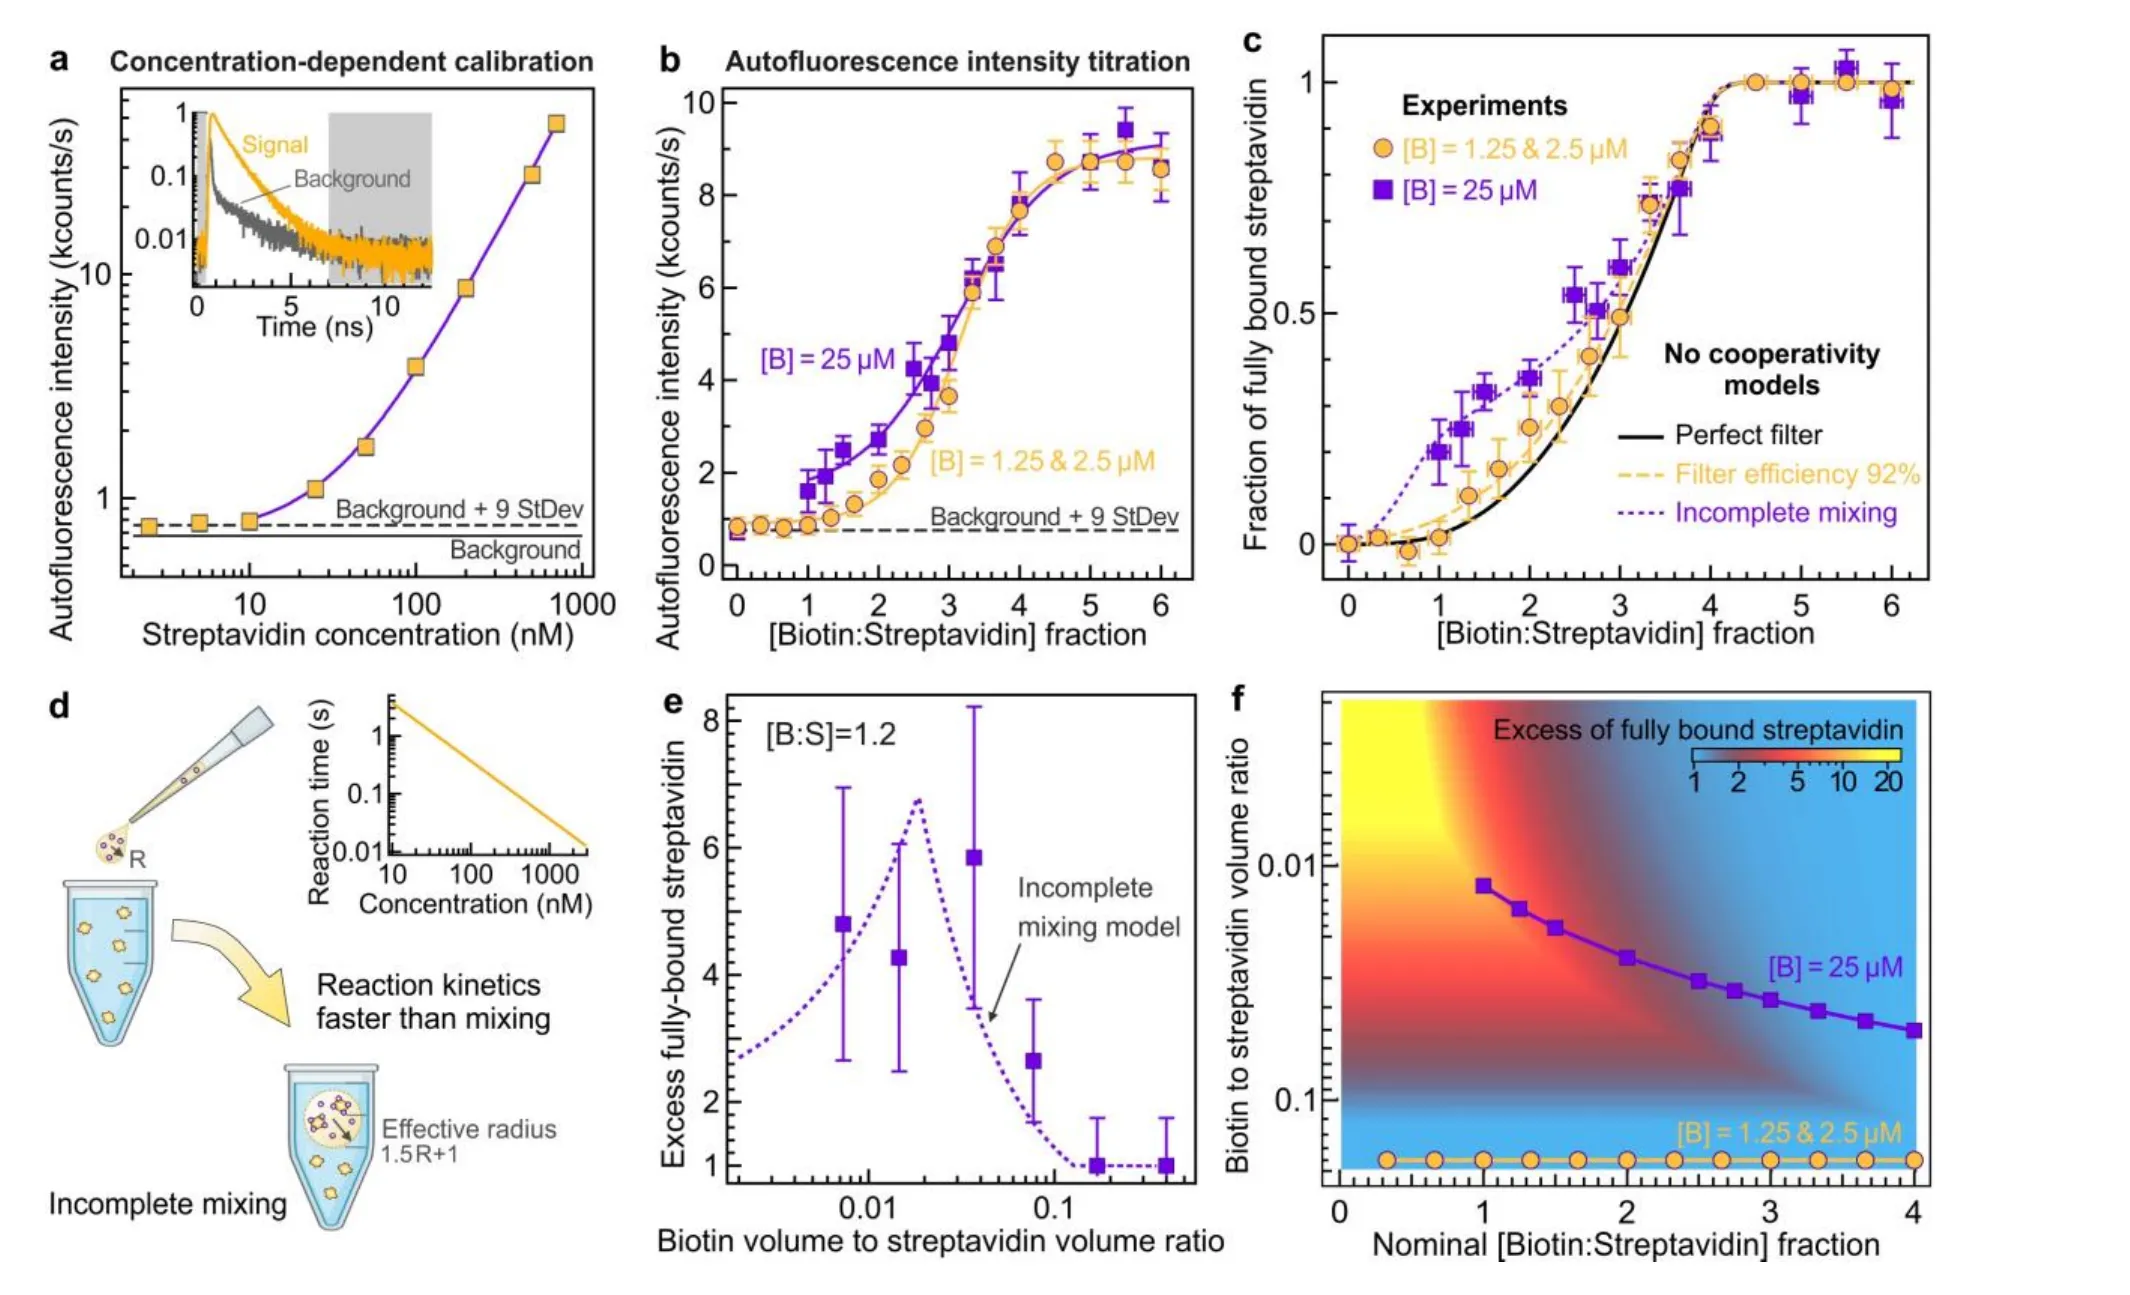
(c) ہلکا بایوٹن (نارنجی) بغیر تعاون والے منحنی خط پر چلتا ہے؛ گاڑھا بایوٹن (جامنی) تعاون والا لگتا ہے، اور نامکمل آمیزش کا ماڈل اس سے مطابقت رکھتا ہے۔ (d) ماڈل۔ (e) ڈالا گیا حجم گھٹنے کے ساتھ پوری طرح بھرے پروٹینز کی زیادتی۔ (f) ان حالات کا نقشہ جن میں یہ مغالطہ پیدا ہونے کا امکان ہے۔ — شکل 2، Kayyil Veedu et al. (2026)، arXiv:2610.41363۔
محتاط پپیٹنگ کے لیے ایک نقشہ
اس خیال کو براہِ راست جانچنے کے لیے ٹیم نے تناسب کو 1.2 بایوٹن فی اسٹریپٹاویڈن پر قائم رکھا اور صرف ڈالے گئے بایوٹن کا حجم بدلا۔ جیسے جیسے قطرہ چھوٹا ہوتا گیا، پوری طرح بھرے پروٹینز کی زیادتی بڑھتی گئی، اور اپنی انتہا پر اس وقت پہنچی جب بایوٹن کا حجم پروٹین کے حجم کا 2% تھا — جہاں ردِعمل کے علاقے کے اندر مقامی تناسب تقریباً 4 بایوٹن فی پروٹین تک پہنچ جاتا ہے، جو ہر خانہ بھرنے کے لیے کافی ہے۔
جانچے ہوئے ماڈل سے انہوں نے ایک نقشہ بنایا۔ بایوٹن کو پروٹین محلول کے 15% سے زیادہ حجم میں ڈالنے سے آمیزہ صاف رہتا ہے۔ کم تناسب پر چھوٹے حجم پوری طرح بھرے پروٹینز کی تعداد کو چار گنا سے بھی زیادہ بڑھا سکتے ہیں۔
پروٹین درحقیقت کیا کرتا ہے
یہ معلوم ہے کہ بایوٹن کا جڑنا اسٹریپٹاویڈن کو زیادہ سمٹا ہوا اور زیادہ مستحکم بناتا ہے۔ ٹیم اس نتیجے پر پہنچتی ہے کہ ان حالات میں، جن میں یہ جوڑی درحقیقت استعمال ہوتی ہے، یہ تبدیلیاں باہمی تعاون والے جڑاؤ میں نہیں ڈھلتیں۔ ان کا طریقہ یہ نہیں ناپ سکتا کہ اوسطاً کتنے مقامات بھرے ہیں، اور وہ ایک نہایت کمزور مثبت اثر کو خارج از امکان قرار نہیں دے سکتے؛ لیکن ایک ایسا نتیجہ جو بایوٹن کو پپیٹ سے ڈالنے کے طریقے کے ساتھ بدل جائے، اور تعاون کے بغیر پوری طرح سمجھ میں آ جائے، تعاون کے لیے بہت کم گنجائش چھوڑتا ہے۔ اس بندھن پر انحصار کرنے والی تجربہ گاہوں کے لیے سبق عملی ہے: جب کوئی ردِعمل آمیزش سے آگے نکل جائے، تو قطرے کا سائز نتیجہ لکھ سکتا ہے۔