জৈবপ্রযুক্তির সবচেয়ে শক্ত বন্ধন নিয়ে কয়েক দশকের পুরোনো বিতর্ক, মীমাংসা করল একটি পিপেট
স্ট্রেপ্টাভিডিন (streptavidin) এমন একটি প্রোটিন যা বায়োটিন (biotin) নামের একটি অণুকে অসাধারণ জোরে আঁকড়ে ধরে। তাদের বিয়োজন ধ্রুবক (dissociation constant), প্রায় 4 × 10⁻¹⁴ মোলার, প্রায়ই জীববিজ্ঞানের সবচেয়ে শক্তিশালী অ-সমযোজী মিথস্ক্রিয়াগুলোর একটি হিসেবে উদ্ধৃত হয়। খুব ধীর বিচ্ছেদ আর উচ্চ নির্দিষ্টতার সঙ্গে মিলে এটি জুটিটিকে ন্যানো-জৈবপ্রযুক্তির এক নির্ভরযোগ্য হাতিয়ার করে তুলেছে, ইমিউনোঅ্যাসে থেকে শুরু করে তলের ওপর অণু আটকে রাখা পর্যন্ত।
স্ট্রেপ্টাভিডিন চারটি অভিন্ন উপ-একক দিয়ে গঠিত, যাতে বায়োটিনের জন্য চারটি বন্ধনস্থল (binding sites) আছে। এ থেকে একটি পুরোনো প্রশ্ন ওঠে: স্থানগুলো কি সহযোগী (cooperative)? আগে থেকে বসে থাকা একটি বায়োটিন কি পরেরটির বসাকে সহজ করে — নাকি কঠিন? কয়েক দশক ধরে বিভিন্ন গবেষণা ধনাত্মক সহযোগিতা, ঋণাত্মক সহযোগিতা এবং কোনো সহযোগিতাই নয় — তিনটিই জানিয়েছে। 1995 সালের একটি বহুল-উদ্ধৃত গবেষণা কোনো সহযোগিতা পায়নি, তবে তা কেবল মিশ্রণটিকে দুই দিন ধরে সাম্যাবস্থায় পৌঁছাতে দেওয়ার পর, যা বেশিরভাগ আধুনিক প্রয়োগের অপেক্ষার সময়ের চেয়ে অনেক বেশি।
চিহ্নকের ঝামেলা
প্রতিপ্রভা অণুবীক্ষণ (fluorescence microscopy) একক অণুকে অনুসরণ করতে পারে, তাই বায়োটিনের বন্ধন দেখার জন্য এটিকে আদর্শ মনে হয়। কিন্তু এর জন্য সাধারণত প্রতিপ্রভ রঞ্জক জুড়ে দিতে হয়। স্ট্রেপ্টাভিডিনের ওপর রঞ্জকগুলো কয়েক ন্যানোমিটার দূরে বসে একে অপরকে নিষ্প্রভ করে দেয়, ফলে বন্ধন-ঘটনার গণনা ঝাপসা হয়ে যায়; আর দেখা গেছে, রঞ্জক জোড়া লাগানো নিজেই বায়োটিনের বন্ধনকে ব্যাহত করে।
মার্সেইয়ের ফ্রেনেল ইনস্টিটিউটের (Fresnel Institute; Aix-Marseille University, CNRS, Centrale Med) মালবিকা কায়িল ভীডু (Malavika Kayyil Veedu), জেরোম ওয়েঙ্গার (Jérôme Wenger) ও তাঁদের সহকর্মীরা চিহ্নক পুরোপুরি এড়িয়ে গেছেন। তাঁরা প্রোটিনটিকে 295 ন্যানোমিটারের অতিবেগুনি আলো দিয়ে আলোকিত করেন এবং এর নিজস্ব ট্রিপটোফ্যান (tryptophan) অবশেষগুলোর — প্রোটিনের গঠন-উপাদান — ক্ষীণ আভা রেকর্ড করেন।
পূর্ণ প্রোটিন গোনা
প্রোটোকলটি কেবল সেই স্ট্রেপ্টাভিডিনগুলোকে গোনে যারা চারটি বায়োটিনই বহন করছে। দলটি 200 ন্যানোমোলার স্ট্রেপ্টাভিডিনের সঙ্গে ক্রমবর্ধমান পরিমাণ বায়োটিন মেশায়, তারপর যোগ করে বায়োটিন-প্রলেপ দেওয়া সিলিকা পুঁতি: যে প্রোটিনের একটি খোপ খালি, সেটি পুঁতিগুলোয় আটকে যায় এবং ঘূর্ণনে আলাদা করে সরিয়ে ফেলা হয়। দ্রবণে যা থাকে — পুরোপুরি ভরা প্রোটিনগুলো — তা পরিমাপ করা হয় এর অতিবেগুনি আভা দিয়ে।
ফলাফল-বক্ররেখার আকারই গল্পটা বলে দেয়। স্থানগুলো স্বাধীন হলে, বায়োটিন যোগ করার সঙ্গে সঙ্গে পুরোপুরি ভরা প্রোটিনের ভগ্নাংশ ধীরে ধীরে বাড়ে। ধনাত্মক সহযোগিতা থাকলে বায়োটিন আগে অল্প কয়েকটি প্রোটিনে জমা হয় এবং বক্ররেখা আগেভাগে ও খাড়াভাবে ওঠে; ঋণাত্মক সহযোগিতা থাকলে পূর্ণ ভরাট পিছিয়ে যায়। সিমুলেশনগুলো, যাদের সম্পূর্ণ কোড গবেষণাপত্রে দেওয়া আছে, প্রতিটি ক্ষেত্রের রেখা এঁকে দেখায়।
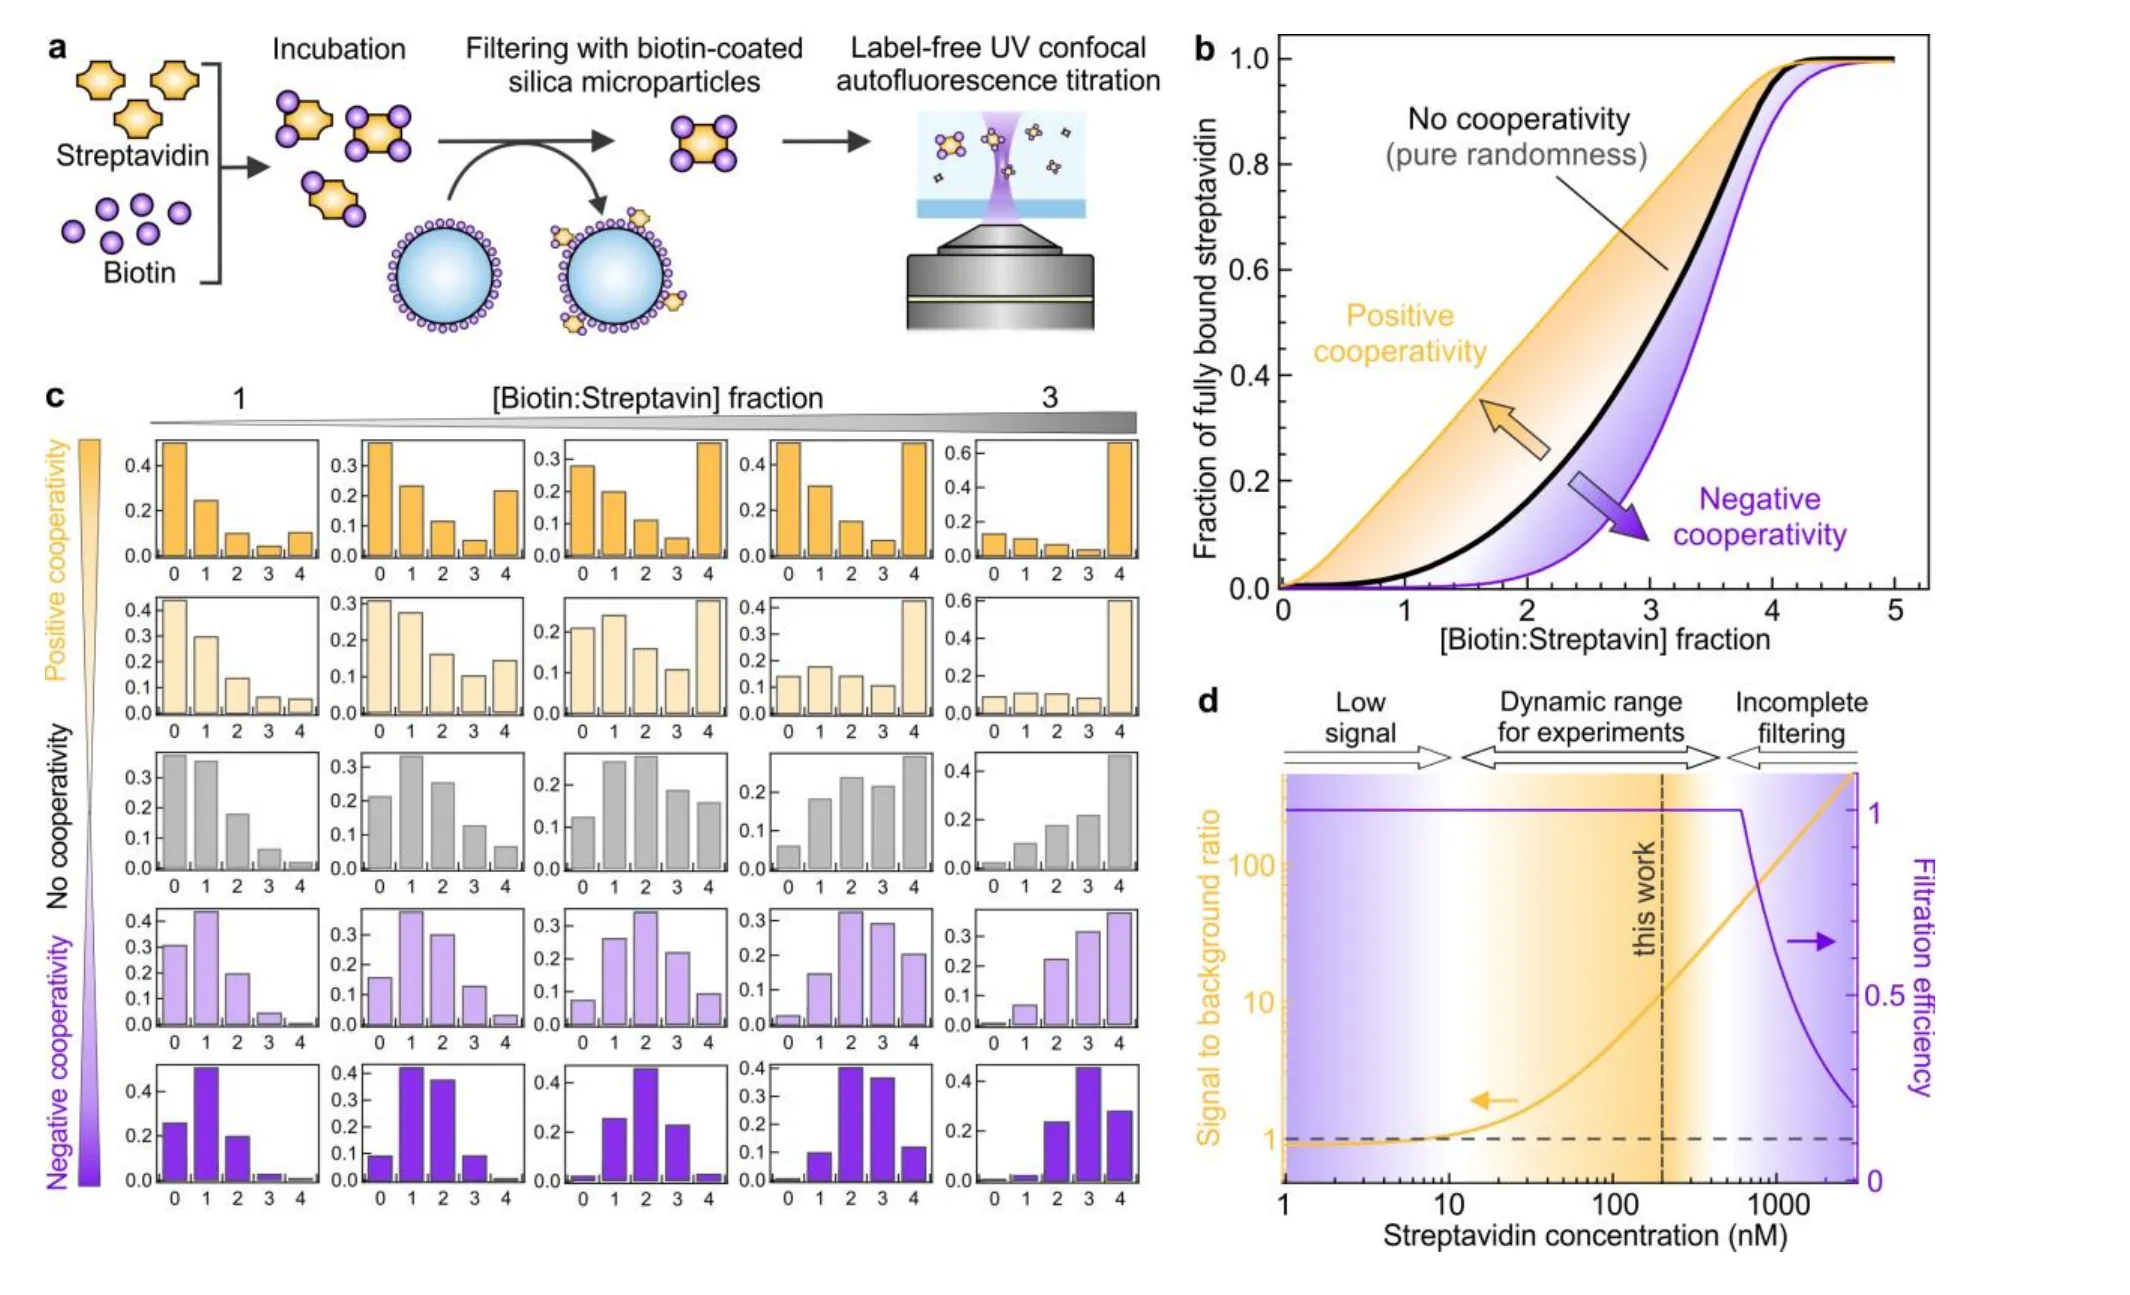
(a) প্রোটোকল: ইনকিউবেশন, বায়োটিন-প্রলেপ দেওয়া পুঁতিতে অসম্পূর্ণভাবে ভরা প্রোটিন অপসারণ, চিহ্নকহীন অতিবেগুনি পরিমাপ। (b) শূন্য, ধনাত্মক ও ঋণাত্মক সহযোগিতার জন্য পুরোপুরি ভরা স্ট্রেপ্টাভিডিনের সিমুলেটেড ভগ্নাংশ। (c) চারটি স্থানের সিমুলেটেড দখল। (d) কার্যকর পরিসর। — চিত্র 1, Kayyil Veedu et al. (2026), arXiv:2610.41363.
একই পরীক্ষা, দুটি উত্তর
দলটি একই পরীক্ষা দুবার চালায়, কেবল পিপেট দিয়ে ঢালা বায়োটিন দ্রবণের ঘনত্ব বদলে। লঘু বায়োটিনে (1.25 বা 2.5 মাইক্রোমোলার, সবসময় 15 মাইক্রোলিটারের বেশি আয়তনে যোগ করা) উপাত্ত স্বাধীন স্থানের বক্ররেখা অনুসরণ করে। ঘন বায়োটিনে (25 মাইক্রোমোলার, কয়েক মাইক্রোলিটারের ফোঁটায় যোগ করা) উপাত্ত সরাসরি ধনাত্মক সহযোগিতার এলাকায় গিয়ে পড়ে।
প্রোটিনটি দুটোই হতে পারে না। সামান্য অপূর্ণ ছাঁকনির হিসাব ধরলে, লঘু উপাত্ত কোনো সহযোগিতা ছাড়া একটি মডেলের সঙ্গে মেলে। তাহলে ঘন ফোঁটাগুলোর বেলায় কী ঘটল?
নাড়ার চেয়েও দ্রুত
বায়োটিন স্ট্রেপ্টাভিডিনের সঙ্গে খুব দ্রুত বাঁধে: মাইক্রোমোলার ঘনত্বে কয়েক দশ মিলিসেকেন্ডের মধ্যে — একটি দ্রবণ মেশানো যায় তার চেয়ে অনেক দ্রুত। তাই ঘন বায়োটিনের একটি ছোট ফোঁটা ছড়িয়ে পড়ার আগেই চারপাশের প্রোটিনগুলোর সঙ্গে বিক্রিয়া করে। স্থানীয়ভাবে প্রতি প্রোটিনে বায়োটিন থাকে গড়ের চেয়ে অনেক বেশি, ফলে প্রোটিনগুলোর একটি অংশ পুরোপুরি ভরে যায়। বক্ররেখায় সেটি দেখতে ঠিক সহযোগিতার মতো।
দলটি এটিকে সহজভাবে মডেল করেছে: বিক্রিয়াটি ঘটে 1.5 R + 1 মিলিমিটার ব্যাসার্ধের একটি গোলকের ভেতরে, যেখানে R হলো যোগ করা ফোঁটার ব্যাসার্ধ। 1.5 গুণকটি এসেছে পানিতে কালো কালির ফোঁটা ছড়িয়ে পড়ার ভিডিও থেকে; অতিরিক্ত মিলিমিটারটি উপাত্তের সঙ্গে মিলিয়ে নির্ধারণ করা হয়েছে। কোনো সহযোগিতা একেবারেই না রেখে, এই মডেল “সহযোগী” বিন্দুগুলোকে পুনরুৎপাদন করে।
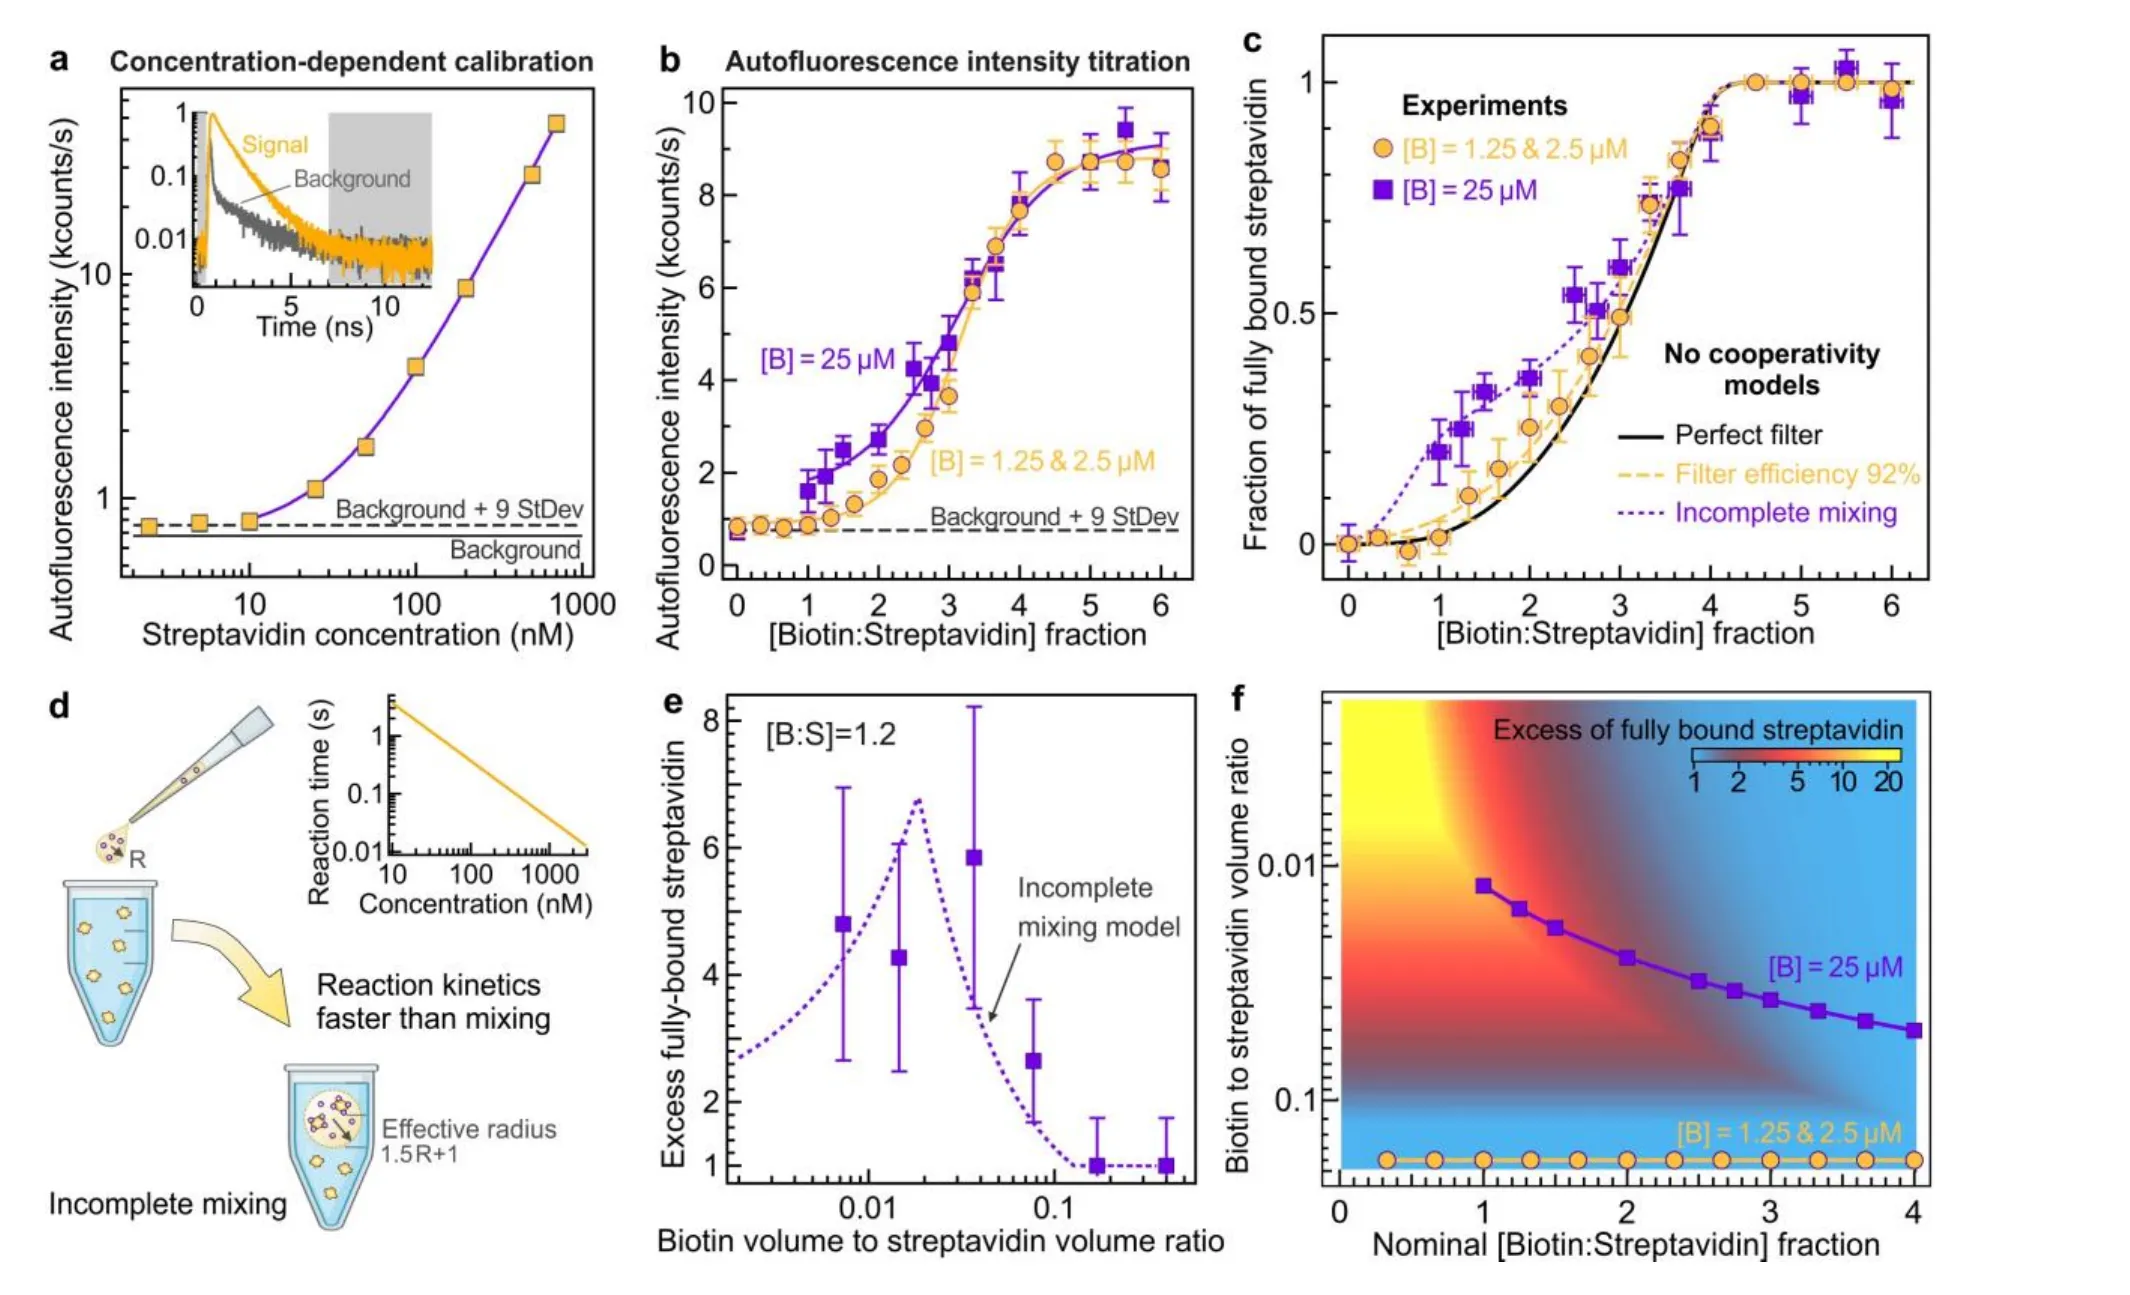
(c) লঘু বায়োটিন (কমলা) সহযোগিতাহীন বক্ররেখা অনুসরণ করে; ঘন বায়োটিন (বেগুনি) সহযোগী মনে হয়, এবং অসম্পূর্ণ-মিশ্রণ মডেল তার সঙ্গে মেলে। (d) মডেলটি। (e) যোগ করা আয়তন কমার সঙ্গে পুরোপুরি ভরা প্রোটিনের আধিক্য। (f) ত্রুটিপ্রবণ অবস্থার মানচিত্র। — চিত্র 2, Kayyil Veedu et al. (2026), arXiv:2610.41363.
সাবধানে পিপেট করার মানচিত্র
ধারণাটি সরাসরি যাচাই করতে দলটি অনুপাত প্রতি স্ট্রেপ্টাভিডিনে 1.2 বায়োটিনে স্থির রেখে কেবল যোগ করা বায়োটিনের আয়তন বদলায়। ফোঁটা যত ছোট হলো, পুরোপুরি ভরা প্রোটিনের আধিক্য তত বাড়ল, সর্বোচ্চে পৌঁছাল যখন বায়োটিনের আয়তন ছিল প্রোটিনের আয়তনের 2% — যেখানে বিক্রিয়া-অঞ্চলের ভেতরে স্থানীয় অনুপাত দাঁড়ায় প্রায় প্রতি প্রোটিনে 4টি বায়োটিন, প্রতিটি খোপ ভরার জন্য যথেষ্ট।
যাচাই-করা মডেল থেকে তাঁরা একটি মানচিত্র আঁকেন। প্রোটিন দ্রবণের 15%-এর বেশি আয়তনে বায়োটিন যোগ করলে মিশ্রণ পরিচ্ছন্ন থাকে। কম অনুপাতে ছোট আয়তন পুরোপুরি ভরা প্রোটিনের সংখ্যা চার গুণেরও বেশি ফুলিয়ে দিতে পারে।
প্রোটিনটি আসলে কী করে
জানা আছে যে বায়োটিনের বন্ধন স্ট্রেপ্টাভিডিনকে আরও সংহত ও আরও স্থিতিশীল করে। দলটির সিদ্ধান্ত: জুটিটি যে অবস্থায় বাস্তবে ব্যবহৃত হয়, সেখানে এই পরিবর্তনগুলো সহযোগী বন্ধনে রূপ নেয় না। তাঁদের পদ্ধতি গড়ে কতগুলো স্থান ভরা তা মাপতে পারে না, এবং খুব দুর্বল কোনো ধনাত্মক প্রভাব তাঁরা উড়িয়ে দিতে পারেন না; কিন্তু যে ফল বায়োটিন কীভাবে পিপেট করা হলো তার ওপর বদলে যায়, এবং সহযোগিতা ছাড়াই পুরোপুরি ব্যাখ্যা করা যায়, তা সহযোগিতার জন্য খুব কম জায়গা রাখে। এই বন্ধনের ওপর নির্ভর করা গবেষণাগারগুলোর জন্য শিক্ষাটি ব্যবহারিক: যখন একটি বিক্রিয়া মিশ্রণকে ছাড়িয়ে যায়, তখন ফোঁটার আকারই ফলাফল লিখে দিতে পারে।