مناقشهای چنددهساله بر سر محکمترین پیوند زیستفناوری، با یک پیپت فیصله یافت
استرپتاویدین (streptavidin) پروتئینی است که مولکولی به نام بیوتین (biotin) را با نیرویی خارقالعاده در چنگ میگیرد. ثابت تفکیک آنها، حدود 4 × 10⁻¹⁴ مولار، اغلب بهعنوان یکی از قویترین برهمکنشهای غیرکووالانسی در زیستشناسی ذکر میشود. همراه با رهاسازی بسیار کند و ویژگی (specificity) بالا، این جفت را به ابزاری پرکاربرد در نانوزیستفناوری بدل کرده است، از سنجشهای ایمنی گرفته تا تثبیت مولکولها روی سطوح.
استرپتاویدین از چهار زیرواحد یکسان ساخته شده و چهار جایگاه اتصال برای بیوتین دارد. این پرسشی قدیمی را پیش میکشد: آیا این جایگاهها همیارانه (cooperative) عمل میکنند؟ آیا بیوتینی که از پیش در جای خود نشسته، اتصال بیوتین بعدی را آسانتر میکند — یا دشوارتر؟ در طول دههها، پژوهشها همیاری مثبت، همیاری منفی و نبودِ همیاری را گزارش کردهاند. پژوهشی پرارجاع در سال 1995 هیچ همیاریای نیافت، اما تنها پس از آنکه گذاشت مخلوط دو روز به تعادل برسد، بسیار بیش از آنچه بیشتر کاربردهای امروزی صبر میکنند.
دردسر نشانگرها
میکروسکوپ فلورسانس میتواند تکمولکولها را دنبال کند، پس برای تماشای اتصال بیوتین آرمانی به نظر میرسد. اما معمولاً به چسباندن رنگهای فلورسنت نیاز دارد. روی استرپتاویدین، رنگها در فاصلهٔ چند نانومتری از هم مینشینند و درخشش یکدیگر را کم میکنند، که شمارش رویدادهای اتصال را مبهم میسازد؛ و نشان داده شده است که جفتکردن رنگ خودِ اتصال بیوتین را مختل میکند.
مالاویکا کاییل ویدو (Malavika Kayyil Veedu)، ژروم ونگر (Jérôme Wenger) و همکارانشان در مؤسسهٔ فرنل (Fresnel Institute) در مارسی (دانشگاه اکسـمارسی، CNRS، Centrale Med) یکسره از نشانگرها پرهیز کردند. آنها پروتئین را با نور فرابنفش 295 نانومتری روشن کردند و درخشش کمسوی باقیماندههای تریپتوفان (tryptophan) خودِ آن را، که از اجزای سازندهٔ پروتئیناند، ثبت کردند.
شمارش پروتئینهای پُر
این روش تنها استرپتاویدینهایی را میشمارد که هر چهار بیوتین را حمل میکنند. گروه 200 نانومولار استرپتاویدین را با مقادیر فزایندهٔ بیوتین مخلوط کرد و سپس دانههای سیلیسی پوشیده از بیوتین افزود: هر پروتئینی که جایگاهی خالی داشته باشد به آنها میچسبد و با سانتریفیوژ جدا میشود. آنچه در محلول میماند — پروتئینهای کاملاً پُر — با درخشش فرابنفشش اندازهگیری میشود.
شکل منحنی حاصل داستان را بازمیگوید. اگر جایگاهها مستقل باشند، سهم پروتئینهای کاملاً پُر با افزودن بیوتین بهتدریج بالا میرود. با همیاری مثبت، بیوتین نخست روی چند پروتئین انباشته میشود و منحنی زود و تند بالا میرود؛ با همیاری منفی، پُرشدن کامل به تأخیر میافتد. شبیهسازیهایی که کد کاملشان در مقاله آمده است، هر حالت را ترسیم میکنند.
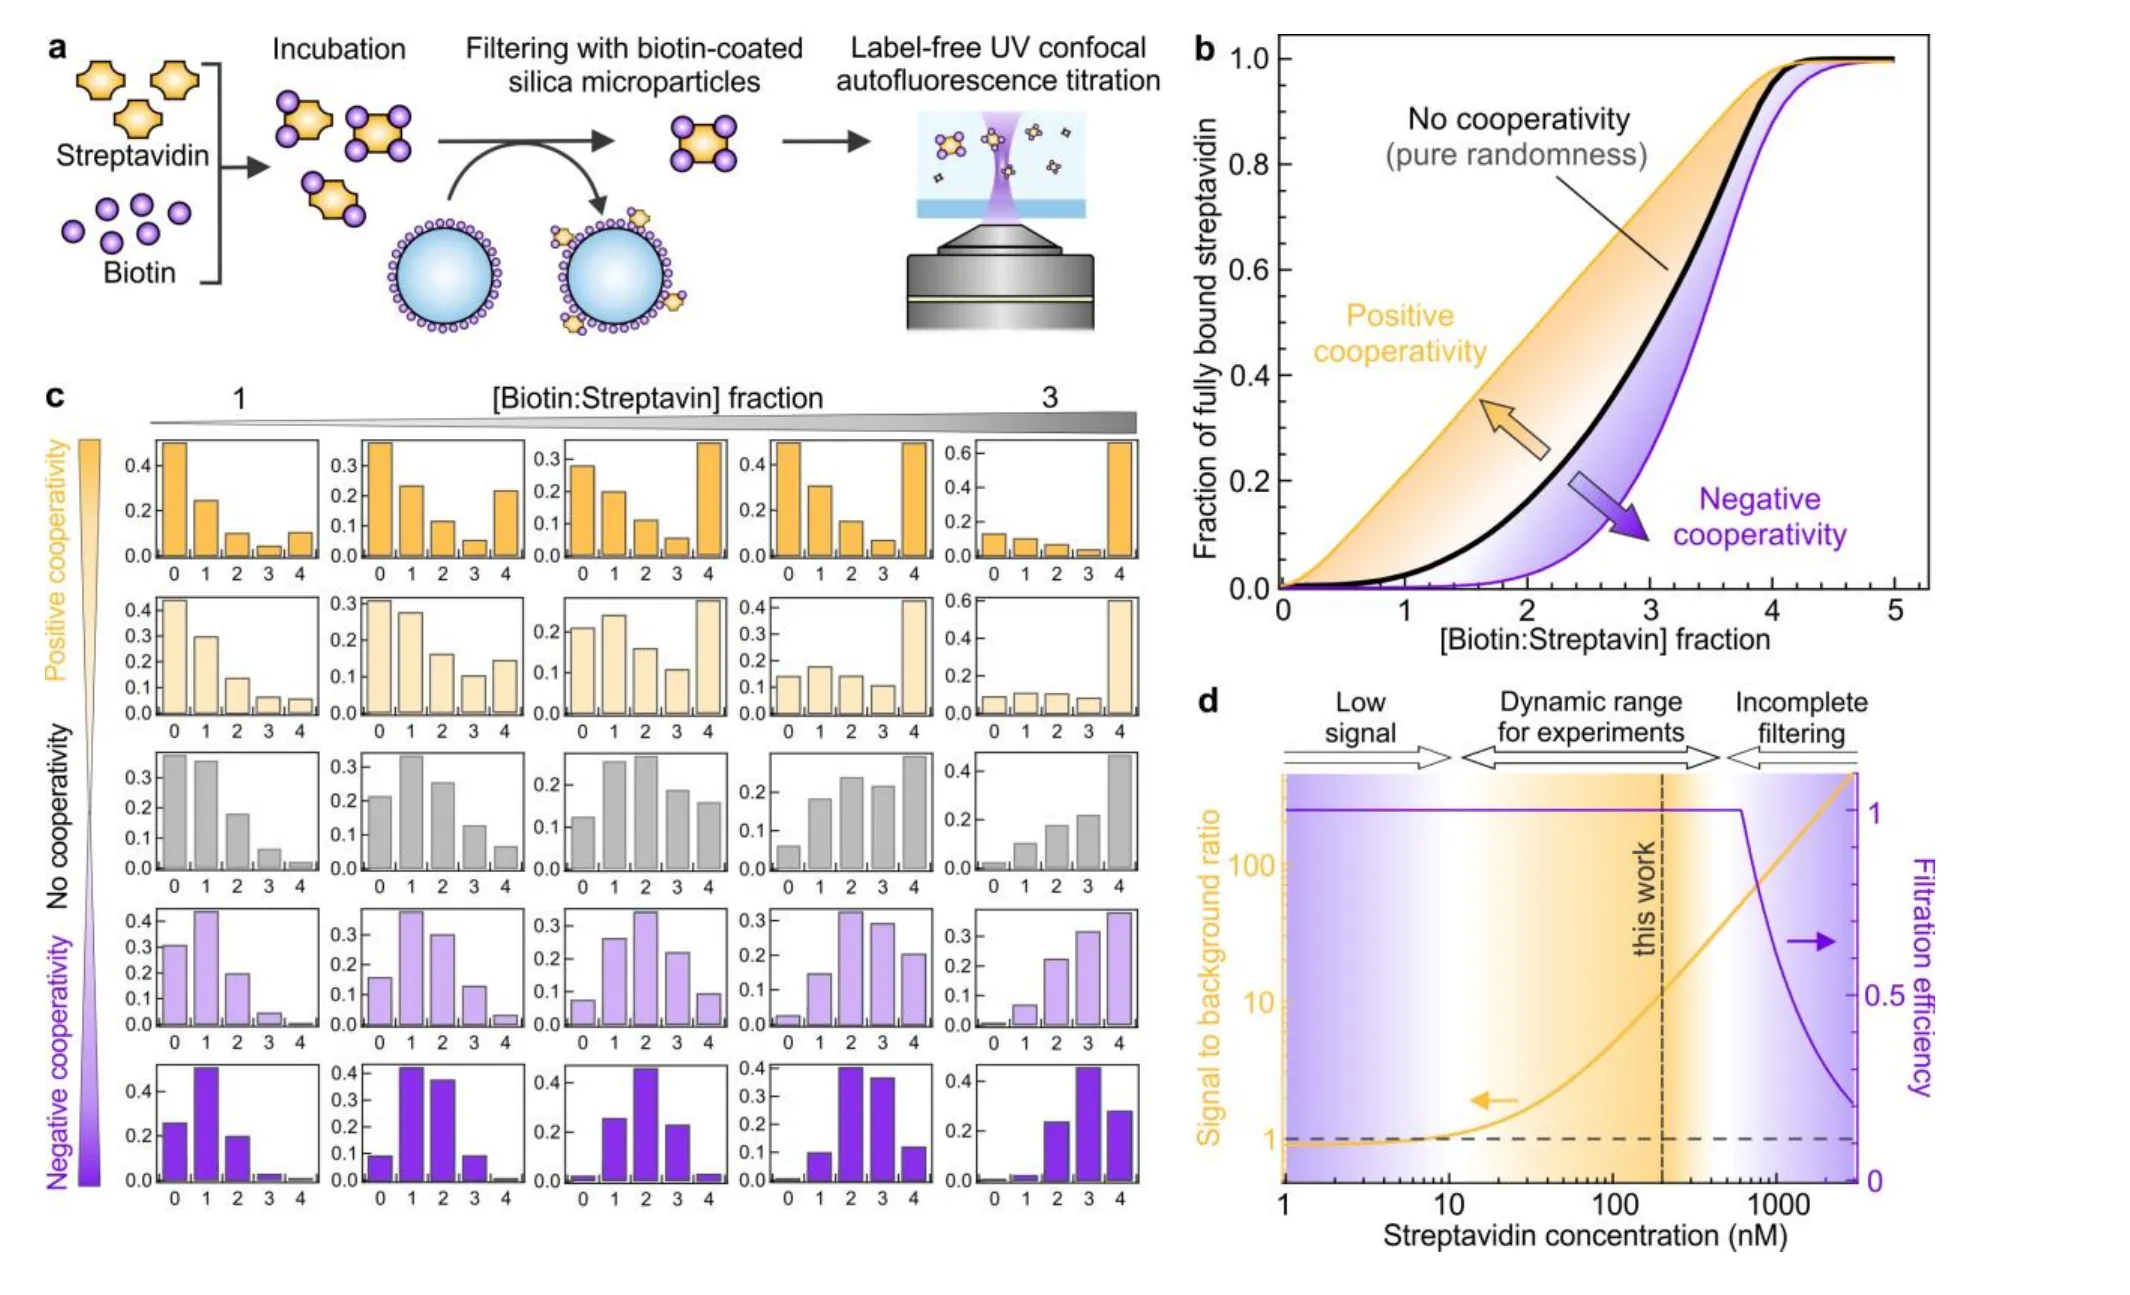
(a) روش: گرماگذاری، جداسازی پروتئینهای ناقصپُر روی دانههای پوشیده از بیوتین، اندازهگیری فرابنفش بدون نشانگر. (b) سهم شبیهسازیشدهٔ استرپتاویدین کاملاً پُر برای نبودِ همیاری، همیاری مثبت و همیاری منفی. (c) اشغال شبیهسازیشدهٔ چهار جایگاه. (d) گسترهٔ کاری. — شکل 1، Kayyil Veedu و همکاران (2026)، arXiv:2610.41363.
یک آزمایش، دو پاسخ
گروه همان آزمایش را دو بار انجام داد و تنها غلظت محلول بیوتینی را که با پیپت میافزود تغییر داد. با بیوتین رقیق (1.25 یا 2.5 میکرومولار، افزودهشده در حجمهایی همواره بالای 15 میکرولیتر)، دادهها از منحنی جایگاههای مستقل پیروی میکنند. با بیوتین غلیظ (25 میکرومولار، افزودهشده در قطرههایی چندمیکرولیتری)، دادهها درست در محدودهٔ همیاری مثبت قرار میگیرند.
پروتئین نمیتواند هر دو باشد. دادههای رقیق، پس از در نظر گرفتن اندکی پالایش ناکامل، با مدلی بدون همیاری جور درمیآیند. پس با قطرههای غلیظ چه رخ داده بود؟
تندتر از همزدن
بیوتین بسیار سریع به استرپتاویدین متصل میشود: در غلظتهای میکرومولار، در عرض چند ده میلیثانیه — بسیار سریعتر از آنکه بتوان محلولی را مخلوط کرد. بنابراین قطرهای کوچک از بیوتین غلیظ پیش از آنکه پخش شود با پروتئینهای پیرامونش واکنش میدهد. در همان محل، بیوتین به ازای هر پروتئین بسیار بیشتر از میانگین است، پس زیرمجموعهای از پروتئینها بهطور کامل پر میشوند. روی منحنی، این درست مانند همیاری به نظر میرسد.
گروه این را بهسادگی مدل کرد: واکنش درون کرهای به شعاع 1.5 R + 1 میلیمتر رخ میدهد، که R شعاع قطرهٔ افزودهشده است. ضریب 1.5 از فیلمبرداری از پخششدن قطرههای جوهر سیاه در آب به دست آمد؛ آن یک میلیمتر اضافه با برازش بر دادهها تعیین شد. این مدل، بیهیچ همیاری، نقطههای «همیارانه» را بازتولید میکند.
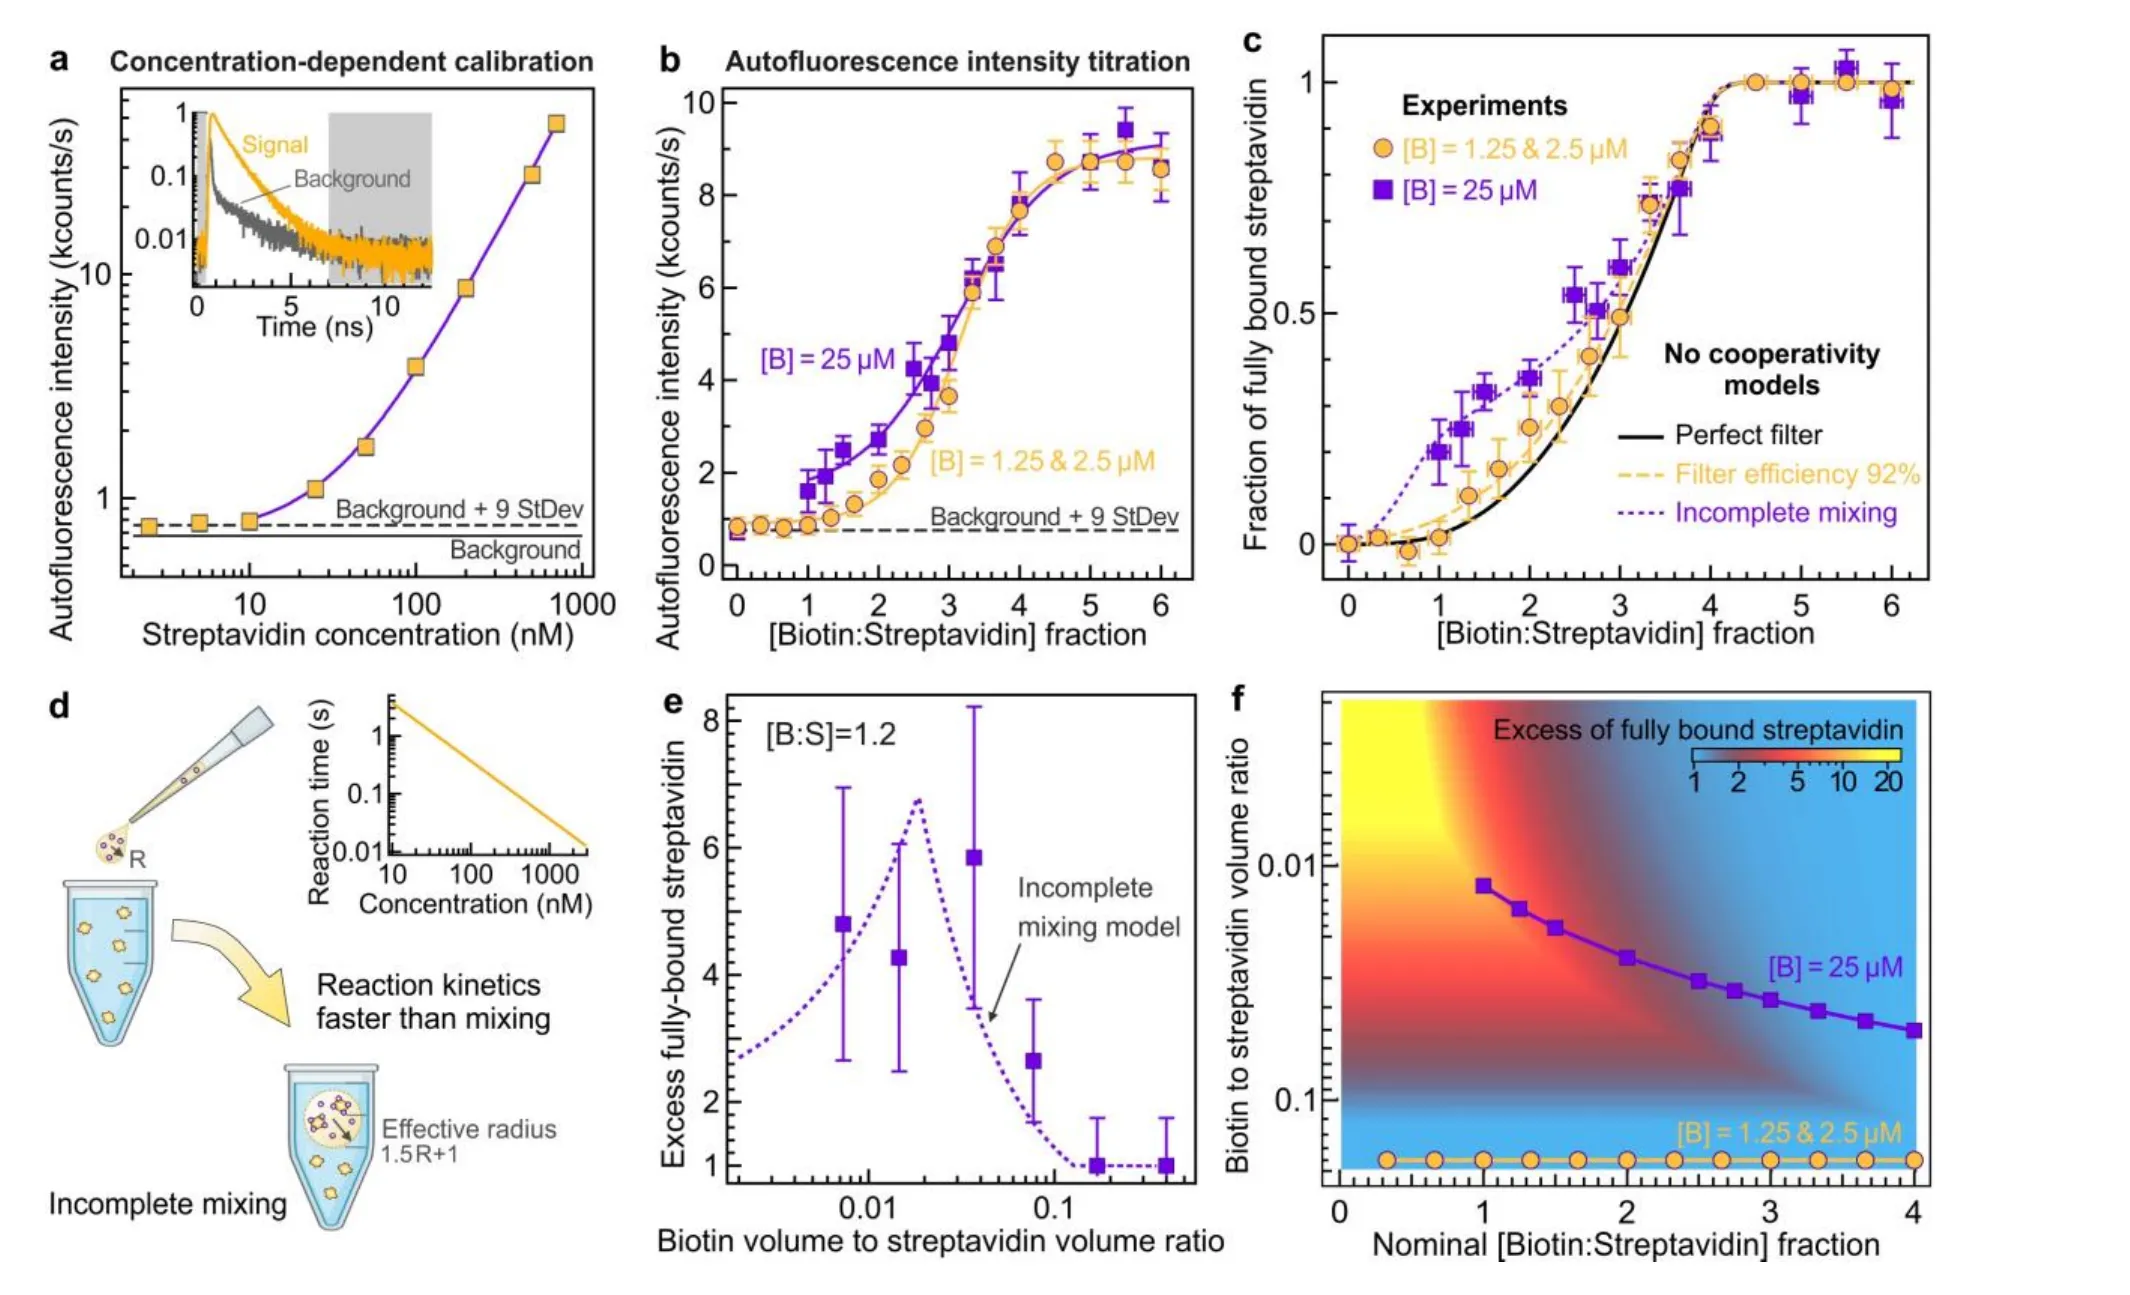
(c) بیوتین رقیق (نارنجی) از منحنی بدون همیاری پیروی میکند؛ بیوتین غلیظ (بنفش) همیارانه به نظر میرسد و مدل اختلاط ناقص با آن جور درمیآید. (d) مدل. (e) مازاد پروتئینهای کاملاً پُر با کوچکشدن حجم افزودهشده. (f) نقشهٔ شرایط مستعد این خطای آزمایشی. — شکل 2، Kayyil Veedu و همکاران (2026)، arXiv:2610.41363.
نقشهای برای پیپتکردن با دقت
برای آزمودن مستقیم این ایده، گروه نسبت را روی 1.2 بیوتین به ازای هر استرپتاویدین ثابت نگه داشت و تنها حجم بیوتین افزودهشده را تغییر داد. با کوچکشدن قطره، مازاد پروتئینهای کاملاً پُر بیشتر شد و هنگامی به اوج رسید که حجم بیوتین 2% حجم پروتئین بود — جایی که درون منطقهٔ واکنش، نسبت محلی به حدود 4 بیوتین به ازای هر پروتئین میرسد، که برای پرکردن همهٔ جایگاهها بس است.
آنها از روی مدلِ اعتبارسنجیشده نقشهای کشیدند. افزودن بیوتین در حجمی بیش از 15% محلول پروتئین، مخلوط را تمیز نگه میدارد. حجمهای کوچک در نسبتهای پایین میتوانند شمار پروتئینهای کاملاً پُر را بیش از چهار برابر بزرگنمایی کنند.
پروتئین واقعاً چه میکند
میدانیم که اتصال بیوتین استرپتاویدین را فشردهتر و پایدارتر میکند. گروه نتیجه میگیرد که این تغییرات، در شرایطی که این جفت در عمل به کار میرود، به اتصال همیارانه نمیانجامند. روش آنها نمیتواند اندازه بگیرد که بهطور میانگین چند جایگاه پر شده است، و نمیتوانند اثر مثبتی بسیار ضعیف را رد کنند؛ اما نتیجهای که با شیوهٔ پیپتکردن بیوتین تغییر میکند و بیهیچ همیاریای بهطور کامل توضیح داده میشود، جای چندانی برای همیاری باقی نمیگذارد. برای آزمایشگاههایی که به این پیوند تکیه دارند، درس عملی است: وقتی واکنشی از اختلاط پیش میافتد، اندازهٔ قطره میتواند نتیجه را رقم بزند.