UNA PIPETA ZANJA UN DEBATE DE DÉCADAS SOBRE EL ENLACE MÁS FUERTE DE LA BIOTECNOLOGÍA
La estreptavidina es una proteína que sujeta con una fuerza extraordinaria una molécula llamada biotina. Su constante de disociación, de alrededor de 4 × 10⁻¹⁴ molar, se cita a menudo como una de las interacciones no covalentes más fuertes de la biología. Sumada a una liberación muy lenta y a una gran especificidad, esto convierte a la pareja en un caballo de batalla de la nanobiotecnología, desde los inmunoensayos hasta la inmovilización de moléculas sobre superficies.
La estreptavidina está formada por cuatro subunidades idénticas, con cuatro sitios de unión para la biotina. Eso plantea una vieja pregunta: ¿son cooperativos los sitios? ¿Una biotina ya colocada hace que la siguiente se una con más facilidad, o con menos? A lo largo de las décadas, los estudios han descrito cooperatividad positiva, cooperatividad negativa y ninguna. Un estudio de 1995 citado con frecuencia no encontró ninguna, pero solo después de dejar que la mezcla alcanzara el equilibrio durante dos días, mucho más de lo que esperan la mayoría de las aplicaciones modernas.
El problema de los marcadores
La microscopía de fluorescencia puede seguir moléculas individuales, así que parece ideal para observar cómo se une la biotina. Pero normalmente exige acoplar colorantes fluorescentes. En la estreptavidina, los colorantes quedan a pocos nanómetros unos de otros y se atenúan mutuamente, lo que difumina el recuento de uniones, y se ha demostrado que el acoplamiento de colorantes perjudica la propia unión de la biotina.
Malavika Kayyil Veedu, Jérôme Wenger y sus colegas del Instituto Fresnel de Marsella (Universidad de Aix-Marsella, CNRS, Centrale Med) prescindieron por completo de los marcadores. Iluminaron la proteína con luz ultravioleta de 295 nanómetros y registraron el débil brillo de sus propios residuos de triptófano, piezas que forman la proteína.
Contar proteínas llenas
El protocolo solo cuenta las estreptavidinas que llevan las cuatro biotinas. El equipo mezcló estreptavidina 200 nanomolar con cantidades crecientes de biotina y después añadió bolitas de sílice recubiertas de biotina: cualquier proteína con un hueco libre se pega a ellas y se elimina por centrifugación. Lo que queda en solución, las proteínas completamente cargadas, se mide por su brillo ultravioleta.
La forma de la curva resultante lo dice todo. Si los sitios son independientes, la fracción de proteínas completamente cargadas aumenta poco a poco a medida que se añade biotina. Con cooperatividad positiva, la biotina se acumula primero en unas pocas proteínas y la curva sube pronto y con fuerza; con cooperatividad negativa, la carga completa se retrasa. Unas simulaciones, cuyo código completo figura en el artículo, trazan cada caso.
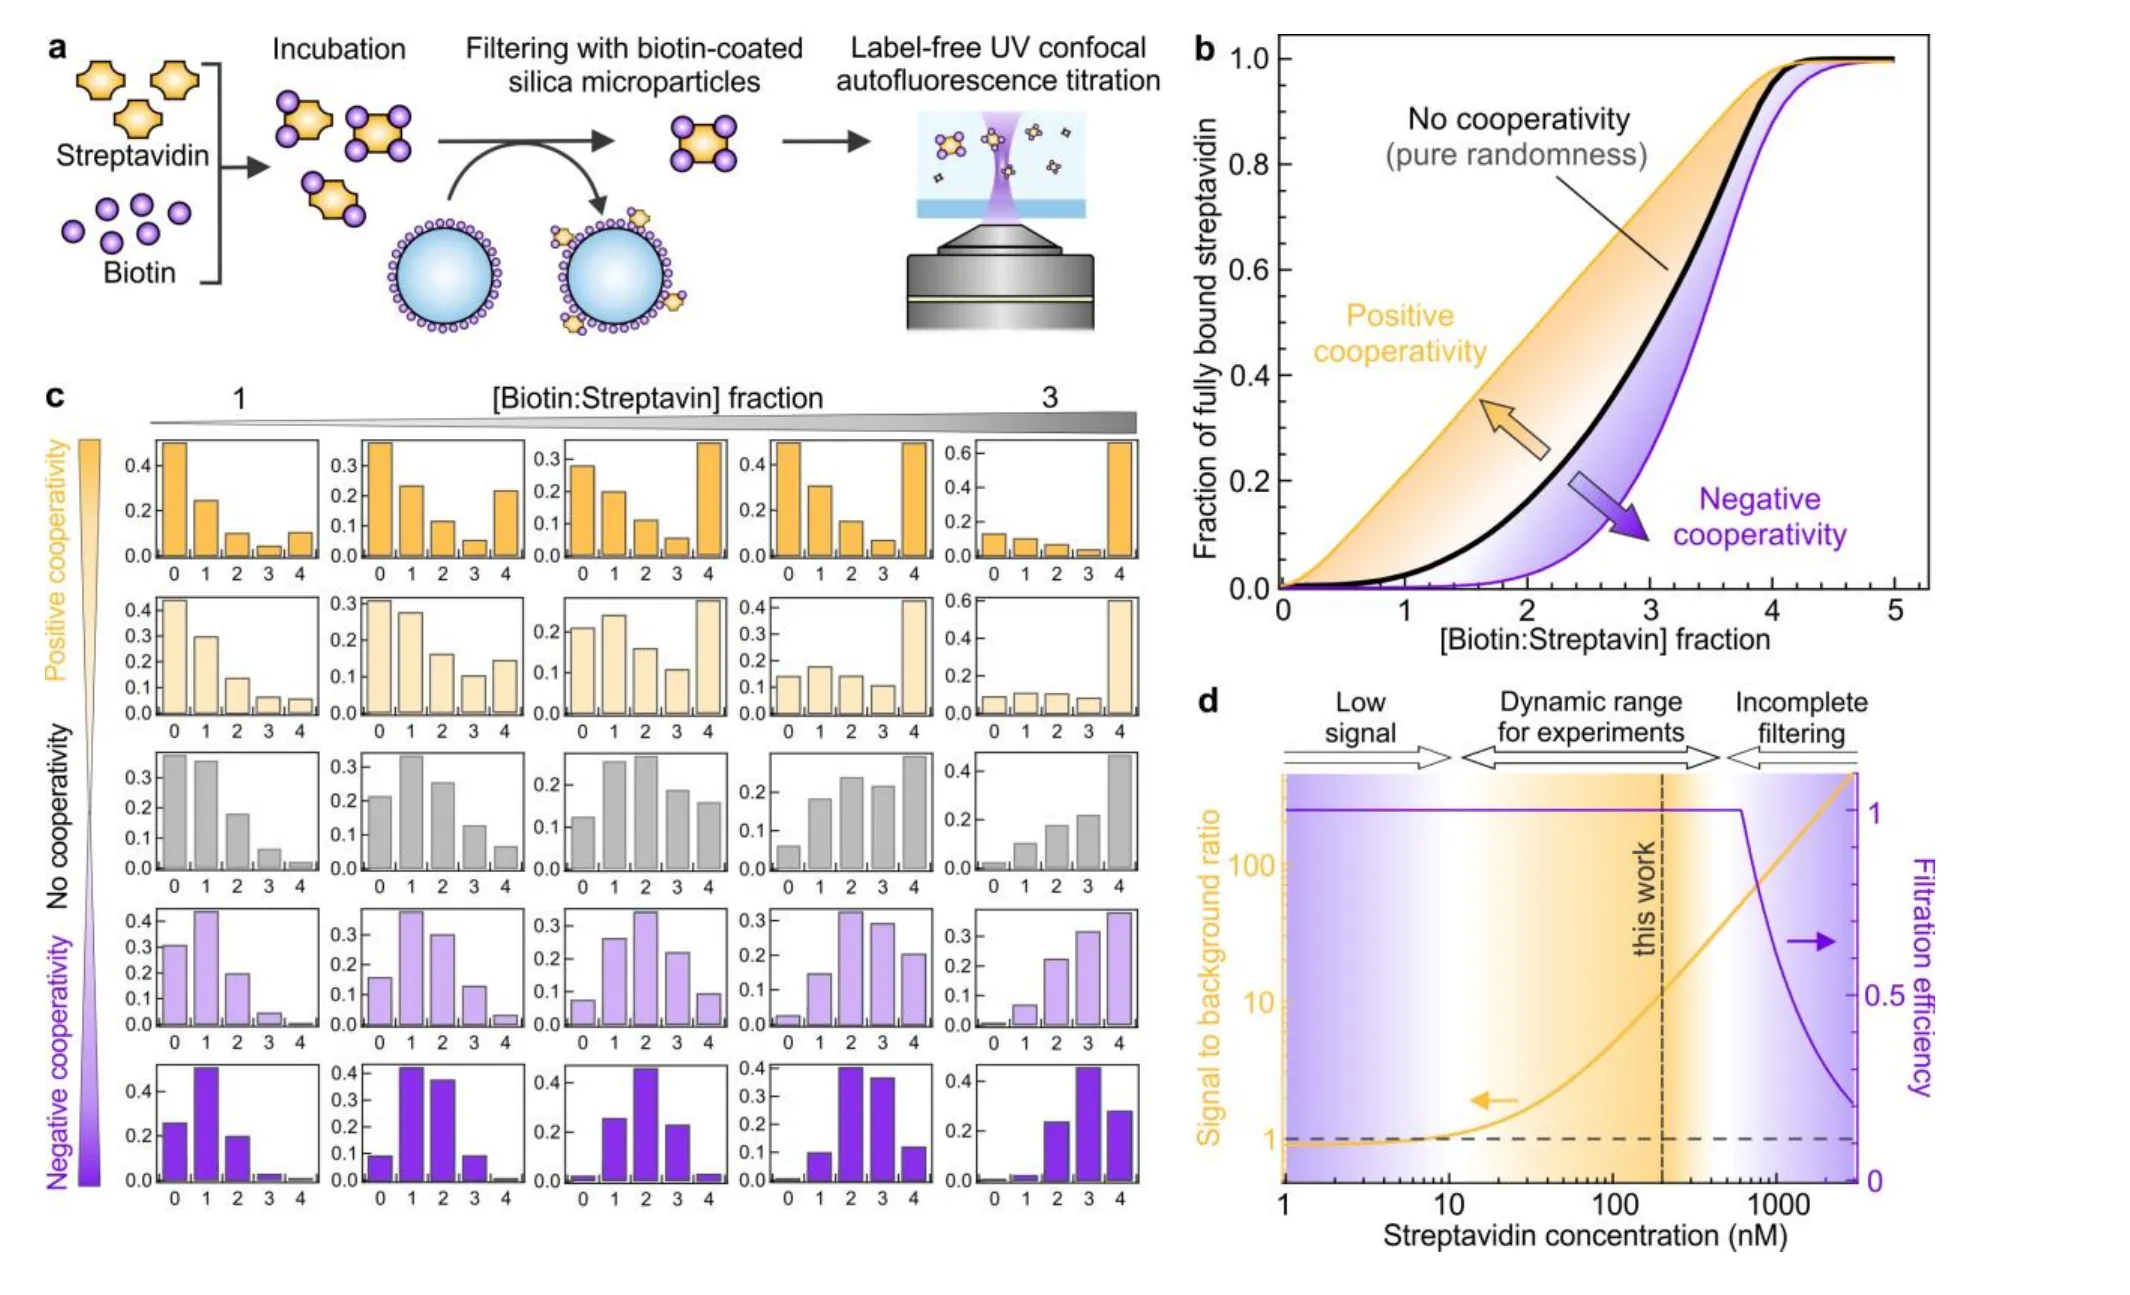
(a) El protocolo: incubación, retirada de las proteínas cargadas de forma incompleta con bolitas recubiertas de biotina, medición ultravioleta sin marcador. (b) Fracción simulada de estreptavidina completamente cargada sin cooperatividad, con cooperatividad positiva y con cooperatividad negativa. (c) Ocupación simulada de los cuatro sitios. (d) El intervalo de trabajo. — Figura 1, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Un experimento, dos respuestas
El equipo realizó el mismo experimento dos veces, cambiando solo la concentración de la solución de biotina que añadía con la pipeta. Con biotina diluida (1,25 o 2,5 micromolar, añadida siempre en volúmenes de más de 15 microlitros), los datos siguen la curva de sitios independientes. Con biotina concentrada (25 micromolar, añadida en gotas de unos pocos microlitros), los datos caen de lleno en la zona de cooperatividad positiva.
La proteína no puede ser ambas cosas. Los datos con biotina diluida se ajustan a un modelo sin cooperatividad, una vez que se tiene en cuenta un filtrado ligeramente imperfecto. ¿Qué pasó entonces con las gotas concentradas?
Más rápida que la agitación
La biotina se une a la estreptavidina muy deprisa: a concentraciones micromolares, en unas pocas decenas de milisegundos, mucho más rápido de lo que se puede mezclar una solución. Una gota pequeña de biotina concentrada reacciona, por tanto, con las proteínas que la rodean antes de haberse dispersado. A nivel local hay mucha más biotina por proteína que la media, de modo que una parte de las proteínas se llena por completo. En la curva, eso se parece exactamente a la cooperatividad.
El equipo lo modelizó de forma sencilla: la reacción ocurre dentro de una esfera de radio 1,5 R + 1 milímetro, donde R es el radio de la gota añadida. El factor 1,5 procede de filmar gotas de tinta negra que se dispersan en agua; el milímetro adicional se ajustó a los datos. Sin ninguna cooperatividad, este modelo reproduce los puntos «cooperativos».
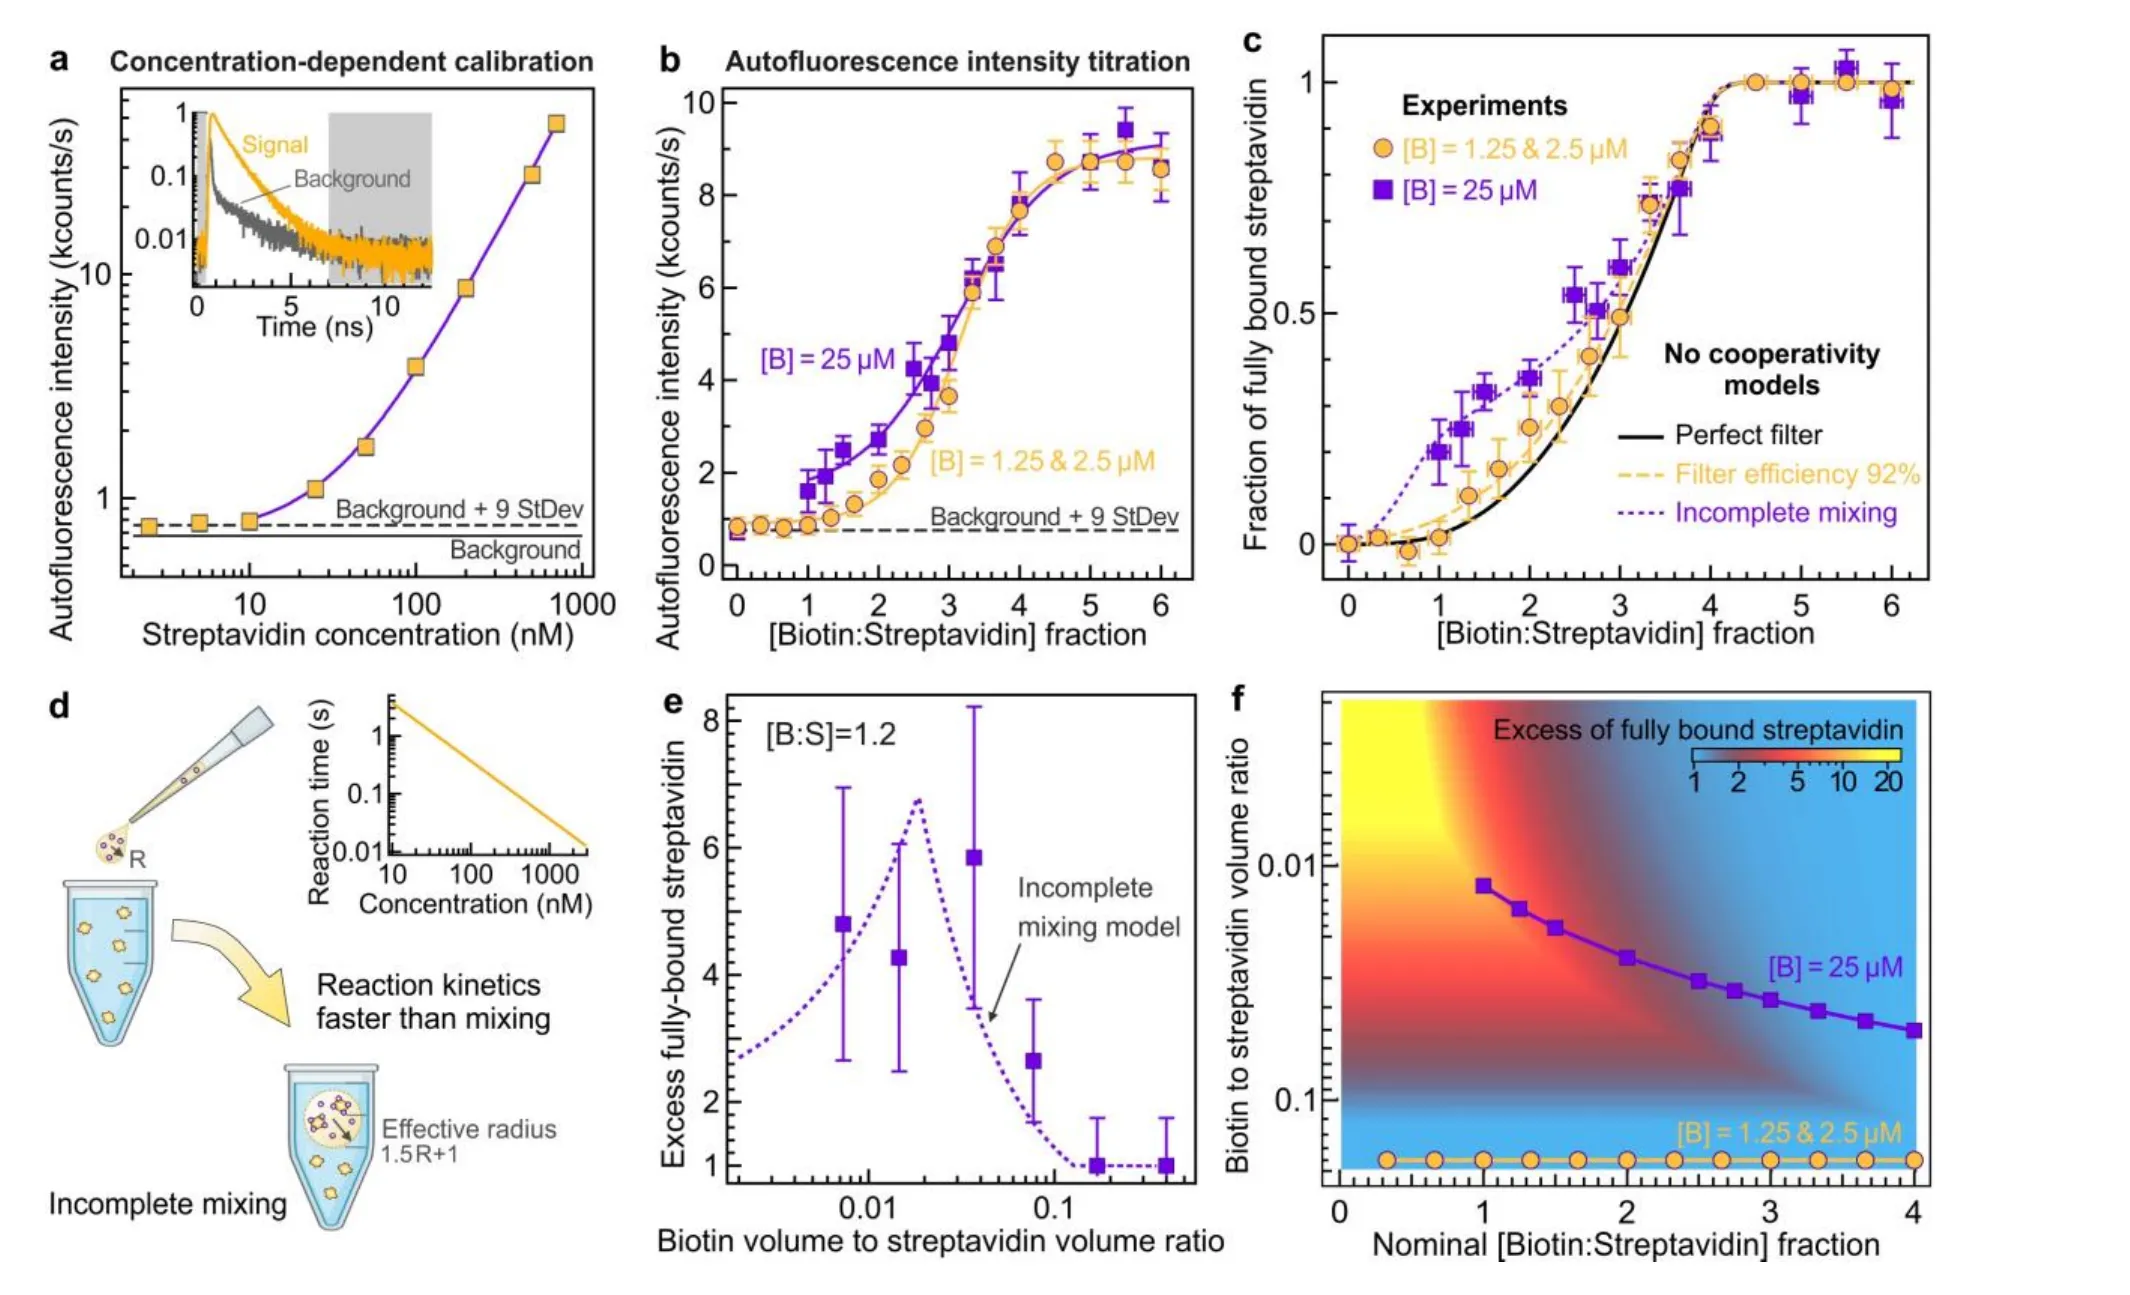
(c) La biotina diluida (naranja) sigue la curva sin cooperatividad; la biotina concentrada (violeta) parece cooperativa y la reproduce el modelo de mezcla incompleta. (d) El modelo. (e) Exceso de proteínas completamente cargadas a medida que se reduce el volumen añadido. (f) Mapa de las condiciones propensas al artefacto. — Figura 2, Kayyil Veedu et al. (2026), arXiv:2610.41363.
Un mapa para pipetear con cuidado
Para poner a prueba la idea directamente, el equipo fijó la relación en 1,2 biotinas por estreptavidina y varió solo el volumen de biotina añadido. A medida que la gota se encogía, el exceso de proteínas completamente cargadas crecía, con un máximo cuando el volumen de biotina era el 2 % del volumen de proteína: ahí, dentro de la zona de reacción, la relación local alcanza unas 4 biotinas por proteína, suficiente para llenar todos los huecos.
A partir del modelo validado, trazaron un mapa. Añadir la biotina en un volumen superior al 15 % de la solución de proteína mantiene limpia la mezcla. Volúmenes pequeños con relaciones bajas pueden inflar el número de proteínas completamente cargadas más de cuatro veces.
Lo que hace realmente la proteína
Se sabe que la unión de la biotina hace la estreptavidina más compacta y más estable. El equipo concluye que estos cambios no se traducen en una unión cooperativa en las condiciones en que realmente se usa la pareja. Su método no puede medir cuántos sitios están ocupados en promedio, y no pueden descartar un efecto positivo muy débil; pero un resultado que cambia según cómo se pipetea la biotina, y que se explica por completo sin cooperatividad, deja poco margen a la cooperación. Para los laboratorios que dependen de este enlace, la lección es práctica: cuando una reacción va más rápido que la mezcla, el tamaño de la gota puede escribir el resultado.