जैवतंत्रज्ञानातील सर्वात मजबूत बंधाविषयीचा दशकांपासूनचा वाद, एका पिपेटने मिटवला
स्ट्रेप्टाव्हिडिन (streptavidin) हे एक प्रथिन आहे जे बायोटिन (biotin) नावाच्या रेणूला विलक्षण ताकदीने धरून ठेवते. त्यांचा वियोजन स्थिरांक (dissociation constant), सुमारे 4 × 10⁻¹⁴ मोलार, जीवशास्त्रातील सर्वात मजबूत असहसंयुज (non-covalent) आंतरक्रियांपैकी एक म्हणून अनेकदा उद्धृत केला जातो. अतिशय मंद विलगीकरण आणि उच्च विशिष्टता यांच्या जोडीने, यामुळे ही जोडी नॅनो-जैवतंत्रज्ञानातील एक भरवशाचे साधन ठरते — प्रतिरक्षा-चाचण्यांपासून (immunoassays) पृष्ठभागांवर रेणू स्थिर करण्यापर्यंत.
स्ट्रेप्टाव्हिडिन चार एकसारख्या उप-एककांनी (subunits) बनलेले असते, ज्यांत बायोटिनसाठी चार बंधन-स्थाने असतात. यातून एक जुना प्रश्न उभा राहतो: ही स्थाने सहकारी (cooperative) आहेत का? आधीच जागी असलेला बायोटिन पुढच्या बायोटिनचे बंधन अधिक सोपे करतो — की अधिक कठीण? गेल्या दशकांत, अभ्यासांनी धन सहकारिता, ऋण सहकारिता, आणि कोणतीही सहकारिता नाही, असे तिन्ही निष्कर्ष नोंदवले आहेत. 1995 मधील एका वारंवार उद्धृत केल्या जाणाऱ्या अभ्यासात सहकारिता आढळली नाही, पण तीही मिश्रणाला दोन दिवस समतोल गाठू दिल्यानंतरच — बहुतेक आधुनिक उपयोगांमध्ये जितका वेळ थांबले जाते त्यापेक्षा कितीतरी अधिक.
लेबलांची अडचण
प्रतिदीप्ती सूक्ष्मदर्शिकी (fluorescence microscopy) एकेका रेणूचा मागोवा घेऊ शकते, त्यामुळे बायोटिनचे बंधन पाहण्यासाठी ती आदर्श वाटते. पण तिच्यासाठी सहसा प्रतिदीप्त रंजके (fluorescent dyes) जोडावी लागतात. स्ट्रेप्टाव्हिडिनवर ही रंजके एकमेकांपासून काही नॅनोमीटर अंतरावर असतात आणि एकमेकांना मंद करतात, ज्यामुळे बंधन-घटनांची मोजणी धूसर होते; आणि रंजक जोडण्यामुळे बायोटिनचे बंधनच बिघडते, हेही दाखवले गेले आहे.
Malavika Kayyil Veedu, Jérôme Wenger आणि मार्सेयमधील फ्रेनेल इन्स्टिट्यूटमधील (Aix-Marseille University, CNRS, Centrale Med) सहकाऱ्यांनी लेबले पूर्णपणे टाळली. त्यांनी प्रथिनावर 295 नॅनोमीटरचा अतिनील प्रकाश टाकला आणि प्रथिनाच्याच ट्रिप्टोफॅन (tryptophan) अवशेषांची — प्रथिनाच्या घटक-एककांची — मंद चमक नोंदवली.
पूर्ण भरलेल्या प्रथिनांची मोजणी
ही पद्धत फक्त चारही बायोटिन वाहणारे स्ट्रेप्टाव्हिडिन मोजते. चमूने 200 नॅनोमोलार स्ट्रेप्टाव्हिडिन वाढत्या प्रमाणातील बायोटिनसोबत मिसळले, आणि मग बायोटिनचा लेप असलेले सिलिकाचे मणी घातले: ज्या प्रथिनात एखादी जागा रिकामी आहे ते त्यांना चिकटते आणि फिरवून बाजूला काढले जाते. द्रावणात जे उरते — पूर्ण भरलेली प्रथिने — ते त्याच्या अतिनील चमकेवरून मोजले जाते.
मिळणाऱ्या वक्राचा आकार सारी कहाणी सांगतो. जर स्थाने स्वतंत्र असतील, तर बायोटिन घालत जाताना पूर्ण भरलेल्या प्रथिनांचा अंश हळूहळू वाढतो. धन सहकारितेत, बायोटिन आधी काही थोड्या प्रथिनांवरच साचत जातो आणि वक्र लवकर व तीव्रपणे चढतो; ऋण सहकारितेत, पूर्ण भरणे लांबणीवर पडते. सिम्युलेशन्स (simulations), ज्यांचा संपूर्ण कोड शोधनिबंधात दिला आहे, प्रत्येक स्थिती रेखाटतात.
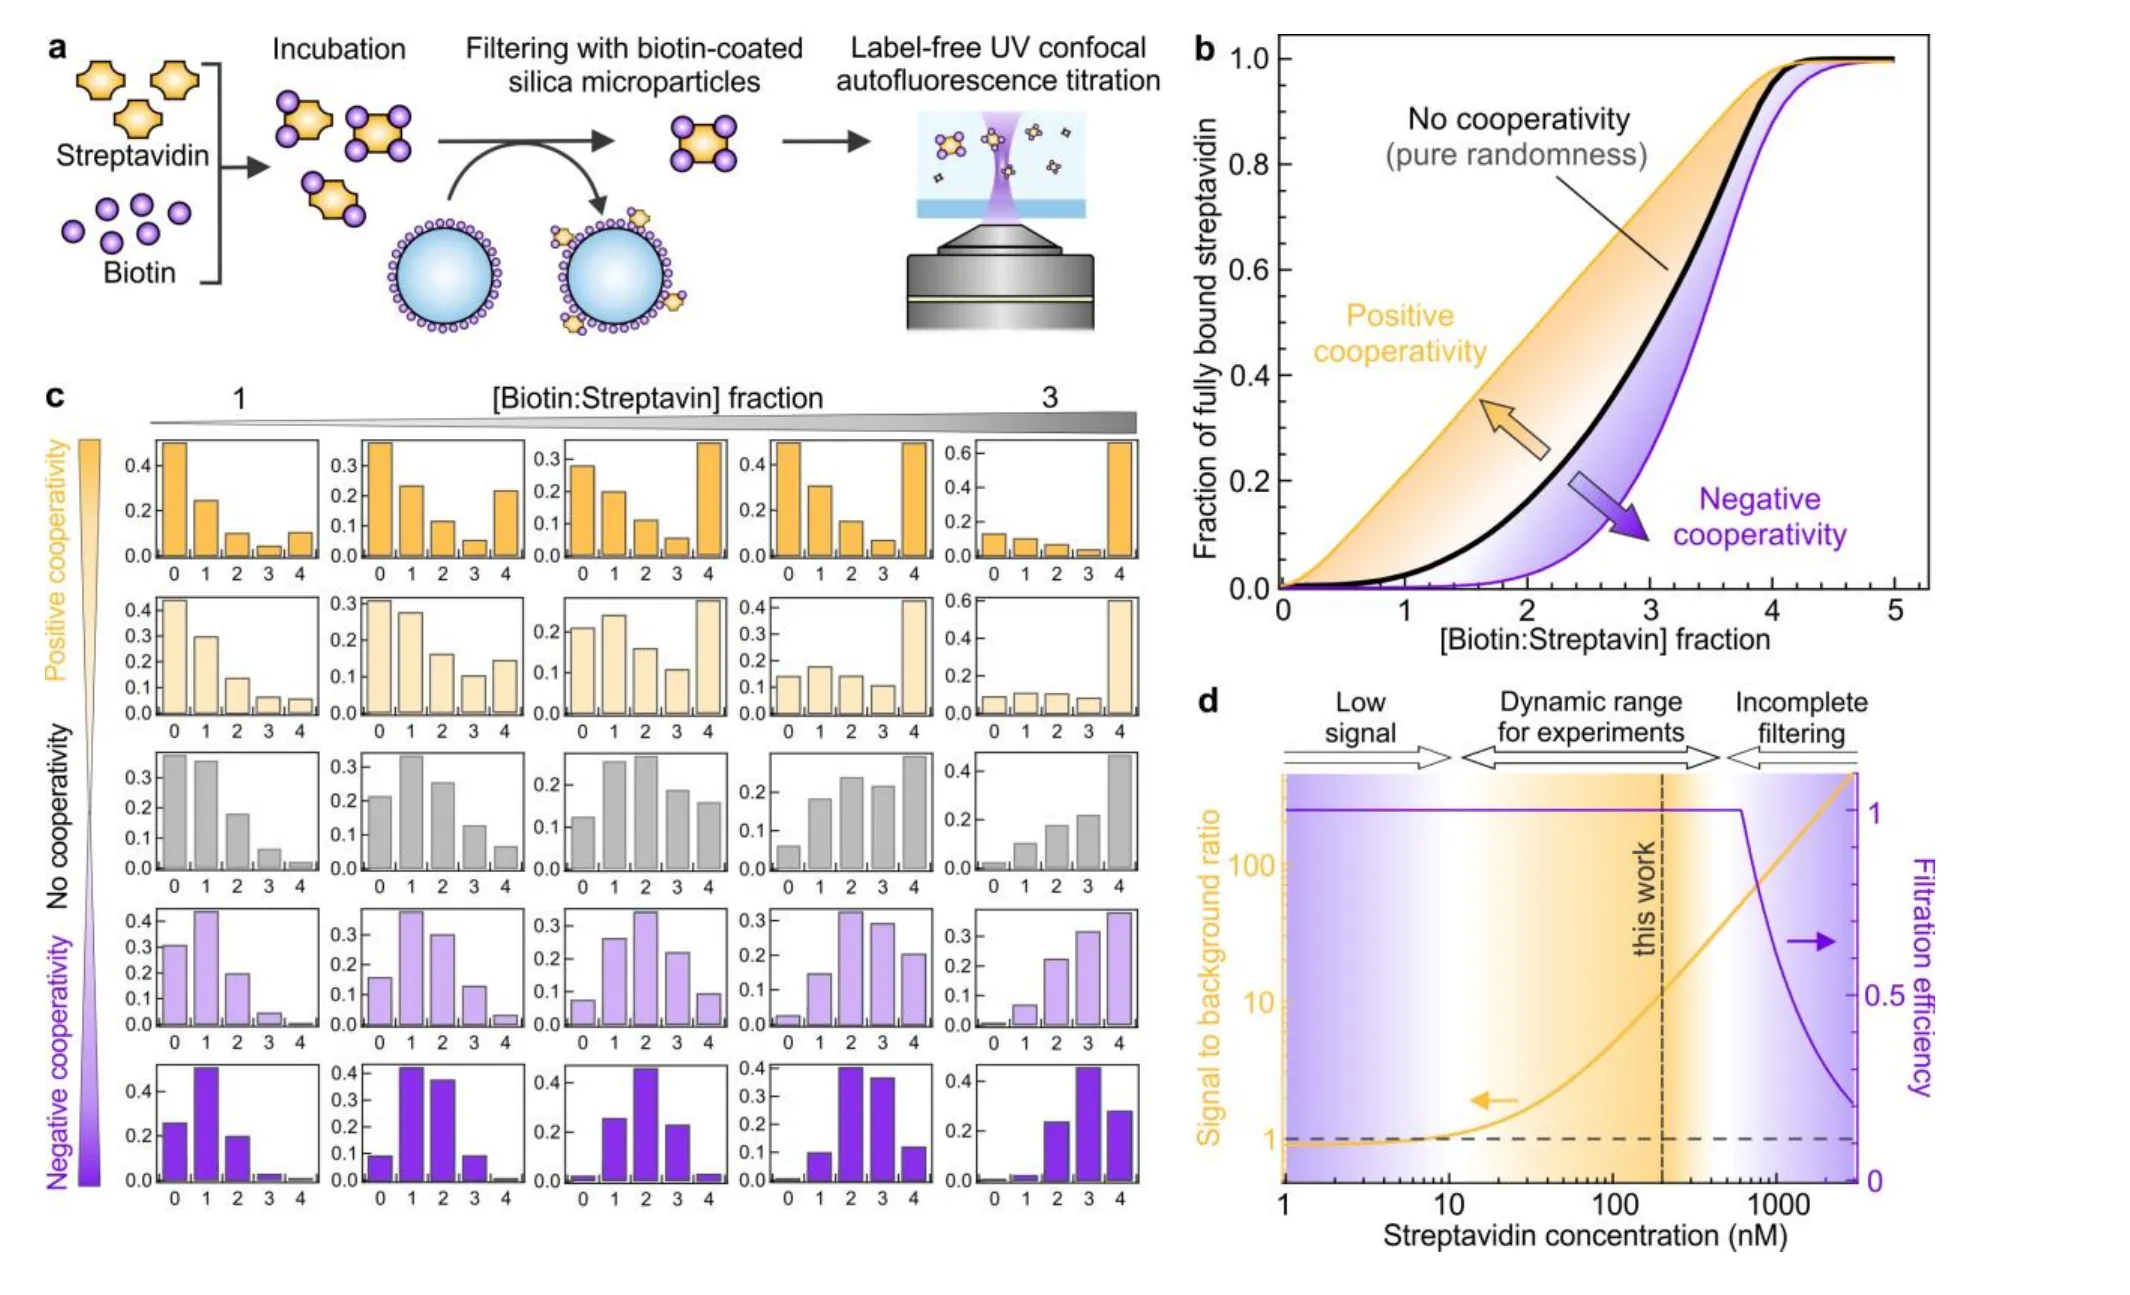
(a) पद्धत: उबवण (incubation), बायोटिन-लेपित मण्यांवर अपूर्ण भरलेली प्रथिने काढून टाकणे, लेबलविरहित अतिनील मापन. (b) शून्य, धन आणि ऋण सहकारितेसाठी पूर्ण भरलेल्या स्ट्रेप्टाव्हिडिनचा सिम्युलेट केलेला अंश. (c) चार स्थानांची सिम्युलेट केलेली व्याप्ती. (d) कार्यकक्षा. — Figure 1, Kayyil Veedu et al. (2026), arXiv:2610.41363.
एक प्रयोग, दोन उत्तरे
चमूने तोच प्रयोग दोनदा केला, फक्त पिपेटने घातलेल्या बायोटिन द्रावणाची संहती बदलून. विरल बायोटिनसह (1.25 किंवा 2.5 मायक्रोमोलार, नेहमी 15 मायक्रोलिटरपेक्षा अधिक घनफळात घातलेले), मापने स्वतंत्र स्थानांच्या वक्राला अनुसरतात. एकवटलेल्या बायोटिनसह (25 मायक्रोमोलार, काही मायक्रोलिटरच्या थेंबांत घातलेले), मापने थेट धन सहकारितेच्या क्षेत्रात पडतात.
प्रथिन दोन्ही असू शकत नाही. थोडेसे अपूर्ण गाळणे गृहीत धरल्यावर, विरल बायोटिनची मापने कोणतीही सहकारिता नसलेल्या प्रारूपात बसतात. मग एकवटलेल्या थेंबांच्या बाबतीत काय घडले?
ढवळण्यापेक्षा वेगवान
बायोटिन स्ट्रेप्टाव्हिडिनला अतिशय वेगाने बांधला जातो: मायक्रोमोलार संहतीत, काही दहा मिलिसेकंदांत — द्रावण मिसळता येते त्यापेक्षा कितीतरी वेगाने. त्यामुळे एकवटलेल्या बायोटिनचा एक छोटा थेंब पसरण्याआधीच आसपासच्या प्रथिनांशी अभिक्रिया करतो. स्थानिक पातळीवर, सरासरीपेक्षा प्रति प्रथिन कितीतरी अधिक बायोटिन असतो, त्यामुळे प्रथिनांचा एक उपसंच पूर्णपणे भरतो. वक्रावर हे अगदी सहकारितेसारखेच दिसते.
चमूने याचे सोपे प्रारूप बनवले: अभिक्रिया 1.5 R + 1 मिलिमीटर त्रिज्येच्या एका गोलाच्या आत घडते, जिथे R ही घातलेल्या थेंबाची त्रिज्या आहे. 1.5 हा गुणक पाण्यात पसरणाऱ्या काळ्या शाईच्या थेंबांचे चित्रीकरण करून मिळाला; अतिरिक्त मिलिमीटर मापनांशी जुळवून (fit) ठरवला गेला. कोणतीही सहकारिता नसतानाही, हे प्रारूप “सहकारी” बिंदू पुन्हा निर्माण करते.
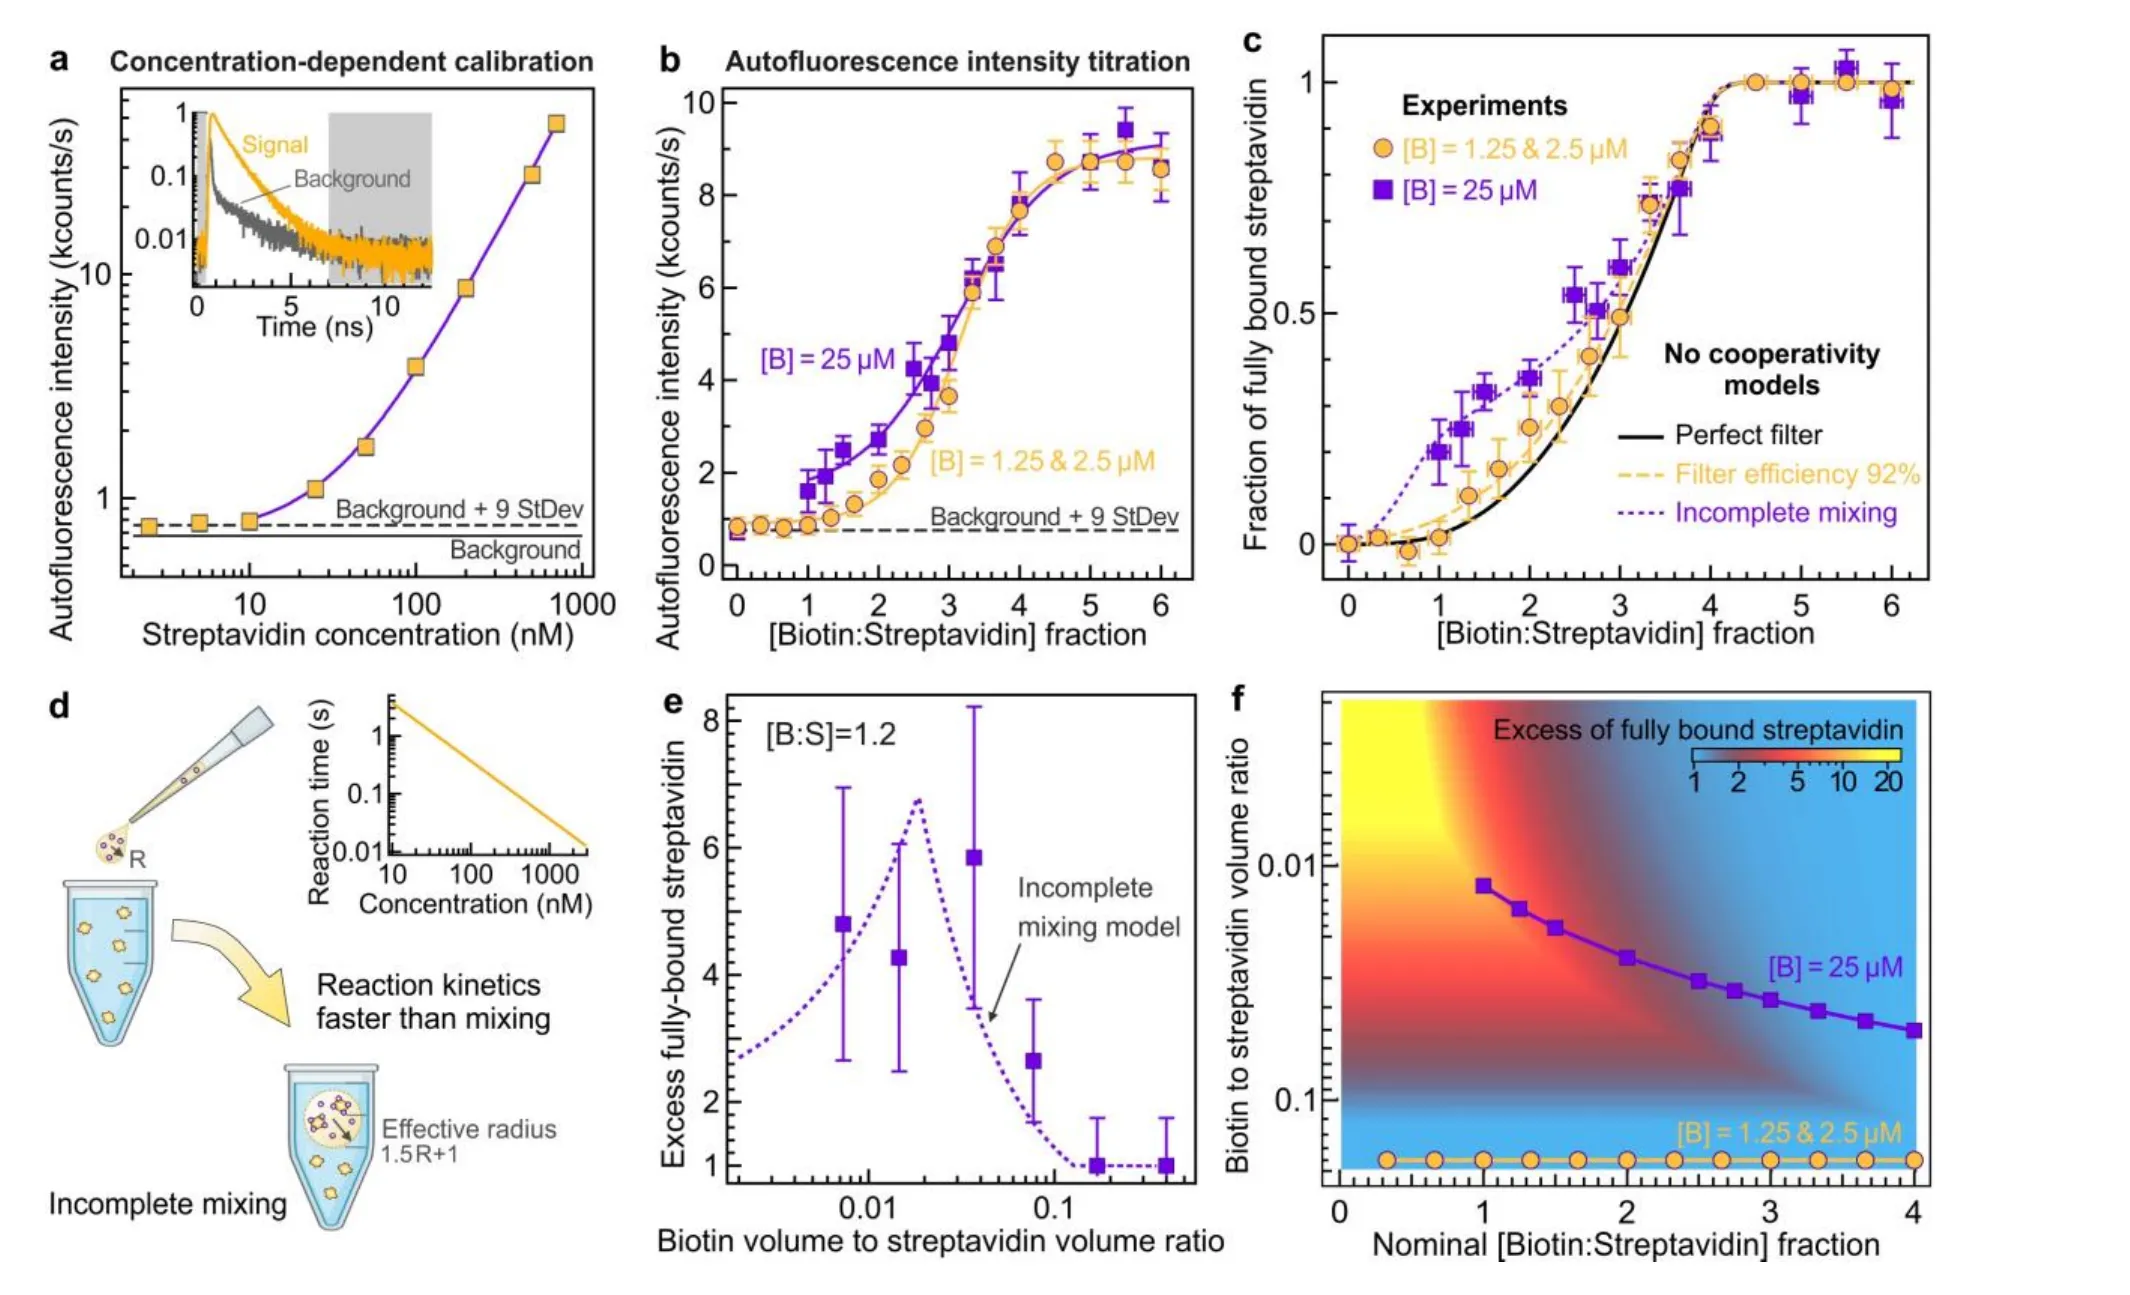
(c) विरल बायोटिन (नारिंगी) सहकारितेविनाच्या वक्राला अनुसरतो; एकवटलेला बायोटिन (जांभळा) सहकारी वाटतो, आणि अपूर्ण-मिसळण प्रारूपाशी जुळतो. (d) प्रारूप. (e) घातलेले घनफळ कमी होत जाताना पूर्ण भरलेल्या प्रथिनांचा अतिरेक. (f) या कृत्रिम दोषाला प्रवण असलेल्या परिस्थितींचा नकाशा. — Figure 2, Kayyil Veedu et al. (2026), arXiv:2610.41363.
काळजीपूर्वक पिपेटिंगसाठी एक नकाशा
ही कल्पना थेट तपासण्यासाठी, चमूने गुणोत्तर प्रति स्ट्रेप्टाव्हिडिन 1.2 बायोटिनवर स्थिर ठेवले आणि फक्त घातलेल्या बायोटिनचे घनफळ बदलले. थेंब लहान होत गेला तसतसा पूर्ण भरलेल्या प्रथिनांचा अतिरेक वाढत गेला, आणि बायोटिनचे घनफळ प्रथिनाच्या घनफळाच्या 2% असताना तो शिखरावर पोहोचला — तिथे, अभिक्रिया-क्षेत्राच्या आत, स्थानिक गुणोत्तर सुमारे प्रति प्रथिन 4 बायोटिन इतके होते, प्रत्येक जागा भरण्यास पुरेसे.
प्रमाणित केलेल्या प्रारूपावरून चमूने एक नकाशा तयार केला. प्रथिन द्रावणाच्या 15% पेक्षा अधिक घनफळात बायोटिन घातल्यास मिश्रण स्वच्छ राहते. कमी गुणोत्तरांवर लहान घनफळे पूर्ण भरलेल्या प्रथिनांची संख्या चौपटीहून अधिक फुगवू शकतात.
प्रथिन प्रत्यक्षात काय करते
बायोटिनच्या बंधनामुळे स्ट्रेप्टाव्हिडिन अधिक आटोपशीर (compact) आणि अधिक स्थिर होते, हे ज्ञात आहे. चमूचा निष्कर्ष असा आहे की ही जोडी प्रत्यक्ष ज्या परिस्थितीत वापरली जाते, त्या परिस्थितीत हे बदल सहकारी बंधनात रूपांतरित होत नाहीत. त्यांची पद्धत सरासरी किती स्थाने भरलेली आहेत हे मोजू शकत नाही, आणि अतिशय क्षीण धन परिणामाची शक्यता ते नाकारू शकत नाहीत; पण बायोटिन पिपेटने कसा घातला यानुसार बदलणारा, आणि सहकारितेविना पूर्णपणे स्पष्ट होणारा निष्कर्ष, सहकारितेसाठी फारशी जागा ठेवत नाही. या बंधावर अवलंबून असणाऱ्या प्रयोगशाळांसाठी धडा व्यावहारिक आहे: जेव्हा अभिक्रिया मिसळण्याच्या पुढे धावते, तेव्हा थेंबाचा आकार निष्कर्ष लिहू शकतो.