わずかなDNAの液滴で、網目が25倍硬くなる
やわらかい材料に硬い粒子を混ぜると、粒子が占める空間に比例して材料は硬くなる。少量の場合、この法則にはアインシュタインの名前がついている。硬さは1 + 5ϕ/2倍になる。ここでϕは粒子が占める体積の割合だ。体積の10分の1なら、倍率は1.25。完全に硬い粒子であっても、最大で25%硬くなるだけである。
マインツのヨハネス・グーテンベルク大学のSam Wilken、カリフォルニア大学サンタバーバラ校のOmar Salehらは、代わりに液体の液滴を使った。体積の10分の1未満を占めるだけで、約25倍硬い材料ができた。しかも可逆的に。
筋肉由来のフィラメントと、DNAでできた星
基質となるのは、ウサギの筋肉の粉末から精製したアクチンの絡み合いである。アクチンの単位がつながって、長さ10〜30マイクロメートル、太さわずか7ナノメートルのフィラメントになる。このフィラメントは曲がりにくい。その硬さの目安である持続長は約17マイクロメートルで、フィラメント自身の長さに近い。これが絡み合うと、やわらかい網目ができる。
液滴は、DNAのナノスター(nanostar)でできている。差し渡し約10ナノメートルの、4本の腕をもつ粒子だ。腕の先端には、互いに結合する短い「粘着性」の鎖がついている。融解温度(混合の条件によって27〜31 °C)より下では、ナノスターが集まって高密度のDNA液体の液滴になり、それより上では再び溶けてばらばらになる。これが液–液相分離であり、こうした生体分子の液滴は凝縮体(condensate)と呼ばれる。アクチンとDNAは互いに結合しない。
フィラメントのまわりで成長する液滴
研究チームは、アクチンを37 °Cで組み上がらせてから、試料を冷やした。アクチンがないと、液滴は合体して大きな滴になり、沈んでいった。アクチンがあると、液滴は差し渡し数マイクロメートルにとどまり、試料全体に浮かんだままだった。2色のイメージングで意外なことがわかった。アクチンの信号は、液滴の内部でも一様なままだったのだ。液滴はフィラメントを押しのけるのではなく、フィラメントのまわりに形成されていた。そのため、それぞれの液滴はアクチンに貫かれている。この状態は14時間以上続いた。3日後には、アクチンはほとんど抜け出していた。
網目は液滴の大きさも決める。液滴は揺れ動きながら合体することで成長する。網目はそれぞれの液滴をばねでつないだように保持するので、手の届く範囲に隣の液滴がなくなると合体は止まる。著者らのモデルが予測するとおり、網目が硬いほど液滴は小さくなる。そして液滴の大きさは、アクチンがないときよりもそろっている。
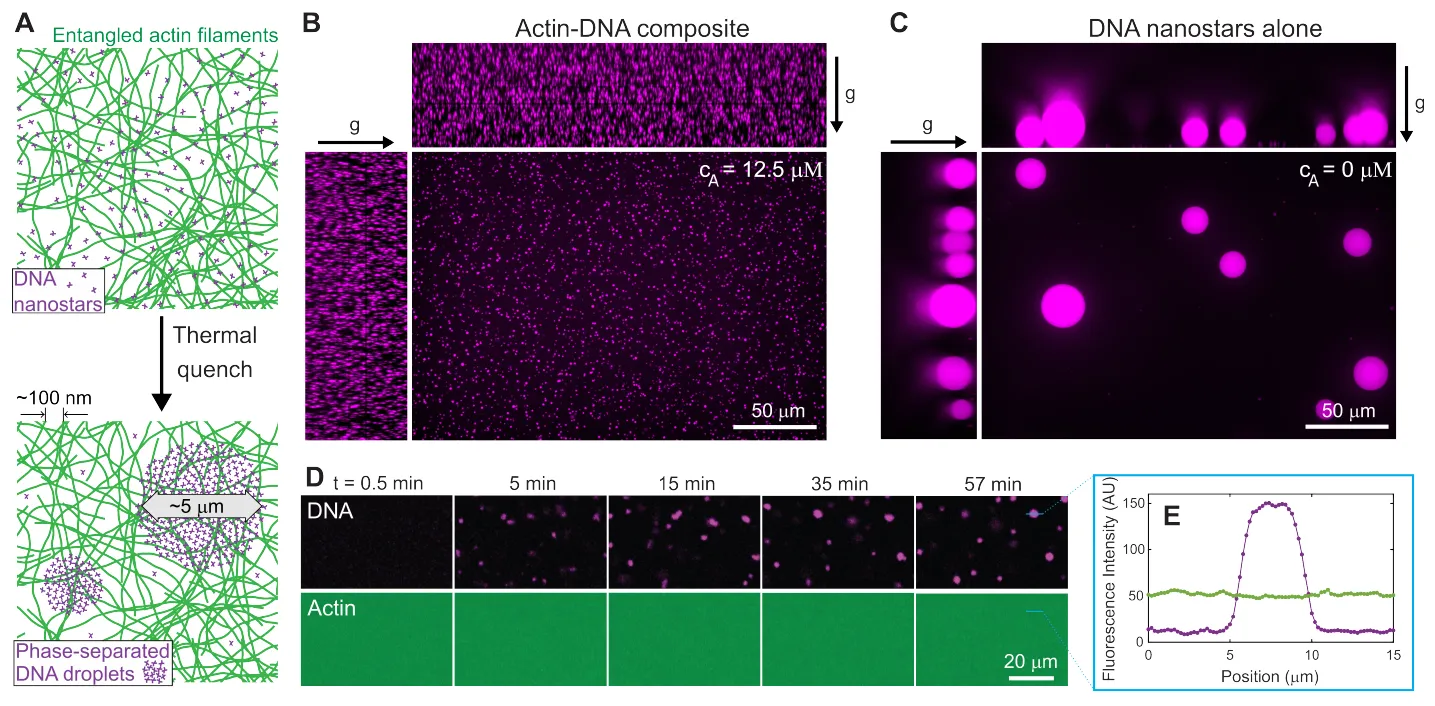
A:冷却前と冷却後のアクチンの網目(緑)とDNAナノスター(紫)。B:アクチンがあると、小さな液滴が試料全体に浮かんだままになる。C:アクチンがないと、液滴は大きく成長して沈む(gは重力の向き)。D–E:アクチンの信号は、液滴をまたいでも一様なままである。— Figure 1, Wilken et al. (2026), arXiv:2610.38504.
ねじって硬さを測る
硬さはレオメーターで測定した。これは、2枚のガラス板のあいだに挟んだ薄い試料の層を、前後にやさしくねじる装置である。2つの数値が得られる。固体のように跳ね返る抵抗の部分である**貯蔵弾性率G′と、液体のように失われる部分である損失弾性率G″**だ。どちらも圧力の単位であるパスカルで表される。ここでは、単位変形あたりに試料をずらすのに必要な応力を意味する。
25%ではなく、25倍
アクチンの網目だけ(20 µM。µMはマイクロモーラーで、濃度の単位)では、貯蔵弾性率は温かいときに約1パスカル、冷たいときにその2倍だった。融点より上で溶けた状態のナノスターを38 µM加えると、これが2倍になった。そして約31 °Cより下で液滴が形成されると、弾性率は跳ね上がり、さらに上がり続けた。研究チームのグラフでは、10 °Cでおよそ100パスカルに達している。
これを液滴のない同じ混合物の弾性率で割ると、最も低い温度で約25という硬化倍率が得られる。液滴が占める体積はわずか約9%だ。この割合では、アインシュタインの法則が許す倍率は最大でも1.225である。さらに、融点をはさんで温度を上下させると、材料はやわらかい状態と硬い状態のあいだを何度でも切り替わる。かかる時間は約10分で、これは液滴が最終的な大きさに達するまでの時間である。
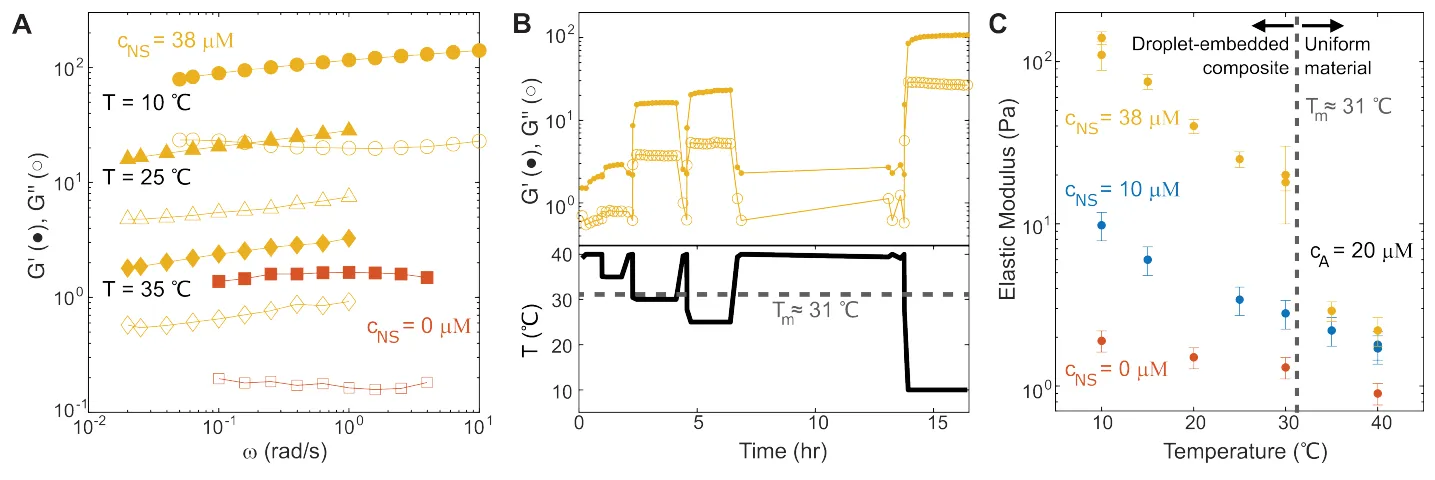
A:周波数に対する貯蔵弾性率(G′、塗りつぶし)と損失弾性率(G″、白抜き)。アクチンのみ(赤)と、ナノスターを加えて3つの温度で測ったもの(黄)。B:温度(下)を融点をはさんで上下させると、硬さ(上)が行き来する。C:温度に対する貯蔵弾性率。ナノスターなし、10 µM、38 µMの場合。— Figure 3, Wilken et al. (2026), arXiv:2610.38504.
つかまれたフィラメント、引きずられる周囲
よくある2つの説明はうまくいかない。DNA液体の表面張力、つまり液滴の表面が引っぱる力は弱すぎる。また、ナノスターがフィラメントどうしを接着しているなら、変形が大きくなるほど材料はさらに硬くなるはずだが、実際はその逆だった。
液滴の内部では、アクチンフィラメントは幅約10ナノメートルの「チューブ」に押し込められている。フィラメント自身の太さ7ナノメートルをわずかに上回るだけで、アクチンだけの場合の約140ナノメートルとは大違いだ。このきつい拘束によって、各液滴とそのフィラメントは1つの硬い塊になる。それでもまだ足りない。体積の9%では、完全に硬い塊でもアインシュタインの限界を超えられない。
鍵はずれの変形(せん断)にある。硬い塊は変形できないので、回転する。内部でつかまれたフィラメントも一緒に回り、その外側の部分が周囲の網目の中を掃くように動いて、網目を引きずっていく。半径2マイクロメートルの液滴は、こうしたフィラメントを約500本保持している。著者らは、引きずられる領域が表面から液滴の半径1つ分だけ外へ広がっていると仮定する。すると、各塊の実効的な半径は2倍になり、実効的な体積は8倍になる。
ナノスターが10 µMのとき、液滴は体積の2.5%を占めるので、拡大した塊は20%を占める。塊どうしは離れたままで、標準的なモデルが予測する硬化倍率は1.8となり、測定値の2.2 ± 0.3に近い。38 µMでは、9%がおよそ70%になる。これは、重なり合う殻が共有するフィラメントで結ばれて連続した網になり、材料を硬く保つしきい値(約30%)をはるかに上回る。ただし硬化には限りがある。網は、各液滴の内部に閉じ込められたアクチン以上には硬くならない。
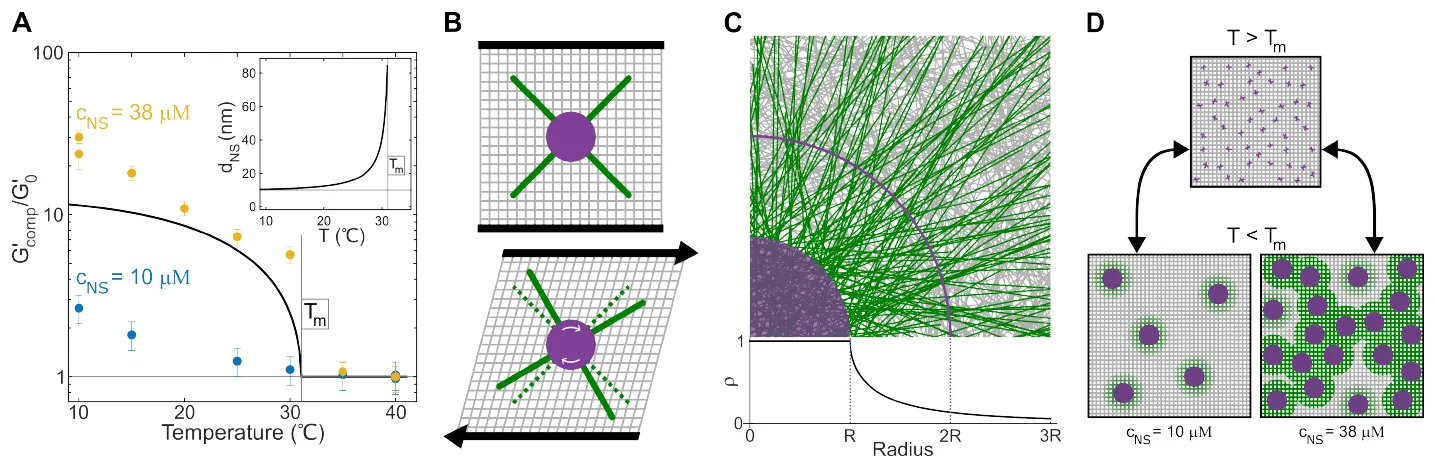
A:温度に対する硬化倍率。線は著者らの閉じ込めにもとづく予測。B:せん断のもとで、液滴(紫)が回転し、それを貫くフィラメント(緑)を引きずる。C:液滴の近くでは、ほとんどのフィラメントが液滴を横切るものである。円弧は半径の2倍の位置を示す。D:融点より下では、引きずられた輪をまとった液滴は、10 µMでは離れたままで、38 µMではつながって網になる。— Figure 4, Wilken et al. (2026), arXiv:2610.38504.
液滴を1つずつ
この描像は、引きずられる領域の厚さがちょうど半径1つ分だという仮定に基づいており、各液滴を単独で扱っている。領域が重なる場所では、2つの液滴に共有されたフィラメントは両方と一緒に回転することができない。モデルはこの応力を考慮していない。網目が決める液滴の大きさが硬化に影響するのか、それとも体積の割合だけが重要なのかは、はっきりしない。また、曲線はナノスター濃度ごとに2つの試料、アクチンのみについては1つの試料から得られたものである。
著者らはこの結びつきを「フィードバックではなく相互的」と呼ぶ。互いに逆向きの、2つの一方通行の影響だという意味だ。凝縮体もフィラメントの網目も広く存在する生物学の世界では、液滴の形成によって力学的な性質を必要に応じて変えられるかもしれない、と著者らは示唆する。いまのところ、この混合物では、網目が液滴の成長する大きさを決め、液滴が網目の押し返す強さを決めている。