几滴DNA液滴,让网络硬了25倍
把刚性颗粒混入软材料,材料就会变硬,变硬的程度与颗粒所占的空间成正比。对于少量颗粒,这条规律以爱因斯坦命名:刚度乘以1 + 5ϕ/2,其中ϕ是颗粒所占的体积分数。颗粒占十分之一体积时,这个因子是1.25——即使颗粒完全刚性,也最多变硬25%。
美因茨约翰内斯·古腾堡大学的Sam Wilken、加州大学圣巴巴拉分校的Omar Saleh及其同事改用了液滴。液滴所占体积不到十分之一,却得到了一种硬了约25倍的材料——而且这种变化是可逆的。
来自肌肉的纤维,由DNA构成的星星
基质是一团肌动蛋白(actin),从兔肌肉粉中纯化得到。它的单元连接成长10到30微米、粗仅7纳米的纤维。这些纤维抗弯曲:衡量这种刚度的持久长度约为17微米,与纤维本身的长度相近。它们相互缠结,形成一张柔软的网络。
液滴由DNA纳米星构成,这是一种四臂粒子,直径约10纳米。它们的臂末端是一段短短的“黏性”单链,能彼此结合。在熔化温度——视配比不同为27到31 °C——以下,纳米星聚集成致密DNA液体构成的液滴;高于这一温度,液滴又会溶解。这就是液–液相分离,这类生物分子液滴被称为凝聚体。肌动蛋白与DNA彼此并不结合。
围绕纤维生长的液滴
研究团队让肌动蛋白在37 °C下组装,然后冷却样品。没有肌动蛋白时,液滴会合并成大液滴并沉底。有肌动蛋白时,它们保持在几微米大小,悬浮在整个样品中。双色成像带来了一个意外:即使在液滴内部,肌动蛋白信号也保持均匀。液滴是围绕着纤维形成的,而不是把纤维推开,因此每个液滴都被肌动蛋白贯穿——持续超过14小时;三天后,肌动蛋白大部分已经离开。
网络还决定了液滴的大小。液滴通过随机晃动、彼此合并而长大;网络像弹簧一样拴住每个液滴,因此一旦附近再没有可够到的邻居,合并就会停止。网络越硬,液滴越小——正如作者的模型所预测——而且它们的尺寸比没有肌动蛋白时更均匀。
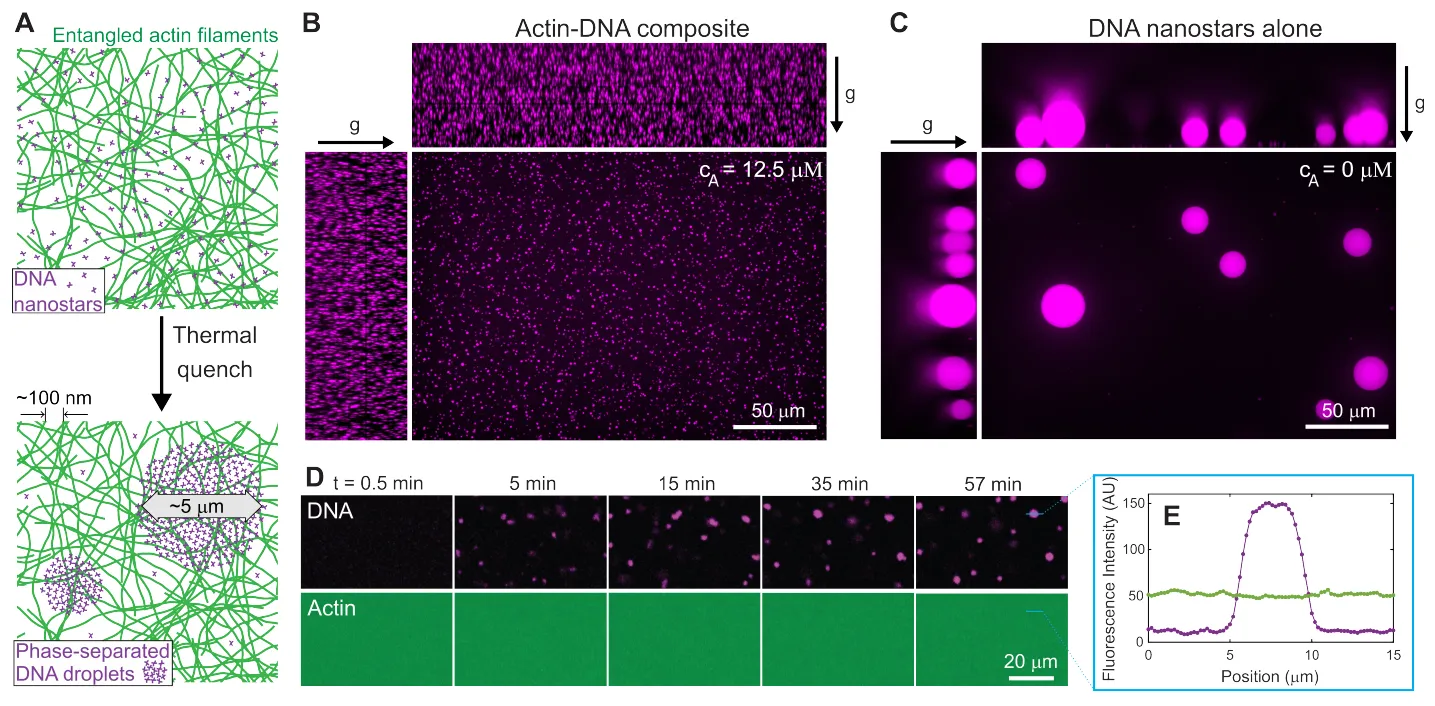
A:冷却前后的肌动蛋白网络(绿色)与DNA纳米星(紫色)。B:有肌动蛋白时,小液滴悬浮在整个样品中。C:没有肌动蛋白时,液滴长大并下沉(g表示重力方向)。D–E:肌动蛋白信号保持均匀,即使穿过液滴也是如此。——图1,Wilken等(2026),arXiv:2610.38504。
用扭转来测量刚度
刚度是用流变仪测量的:它在两块玻璃板之间轻轻地来回扭转一薄层样品。测量给出两个数值:弹性模量G′,即阻力中像固体那样回弹的部分;以及损耗模量G″,即像液体那样耗散掉的部分。两者的单位都是帕斯卡,也就是压强的单位——在这里,它表示每单位形变剪切样品所需的应力。
是二十五倍,不是百分之二十五
单独的肌动蛋白网络在浓度20 µM(微摩尔每升,一种浓度单位)时,温热状态下的弹性模量约为1帕斯卡,冷却后翻倍。加入38 µM的纳米星(在熔点以上处于溶解状态)后,模量再翻一倍。接着,当温度降到约31 °C以下、液滴开始形成时,模量陡然上升并持续增加:在团队的图中,10 °C时约达到100帕斯卡。
用它除以同一混合物在没有液滴时的模量,得到最低温度下约25的硬化因子,而液滴只占约9%的体积。在这一体积分数下,爱因斯坦规律允许的因子最多为1.225。而且,让温度在熔点上下循环,材料就会在软与硬之间反复切换,每次约需10分钟——也就是液滴长到最终大小所需的时间。
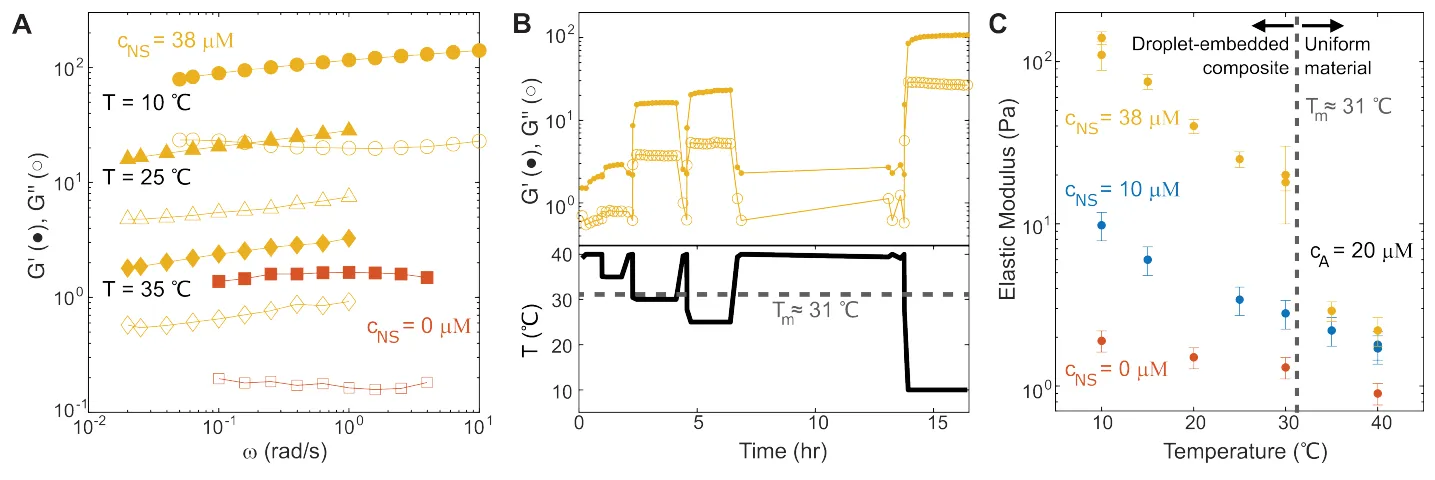
A:弹性模量(G′,实心)和损耗模量(G″,空心)随频率的变化,分别为单独的肌动蛋白(红色)以及加入纳米星后在三种温度下的结果(黄色)。B:当温度(下)在熔点上下循环时,刚度(上)来回切换。C:弹性模量随温度的变化,分别为无纳米星、10 µM和38 µM纳米星。——图3,Wilken等(2026),arXiv:2610.38504。
被夹住的纤维,被拖动的邻居
两种常见的解释都不成立:DNA液体的表面张力(即液滴表面的拉力)太弱了;而如果是纳米星把纤维粘在一起,材料在更大形变下应该会进一步变硬——实际情况恰恰相反。
在液滴内部,肌动蛋白纤维被挤进一根约10纳米宽的“管子”里——只比它们自身的7纳米粗一点——而在单独的肌动蛋白中,这根管子宽约140纳米。这种紧紧的夹持让每个液滴连同其中的纤维变成一个刚性团块。但这仍然不够:在9%的体积分数下,即使是完全刚性的团块也不会超出爱因斯坦极限。
关键在于剪切。刚性团块无法变形,于是它会转动。被夹在其中的纤维随之转动,它们露在外面的部分扫过周围的网络,带着网络一起移动;一个半径2微米的液滴约夹住500根纤维。作者假设被拖动的区域从液滴表面向外延伸一个液滴半径。这使每个团块的有效半径加倍,有效体积乘以8。
纳米星浓度为10 µM时,液滴占2.5%的体积,扩大后的团块就占20%。它们仍彼此分开;标准模型据此预测的硬化因子为1.8,与实测的2.2 ± 0.3相近。浓度为38 µM时,9%变成约70%,远高于约30%的阈值——超过这一阈值,这些相互重叠的外壳就会通过共享的纤维连接成一张连续的网,使材料保持刚性。硬化程度仍是有限的:这张网并不比每个液滴内部受限的肌动蛋白更硬。
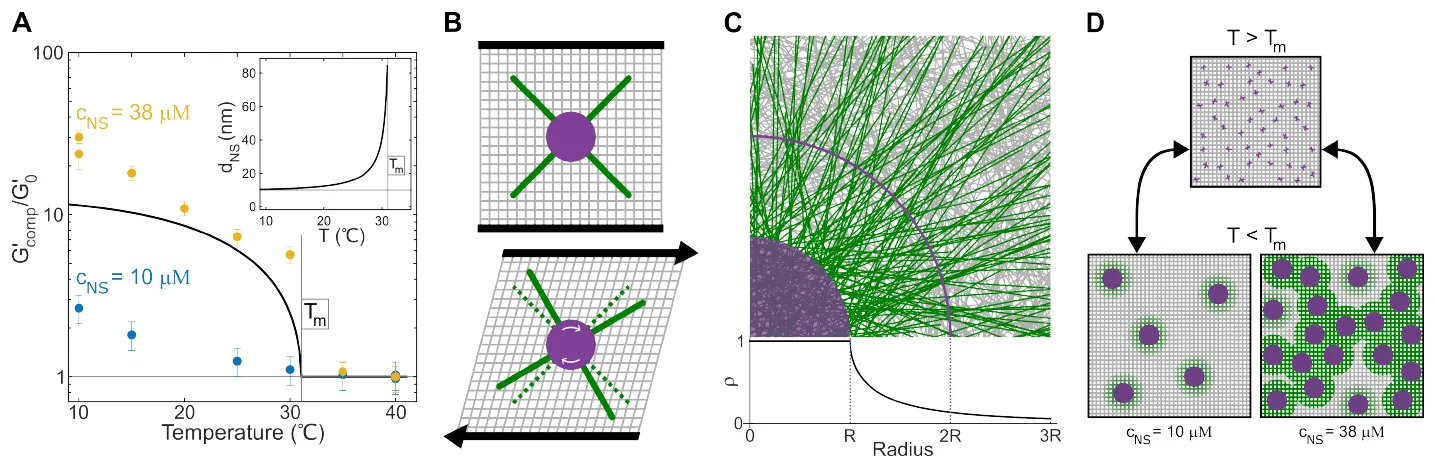
A:硬化因子随温度的变化;曲线为作者基于受限效应的预测。B:在剪切作用下,液滴(紫色)转动并拖动穿过它的纤维(绿色)。C:在液滴附近,大多数纤维都是穿过它的纤维;圆弧标出其半径的两倍。D:在熔点以下,带着被拖动光晕的液滴在10 µM时彼此分开,在38 µM时连成一张网。——图4,Wilken等(2026),arXiv:2610.38504。
一次只看一个液滴
这一图景建立在一个假设之上——被拖动区域的厚度恰好为一个半径——而且把每个液滴单独处理。在区域相互重叠的地方,被两个液滴共享的纤维不可能同时随两者转动,这会产生模型没有考虑的应力。由网络决定的液滴大小是否影响硬化,还是只有体积分数才起作用,目前尚不清楚。此外,每种纳米星浓度的曲线来自两个样品,单独的肌动蛋白则只有一个样品。
作者把这种耦合称为“相互的,而非反馈”:两种单向的影响,指向相反的方向。他们认为,在凝聚体和纤维网络都很普遍的生物体内,液滴的形成或许能按需改变力学性质。至少就目前这种混合物而言,网络决定液滴长多大,液滴决定网络的反抗有多强。