QUELQUES GOUTTELETTES D'ADN, UN RÉSEAU 25 FOIS PLUS RIGIDE
Ajoutez des particules rigides à un matériau mou : il se rigidifie, en proportion de la place qu’elles prennent. Pour de petites quantités, la règle porte le nom d’Einstein : la rigidité est multipliée par 1 + 5ϕ/2, où ϕ est la fraction du volume occupée par les particules. Pour un dixième du volume, cela donne un facteur 1,25 — 25 % de rigidité en plus, au maximum, même avec des particules parfaitement rigides.
Sam Wilken, de l’université Johannes Gutenberg de Mayence, Omar Saleh, de l’université de Californie à Santa Barbara, et leurs collègues ont misé au contraire sur des gouttelettes liquides. Avec moins d’un dixième du volume, ils ont obtenu un matériau environ 25 fois plus rigide — et de façon réversible.
Des filaments de muscle, des étoiles d’ADN
La matrice est un enchevêtrement d’actine, purifiée à partir de poudre de muscle de lapin. Ses unités s’assemblent en filaments de 10 à 30 micromètres de long pour seulement 7 nanomètres d’épaisseur. Ils résistent à la flexion : leur longueur de persistance, qui mesure cette raideur, est d’environ 17 micromètres, proche de leur propre longueur. Enchevêtrés, ils forment un réseau mou.
Les gouttelettes sont faites de nanoétoiles d’ADN, des particules à quatre bras d’environ 10 nanomètres. Leurs bras se terminent par de courts brins « collants » qui s’accrochent les uns aux autres. Sous une température de fusion — de 27 à 31 °C selon le mélange —, les étoiles se rassemblent en gouttelettes d’un liquide d’ADN dense, qui se dissolvent de nouveau au-dessus. C’est une séparation de phase liquide-liquide, et ces gouttelettes de biomolécules s’appellent des condensats. L’actine et l’ADN ne se lient pas l’un à l’autre.
Des gouttelettes qui poussent autour des filaments
L’équipe a laissé l’actine s’assembler à 37 °C, puis a refroidi l’échantillon. Sans actine, les gouttelettes fusionnent en grosses gouttes qui tombent au fond. Avec actine, elles restent larges de quelques micromètres, en suspension dans tout le volume. L’imagerie à deux couleurs a réservé une surprise : le signal de l’actine reste uniforme, même à l’intérieur des gouttelettes. Elles se sont formées autour des filaments au lieu de les écarter, si bien que chacune est traversée d’actine — pendant plus de 14 heures ; trois jours plus tard, l’actine en était presque entièrement sortie.
Le réseau fixe aussi la taille des gouttelettes. Elles grossissent en s’agitant et en fusionnant ; le réseau retient chacune comme au bout d’un ressort, si bien que les fusions s’arrêtent dès qu’aucune voisine n’est à portée. Plus le réseau est rigide, plus les gouttelettes sont petites, comme le prédit le modèle des auteurs — et leurs tailles sont plus uniformes qu’en l’absence d’actine.
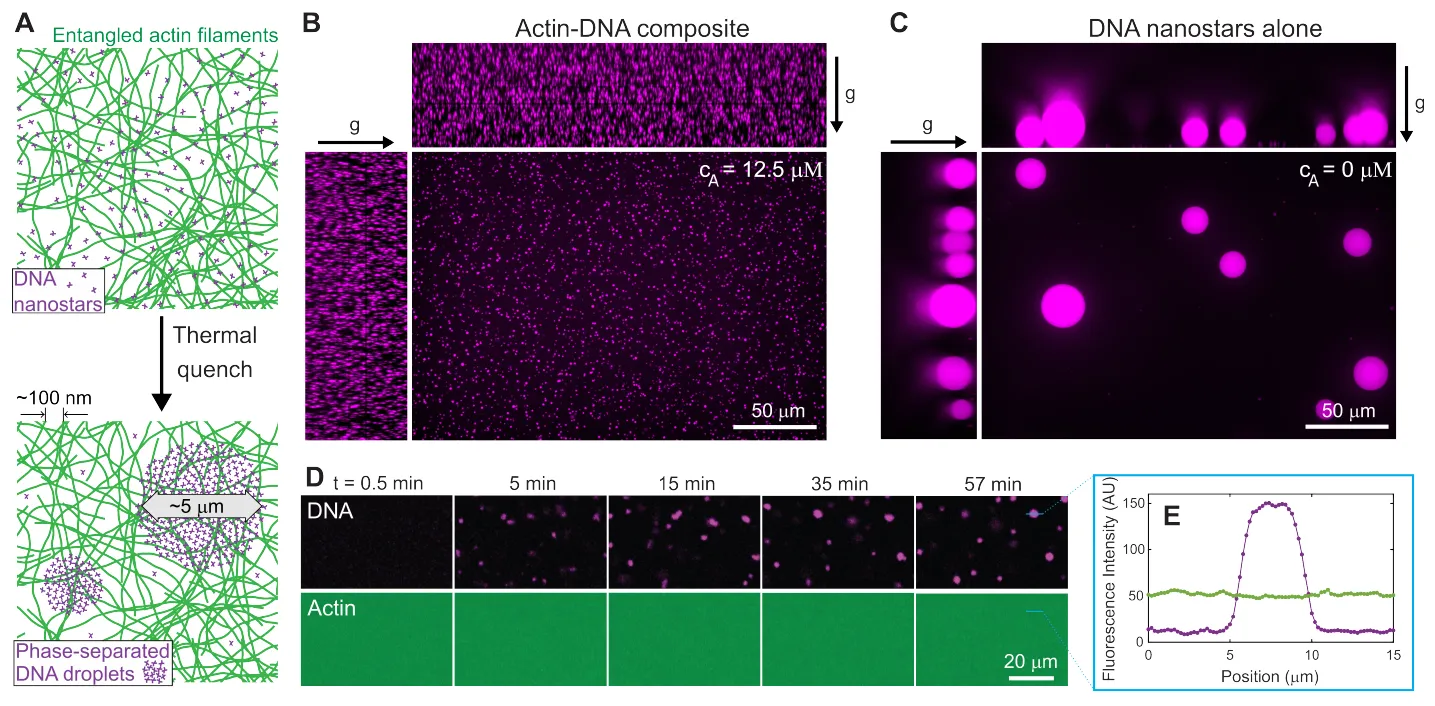
A : le réseau d’actine (vert) et les nanoétoiles d’ADN (violet) avant et après refroidissement. B : avec actine, de petites gouttelettes restent en suspension dans tout l’échantillon. C : sans actine, elles grossissent et tombent (g indique la gravité). D–E : le signal de l’actine reste uniforme, même à travers une gouttelette. — Figure 1, Wilken et al. (2026), arXiv:2610.38504.
Mesurer la rigidité en tordant
La rigidité a été mesurée dans un rhéomètre, qui tord doucement, dans un sens puis dans l’autre, une fine couche d’échantillon placée entre deux plaques de verre. Il en sort deux nombres : le module élastique G′, la part de la résistance qui revient comme un ressort, propre aux solides, et le module de perte G″, la part perdue, comme dans un liquide. Tous deux s’expriment en pascals, l’unité de pression — ici, la contrainte nécessaire pour cisailler l’échantillon, par unité de déformation.
Vingt-cinq fois, pas vingt-cinq pour cent
Le réseau d’actine seul, à 20 µM (micromolaire, une mesure de concentration), avait un module élastique d’environ 1 pascal à chaud, deux fois plus à froid. L’ajout de 38 µM de nanoétoiles, dissoutes au-dessus de la température de fusion, l’a doublé. Puis, quand les gouttelettes se sont formées sous 31 °C environ, le module a bondi et n’a cessé de monter : sur le graphique de l’équipe, il atteint à peu près 100 pascals à 10 °C.
Divisé par le module du même mélange sans gouttelettes, cela donne un facteur de rigidification d’environ 25 aux plus basses températures, alors que les gouttelettes n’occupent qu’environ 9 % du volume. À cette fraction, la règle d’Einstein autorise un facteur de 1,225 au plus. Et en faisant passer la température d’un côté à l’autre du point de fusion, le matériau bascule entre mou et rigide, encore et encore, en une dizaine de minutes — le temps qu’il faut aux gouttelettes pour atteindre leur taille finale.
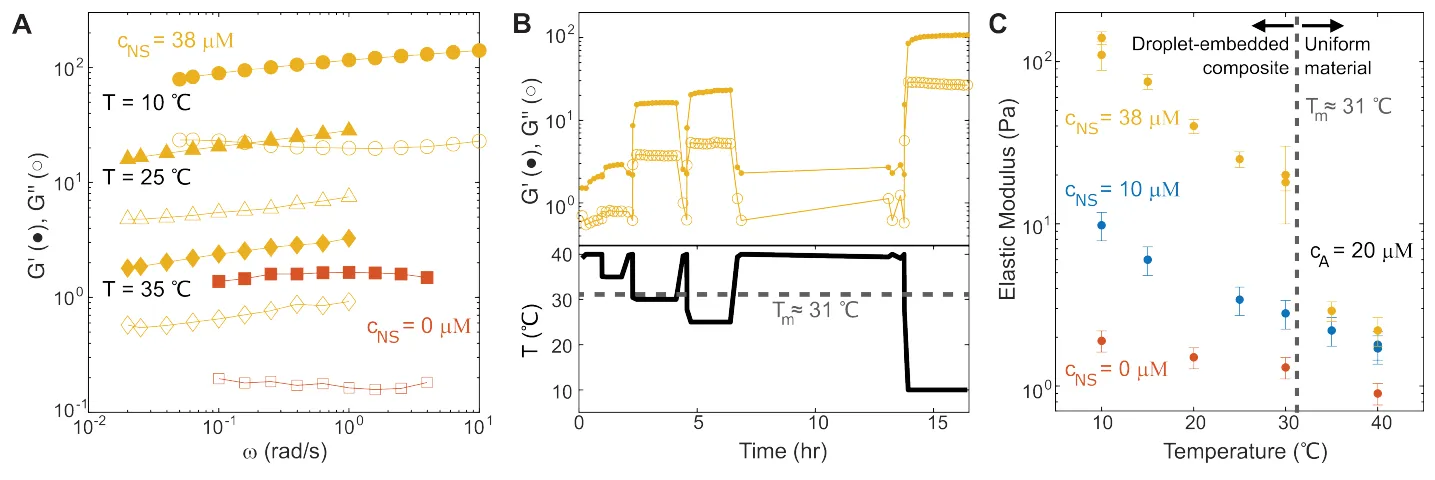
A : modules élastique (G′, symboles pleins) et de perte (G″, symboles vides) en fonction de la fréquence, pour l’actine seule (rouge) et avec nanoétoiles à trois températures (jaune). B : quand la température (en bas) franchit le point de fusion dans un sens puis dans l’autre, la rigidité (en haut) bascule avec elle. C : module élastique en fonction de la température, sans nanoétoiles et avec 10 ou 38 µM. — Figure 3, Wilken et al. (2026), arXiv:2610.38504.
Des filaments serrés qui entraînent leurs voisins
Deux explications habituelles tombent : la tension de surface du liquide d’ADN, la traction exercée par la surface des gouttelettes, est bien trop faible, et des nanoétoiles qui colleraient les filaments entre eux rendraient le matériau de plus en plus rigide sous de grandes déformations — il a fait l’inverse.
Dans une gouttelette, les filaments d’actine sont serrés dans un « tube » d’environ 10 nanomètres de large — à peine plus que leurs propres 7 —, contre environ 140 nanomètres dans l’actine seule, où chaque filament ondule dans l’espace que lui laissent ses voisins. Ce serrage fait de chaque gouttelette et de ses filaments un bloc rigide. Cela ne suffit pas : à 9 % du volume, même des blocs parfaitement rigides restent dans la limite d’Einstein.
La clé est le cisaillement. Cisailler un matériau, c’est à la fois l’étirer et le faire tourner ; un bloc rigide ne peut pas s’étirer, il ne fait donc que tourner. Les filaments serrés à l’intérieur tournent avec lui, et leurs parties extérieures balaient le réseau autour, qu’elles entraînent ; une gouttelette de 2 micromètres de rayon en contient environ 500. Les auteurs supposent que la zone entraînée s’étend sur un rayon de gouttelette au-delà de sa surface. Le rayon effectif de chaque bloc double alors, et son volume effectif est multiplié par 8.
Avec 10 µM de nanoétoiles, les gouttelettes occupent 2,5 % du volume, donc les blocs agrandis en occupent 20 %. Ils restent séparés ; les modèles classiques prédisent alors un facteur de rigidification de 1,8, proche des 2,2 ± 0,3 mesurés. Avec 38 µM, les 9 % deviennent environ 70 %, bien au-delà du seuil — environ 30 % — où de telles coquilles qui se chevauchent se relient en une trame continue, tenue par des filaments partagés, qui rigidifie tout le matériau. La rigidification reste finie : la trame n’est pas plus rigide que l’actine serrée dans chaque gouttelette.
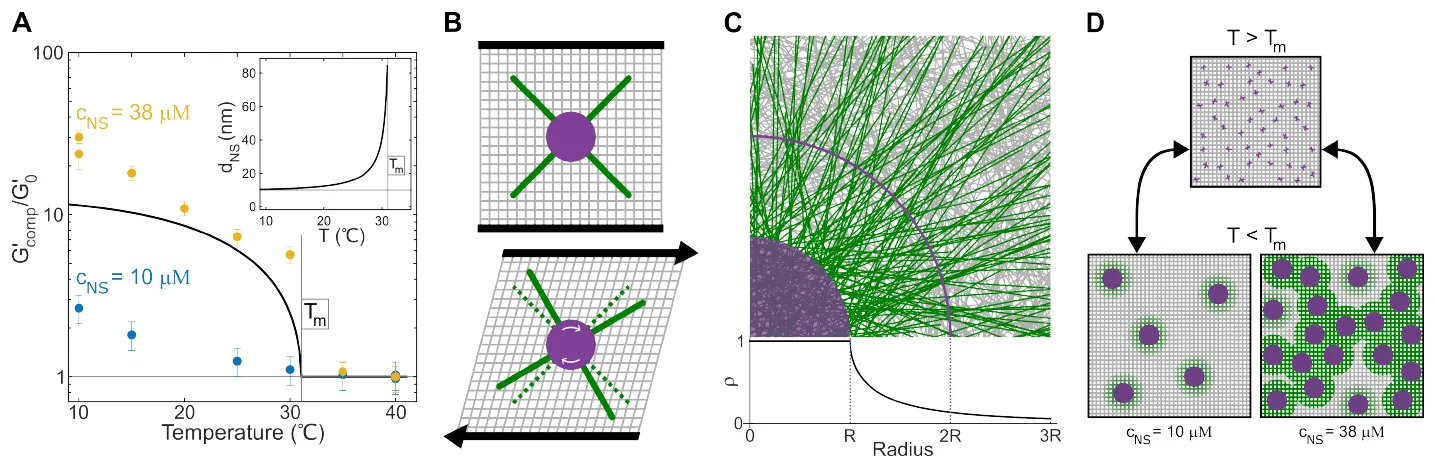
A : facteur de rigidification en fonction de la température ; la courbe est la prédiction des auteurs fondée sur le serrage. B : sous cisaillement, une gouttelette (violet) tourne et entraîne les filaments qui la traversent (vert). C : près d’une gouttelette, la plupart des filaments sont ceux qui la traversent ; l’arc marque deux fois son rayon. D : sous le point de fusion, les gouttelettes et leur halo entraîné restent séparées à 10 µM et se relient en trame à 38 µM. — Figure 4, Wilken et al. (2026), arXiv:2610.38504.
Une gouttelette à la fois
Le tableau repose sur une hypothèse — une zone entraînée épaisse d’exactement un rayon — et traite chaque gouttelette isolément. Là où les zones se chevauchent, des filaments partagés par deux gouttelettes ne peuvent pas tourner avec les deux, une contrainte que le modèle laisse de côté. On ne sait pas encore si la taille des gouttelettes imposée par le réseau compte pour la rigidification, ou seulement la fraction de volume. Et les courbes viennent de deux échantillons par concentration de nanoétoiles, d’un seul pour l’actine seule.
Les auteurs qualifient le couplage de « réciproque, pas de rétroaction » : deux influences à sens unique, dirigées en sens opposés. En biologie, où condensats et réseaux de filaments sont tous deux très répandus, former des gouttelettes pourrait servir à changer la mécanique à la demande, suggèrent-ils. Pour l’instant, dans ce mélange, le réseau décide de la taille des gouttelettes, et les gouttelettes décident de la force avec laquelle le réseau résiste.