EIN PAAR DNA-TRÖPFCHEN, EIN 25-MAL STEIFERES NETZ
Mischt man starre Teilchen in ein weiches Material, wird es steifer, und zwar im Verhältnis zu dem Raum, den sie einnehmen. Für kleine Mengen trägt die Regel Einsteins Namen: Die Steifigkeit wird mit 1 + 5ϕ/2 multipliziert, wobei ϕ der Volumenanteil ist, den die Teilchen ausfüllen. Bei einem Zehntel des Volumens ergibt das einen Faktor von 1,25 – höchstens 25 % steifer, selbst bei vollkommen starren Teilchen.
Sam Wilken von der Johannes Gutenberg-Universität Mainz, Omar Saleh von der University of California, Santa Barbara, und Kollegen verwendeten stattdessen flüssige Tröpfchen. Mit weniger als einem Zehntel des Volumens erhielten sie ein Material, das etwa 25-mal steifer ist – und das umkehrbar.
Filamente aus Muskeln, Sterne aus DNA
Die Matrix ist ein Gewirr aus Aktin, gereinigt aus Kaninchenmuskelpulver. Seine Bausteine verbinden sich zu Filamenten, die 10 bis 30 Mikrometer lang und nur 7 Nanometer dick sind. Sie widersetzen sich dem Biegen: Ihre Persistenzlänge, ein Maß für diese Steifigkeit, beträgt etwa 17 Mikrometer, nahe an ihrer eigenen Länge. Ineinander verschlungen bilden sie ein weiches Netz.
Die Tröpfchen bestehen aus DNA-Nanosternen, vierarmigen Teilchen von etwa 10 Nanometern Durchmesser. Ihre Arme enden in kurzen „klebrigen“ Strängen, die aneinander binden. Unterhalb einer Schmelztemperatur – je nach Mischung 27 bis 31 °C – sammeln sich die Sterne zu Tröpfchen einer dichten DNA-Flüssigkeit, die sich oberhalb davon wieder auflösen. Das ist Flüssig-flüssig-Phasentrennung, und solche biomolekularen Tröpfchen heißen Kondensate. Aktin und DNA binden nicht aneinander.
Tröpfchen, die um die Filamente herum wachsen
Das Team ließ das Aktin bei 37 °C polymerisieren und kühlte die Probe dann ab. Ohne Aktin verschmolzen die Tröpfchen zu großen Tropfen, die absanken. Mit Aktin blieben sie wenige Mikrometer groß und überall in der Probe in der Schwebe. Die Zweifarbenbildgebung hielt eine Überraschung bereit: Das Aktinsignal blieb selbst in ihrem Inneren gleichmäßig. Die Tröpfchen hatten sich um die Filamente herum gebildet, statt sie beiseitezuschieben, sodass jedes von Aktin durchzogen ist – über mehr als 14 Stunden; drei Tage später hatte das Aktin sie größtenteils verlassen.
Das Netz bestimmt auch die Größe der Tröpfchen. Tröpfchen wachsen, indem sie umherzittern und verschmelzen; das Netz hält jedes wie an einer Feder fest, sodass das Verschmelzen aufhört, sobald kein Nachbar mehr in Reichweite ist. Je steifer das Netz, desto kleiner die Tröpfchen, wie das Modell der Autoren vorhersagt – und ihre Größen sind einheitlicher als ohne Aktin.
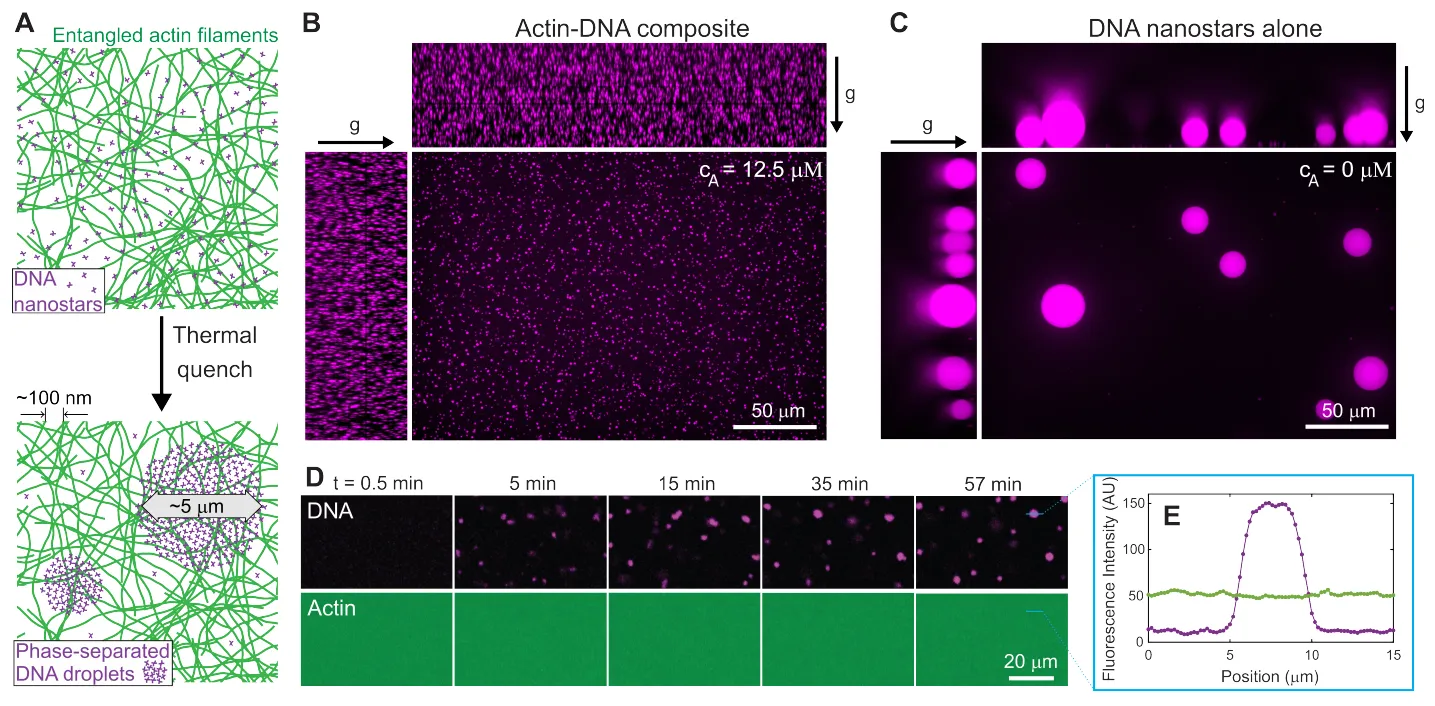
A: das Aktinnetz (grün) und die DNA-Nanosterne (violett) vor und nach dem Abkühlen. B: Mit Aktin bleiben kleine Tröpfchen überall in der Probe in der Schwebe. C: Ohne Aktin werden sie groß und sinken ab (g bezeichnet die Schwerkraft). D–E: Das Aktinsignal bleibt gleichmäßig, selbst quer durch ein Tröpfchen. — Abbildung 1, Wilken et al. (2026), arXiv:2610.38504.
Steifigkeit messen durch Verdrehen
Die Steifigkeit wurde in einem Rheometer gemessen, das eine dünne Probenschicht zwischen zwei Glasplatten sanft hin und her verdreht. Heraus kommen zwei Zahlen: der Speichermodul G′, der Anteil des Widerstands, der wie bei einem Festkörper zurückfedert, und der Verlustmodul G″, der Anteil, der wie bei einer Flüssigkeit verloren geht. Beide werden in Pascal angegeben, der Einheit des Drucks – hier die Spannung, die nötig ist, um die Probe pro Einheit Verformung zu scheren.
Fünfundzwanzigmal, nicht fünfundzwanzig Prozent
Das Aktinnetz allein hatte bei 20 µM (mikromolar, ein Maß für die Konzentration) im warmen Zustand einen Speichermodul von etwa 1 Pascal, im kalten das Doppelte. Die Zugabe von 38 µM Nanosternen, oberhalb des Schmelzpunkts gelöst, verdoppelte ihn. Als sich dann unterhalb von etwa 31 °C Tröpfchen bildeten, sprang der Modul nach oben und stieg weiter: Im Diagramm des Teams erreicht er bei 10 °C rund 100 Pascal.
Geteilt durch den Modul derselben Mischung ohne Tröpfchen ergibt das bei den tiefsten Temperaturen einen Versteifungsfaktor von etwa 25, wobei die Tröpfchen nur etwa 9 % des Volumens füllen. Bei diesem Anteil erlaubt Einsteins Regel höchstens einen Faktor von 1,225. Und wird die Temperatur wiederholt über den Schmelzpunkt hinweg geführt, schaltet das Material immer wieder zwischen weich und steif um, in etwa 10 Minuten – der Zeit, die die Tröpfchen brauchen, um ihre endgültige Größe zu erreichen.
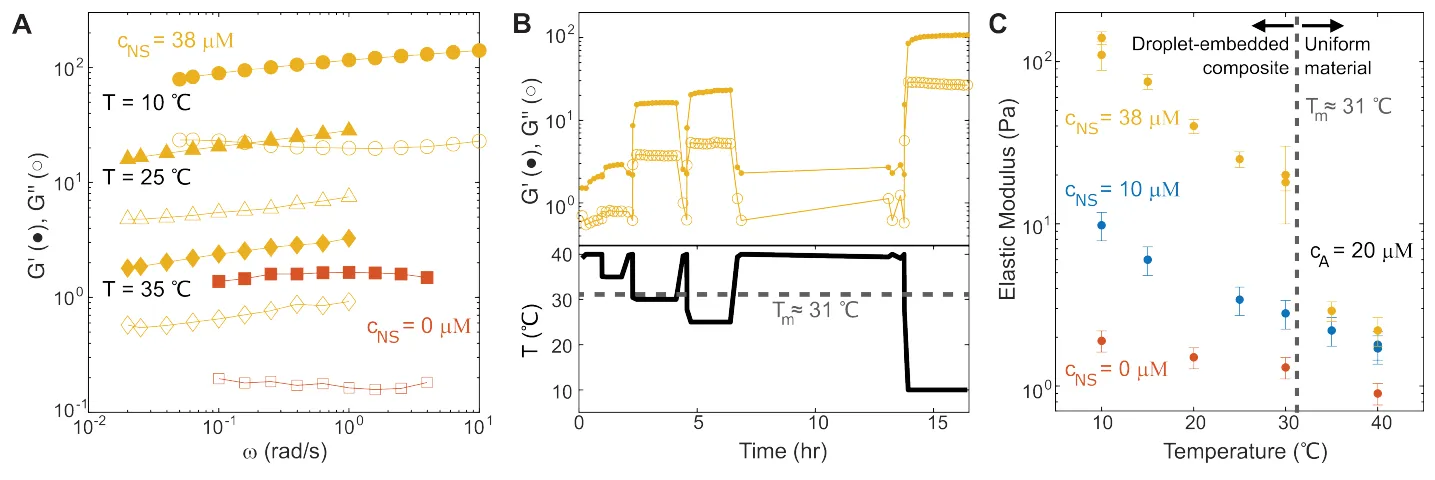
A: Speichermodul (G′, gefüllt) und Verlustmodul (G″, offen) gegen die Frequenz, für Aktin allein (rot) und mit Nanosternen bei drei Temperaturen (gelb). B: Wird die Temperatur (unten) wiederholt über den Schmelzpunkt geführt, schaltet die Steifigkeit (oben) hin und her. C: Speichermodul gegen Temperatur, ohne Nanosterne und mit 10 oder 38 µM. — Abbildung 3, Wilken et al. (2026), arXiv:2610.38504.
Festgehaltene Filamente, mitgezogene Nachbarn
Zwei übliche Erklärungen versagen: Die Oberflächenspannung der DNA-Flüssigkeit, der Zug der Tröpfchenoberfläche, ist viel zu schwach, und Nanosterne, die Filamente miteinander verkleben, würden das Material bei größeren Verformungen noch steifer machen – es geschah das Gegenteil.
In einem Tröpfchen werden Aktinfilamente in eine „Röhre“ von etwa 10 Nanometern Breite gezwängt – kaum mehr als ihre eigenen 7 –, gegenüber etwa 140 Nanometern in Aktin allein. Dieser enge Griff macht jedes Tröpfchen samt seinen Filamenten zu einem starren Klumpen. Das reicht noch nicht: Bei 9 % des Volumens bleiben selbst vollkommen starre Klumpen innerhalb von Einsteins Grenze.
Der Schlüssel ist die Scherung. Ein starrer Klumpen kann sich nicht verformen, also dreht er sich. Die darin festgehaltenen Filamente drehen sich mit, und ihre äußeren Abschnitte fegen durch das umgebende Netz und ziehen es mit; ein Tröpfchen mit 2 Mikrometern Radius hält etwa 500 davon fest. Die Autoren nehmen an, dass sich die mitgezogene Zone einen Tröpfchenradius über die Oberfläche hinaus erstreckt. Das verdoppelt den effektiven Radius jedes Klumpens und verachtfacht sein effektives Volumen.
Mit 10 µM Nanosternen füllen die Tröpfchen 2,5 % des Volumens, die vergrößerten Klumpen also 20 %. Sie bleiben voneinander getrennt; Standardmodelle sagen dann einen Versteifungsfaktor von 1,8 voraus, nahe an den gemessenen 2,2 ± 0,3. Mit 38 µM werden aus 9 % etwa 70 %, weit über der Schwelle – etwa 30 % –, ab der sich solche überlappenden Hüllen zu einem zusammenhängenden Netz verbinden, verknüpft durch gemeinsame Filamente, das das Material starr hält. Die Versteifung bleibt endlich: Das Netz ist nicht steifer als das eingeengte Aktin in jedem Tröpfchen.
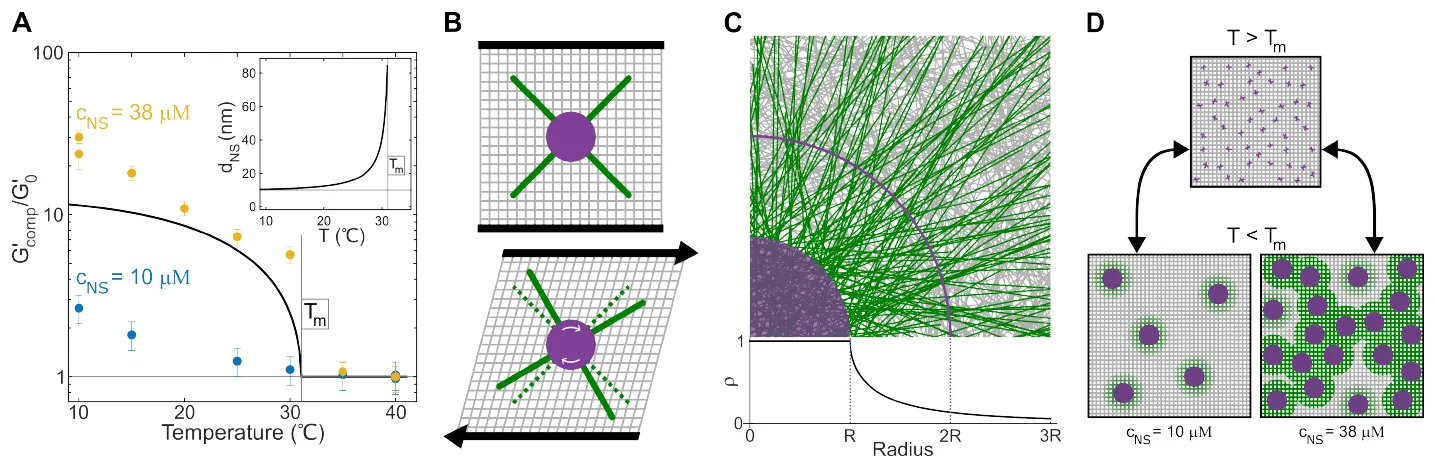
A: Versteifungsfaktor gegen Temperatur; die Linie ist die Vorhersage der Autoren auf Grundlage der Einengung. B: Unter Scherung dreht sich ein Tröpfchen (violett) und zieht die Filamente mit, die es durchziehen (grün). C: In der Nähe eines Tröpfchens sind die meisten Filamente solche, die es durchqueren; der Bogen markiert seinen doppelten Radius. D: Unterhalb des Schmelzpunkts bleiben die Tröpfchen mit ihrem mitgezogenen Hof bei 10 µM getrennt und verbinden sich bei 38 µM zu einem Netz. — Abbildung 4, Wilken et al. (2026), arXiv:2610.38504.
Ein Tröpfchen nach dem anderen
Das Bild beruht auf einer Annahme – einer mitgezogenen Zone von genau einem Radius Dicke – und behandelt jedes Tröpfchen für sich. Wo sich Zonen überlappen, können Filamente, die zwei Tröpfchen gemeinsam haben, sich nicht mit beiden drehen, eine Spannung, die das Modell außer Acht lässt. Ob die vom Netz bestimmte Tröpfchengröße für die Versteifung eine Rolle spielt oder nur der Volumenanteil, ist unklar. Und die Kurven stammen aus zwei Proben pro Nanosternkonzentration, einer für Aktin allein.
Die Autoren nennen die Kopplung „wechselseitig, keine Rückkopplung“: zwei Einflüsse in jeweils eine Richtung, die in entgegengesetzte Richtungen weisen. In der Biologie, wo Kondensate und Filamentnetze beide weit verbreitet sind, könnte die Bildung von Tröpfchen die Mechanik bei Bedarf verändern, vermuten sie. Vorerst entscheidet in dieser Mischung das Netz, wie groß die Tröpfchen werden, und die Tröpfchen entscheiden, wie stark das Netz Widerstand leistet.