DNA चे काही थेंब, 25 पट अधिक ताठ जाळे
मऊ पदार्थात कडक कण मिसळा आणि तो ताठ होतो, ते कण व्यापत असलेल्या जागेच्या प्रमाणात. कमी प्रमाणासाठी या नियमाला Einstein चे नाव आहे: ताठपणा 1 + 5ϕ/2 ने गुणला जातो, जिथे ϕ म्हणजे कणांनी व्यापलेला आकारमानाचा अंश. आकारमानाचा दहावा भाग असेल, तर हा गुणक 1.25 येतो — पूर्णपणे कडक कणांसाठीसुद्धा जास्तीत जास्त 25% अधिक ताठ.
Johannes Gutenberg University Mainz येथील Sam Wilken, University of California, Santa Barbara येथील Omar Saleh आणि त्यांच्या सहकाऱ्यांनी त्याऐवजी द्रव थेंब वापरले. आकारमानाच्या दहाव्या भागापेक्षा कमी जागा व्यापूनही, त्यांनी सुमारे 25 पट अधिक ताठ पदार्थ बनवला — आणि तोही उलटवता येण्याजोगा.
स्नायूंमधील तंतू, DNA चे तारे
आधारद्रव्य (matrix) हा सशाच्या स्नायूंच्या भुकटीतून शुद्ध केलेल्या ॲक्टिनचा (actin) गुंता आहे. त्याची एकके जोडली जाऊन 10 ते 30 मायक्रोमीटर लांब आणि फक्त 7 नॅनोमीटर जाड तंतू बनतात. ते वाकण्याला विरोध करतात: त्यांची चिकाटी-लांबी (persistence length), म्हणजे त्या ताठपणाचे एक माप, सुमारे 17 मायक्रोमीटर आहे, त्यांच्या स्वतःच्या लांबीच्या जवळपास. एकमेकांत गुंतल्यावर ते एक मऊ जाळे तयार करतात.
थेंब DNA च्या नॅनोताऱ्यांपासून (nanostars) बनलेले आहेत; हे सुमारे 10 नॅनोमीटर रुंद, चार भुजा असलेले कण आहेत. त्यांच्या भुजांच्या टोकांना छोटे “चिकट” धागे असतात, जे एकमेकांना बांधले जातात. वितळण-तापमानाखाली — मिश्रणानुसार 27 ते 31 °C — हे तारे एकत्र येऊन दाट DNA द्रवाचे थेंब बनवतात, जे त्या तापमानाच्या वर पुन्हा विरघळतात. याला द्रव–द्रव प्रावस्था-विलगन (liquid–liquid phase separation) म्हणतात, आणि अशा जैवरेणवीय थेंबांना संघनित (condensates) म्हणतात. ॲक्टिन आणि DNA एकमेकांना बांधले जात नाहीत.
तंतूंभोवती वाढणारे थेंब
संघाने ॲक्टिनची जुळणी 37 °C वर होऊ दिली, मग नमुना थंड केला. ॲक्टिनशिवाय थेंब एकत्र मिसळून मोठे थेंब बनले आणि तळाशी बसले. ॲक्टिनसोबत ते काही मायक्रोमीटर रुंदच राहिले, सर्वत्र तरंगत. दोन रंगांतील प्रतिमांनी एक आश्चर्य दाखवले: ॲक्टिनचा संकेत त्यांच्या आतसुद्धा एकसमान राहिला. थेंबांनी तंतूंना बाजूला न सारता त्यांच्या भोवती आकार घेतला होता, त्यामुळे प्रत्येक थेंबातून ॲक्टिन ओवलेले असते — 14 तासांहून अधिक काळ; तीन दिवसांनंतर ॲक्टिन बहुतांशी बाहेर पडले होते.
थेंबांचा आकारही जाळेच ठरवते. थेंब इकडेतिकडे हलत आणि एकमेकांत मिसळत वाढतात; जाळे प्रत्येक थेंबाला जणू स्प्रिंगला बांधल्यासारखे धरून ठेवते, त्यामुळे आवाक्यात कोणताही शेजारी उरला नाही की मिसळणे थांबते. जाळे जितके ताठ, तितके थेंब लहान, जसे लेखकांचे प्रतिमान भाकीत करते — आणि त्यांचे आकार ॲक्टिन नसतानापेक्षा अधिक एकसारखे असतात.
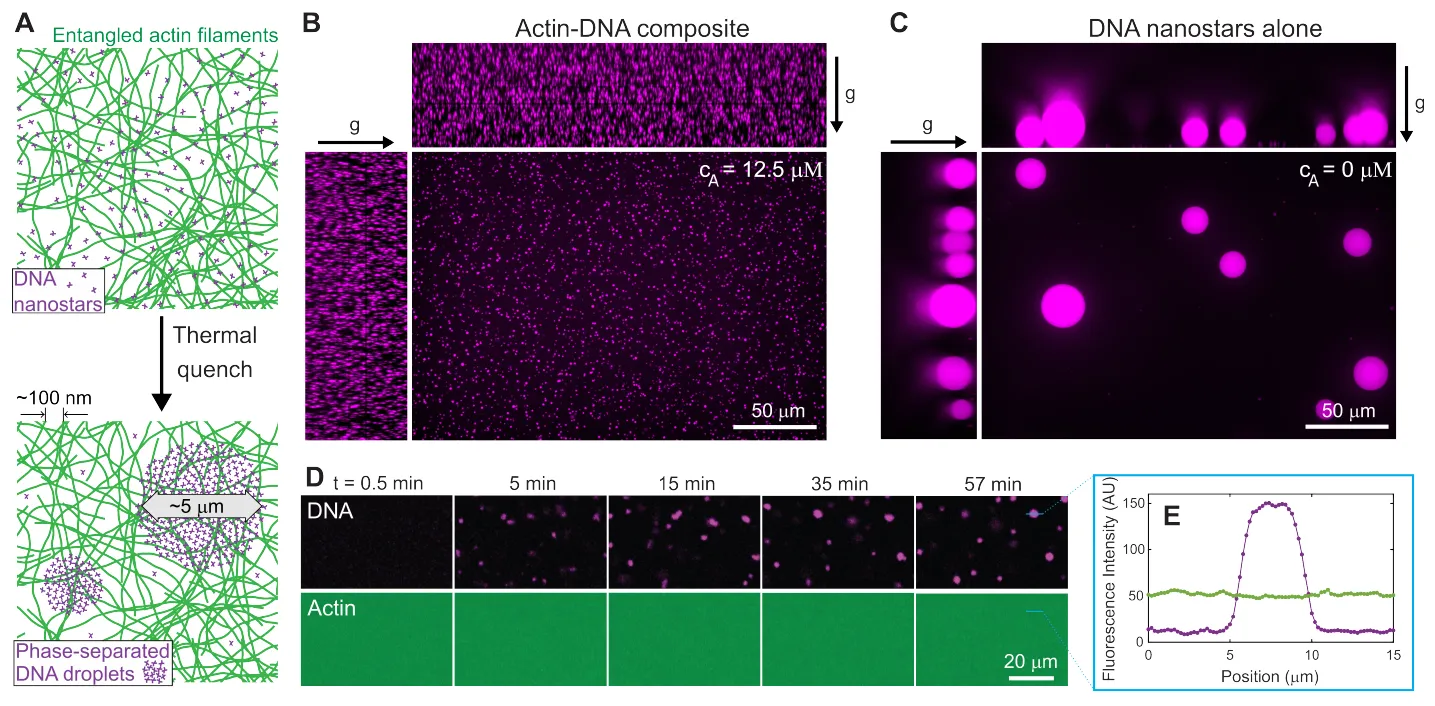
A: थंड करण्यापूर्वी आणि नंतर ॲक्टिनचे जाळे (हिरवे) आणि DNA नॅनोतारे (जांभळे). B: ॲक्टिनसोबत, लहान थेंब संपूर्ण नमुन्यात तरंगत राहतात. C: ॲक्टिनशिवाय, ते मोठे होतात आणि तळाशी बसतात (g गुरुत्व दर्शवते). D–E: ॲक्टिनचा संकेत एकसमान राहतो, थेंबाच्या आरपारसुद्धा. — आकृती 1, Wilken et al. (2026), arXiv:2610.38504.
पिळून ताठपणा मोजणे
ताठपणा एका रिओमीटरमध्ये (rheometer) मोजला गेला; हे उपकरण दोन काचेच्या पट्ट्यांमधील नमुन्याचा पातळ थर हळुवारपणे पुढेमागे पिळते. त्यातून दोन संख्या मिळतात: प्रत्यास्थ मापांक G′ (elastic modulus), म्हणजे विरोधाचा तो भाग जो घन पदार्थासारखा परत उसळतो, आणि क्षय मापांक G″ (loss modulus), म्हणजे द्रवासारखा गमावला जाणारा भाग. दोन्ही पास्कलमध्ये, म्हणजे दाबाच्या एककात मोजले जातात — इथे, विरूपणाच्या प्रति एककाला नमुन्यावर कातर-बल लावण्यासाठी लागणारा ताण.
पंचवीस पट, पंचवीस टक्के नव्हे
फक्त ॲक्टिनचे जाळे, 20 µM (मायक्रोमोलर, संहतीचे एक माप) वर, गरम असताना त्याचा प्रत्यास्थ मापांक सुमारे 1 पास्कल होता, थंड असताना त्याच्या दुप्पट. वितळण-बिंदूच्या वर विरघळलेले 38 µM नॅनोतारे घातल्यावर तो दुप्पट झाला. मग, सुमारे 31 °C खाली थेंब तयार होऊ लागताच मापांकाने उडी घेतली आणि तो वाढतच गेला: संघाच्या आलेखावर, 10 °C ला तो साधारण 100 पास्कलपर्यंत पोहोचतो.
थेंब नसलेल्या त्याच मिश्रणाच्या मापांकाने भागल्यावर, यातून सर्वात कमी तापमानांना सुमारे 25 चा ताठपणा-गुणक मिळतो, आणि थेंबांनी आकारमानाचा फक्त सुमारे 9% भाग व्यापलेला असतो. त्या अंशाला Einstein चा नियम जास्तीत जास्त 1.225 चा गुणक देतो. आणि तापमान वितळण-बिंदूच्या आरपार पुढेमागे फिरवल्यास पदार्थ मऊ आणि ताठ यांच्यात पुन्हा पुन्हा बदलतो, सुमारे 10 मिनिटांत — थेंबांना त्यांचा अंतिम आकार गाठायला लागणारा वेळ.
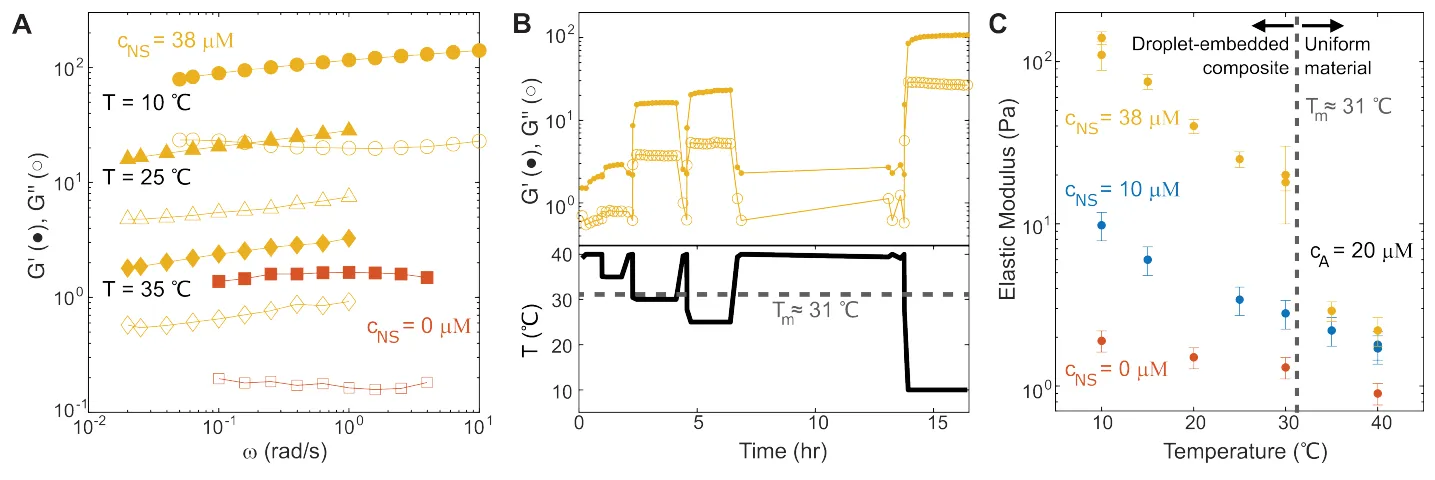
A: वारंवारतेनुसार प्रत्यास्थ (G′, भरलेली चिन्हे) आणि क्षय (G″, पोकळ चिन्हे) मापांक, फक्त ॲक्टिनसाठी (लाल) आणि तीन तापमानांना नॅनोताऱ्यांसह (पिवळे). B: तापमान (खाली) वितळण-बिंदूच्या आरपार फिरवले असता, ताठपणा (वर) पुढेमागे बदलतो. C: तापमानानुसार प्रत्यास्थ मापांक, नॅनोताऱ्यांशिवाय आणि 10 किंवा 38 µM सह. — आकृती 3, Wilken et al. (2026), arXiv:2610.38504.
पकडलेले तंतू, ओढले जाणारे शेजारी
दोन नेहमीची स्पष्टीकरणे अपुरी पडतात: DNA द्रवाचा पृष्ठताण, म्हणजे थेंबांच्या पृष्ठभागाचे खेचणे, खूपच दुर्बल आहे, आणि नॅनोताऱ्यांनी तंतू एकमेकांना चिकटवले असते तर मोठ्या विरूपणाखाली पदार्थ आणखी ताठ झाला असता — प्रत्यक्षात उलटे घडले.
थेंबाच्या आत ॲक्टिनचे तंतू सुमारे 10 नॅनोमीटर रुंद “नळीत” दाबले जातात — त्यांच्या स्वतःच्या 7 पेक्षा जेमतेम अधिक — तर फक्त ॲक्टिनमध्ये ही नळी सुमारे 140 नॅनोमीटर असते. ही घट्ट पकड प्रत्येक थेंबाला आणि त्याच्या तंतूंना एका कडक गोळ्यात बदलते. तरीही ते पुरेसे नाही: आकारमानाच्या 9% वर, पूर्णपणे कडक गोळेसुद्धा Einstein च्या मर्यादेतच राहतात.
कळीचा मुद्दा कातर-बल आहे. कडक गोळा विरूपित होऊ शकत नाही, म्हणून तो फिरतो. आत पकडलेले तंतू त्याच्यासोबत वळतात, आणि त्यांचे बाहेरचे भाग सभोवतालच्या जाळ्यातून फिरत त्याला सोबत ओढतात; 2 मायक्रोमीटर त्रिज्येचा थेंब असे सुमारे 500 तंतू धरून ठेवतो. लेखक असे गृहीत धरतात की ओढला जाणारा प्रदेश पृष्ठभागापलीकडे एका थेंब-त्रिज्येइतका पसरतो. त्यामुळे प्रत्येक गोळ्याची परिणामी त्रिज्या दुप्पट होते आणि त्याचे परिणामी आकारमान 8 ने गुणले जाते.
10 µM नॅनोताऱ्यांसह थेंब आकारमानाचा 2.5% भाग व्यापतात, म्हणून मोठे झालेले गोळे 20% व्यापतात. ते वेगवेगळे राहतात; मग प्रमाणित प्रतिमाने 1.8 चा ताठपणा-गुणक भाकीत करतात, जो मोजलेल्या 2.2 ± 0.3 च्या जवळ आहे. 38 µM सह, 9% चे सुमारे 70% होतात, जे सुमारे 30% च्या उंबरठ्याच्या खूप वर आहे — या उंबरठ्यावर असे एकमेकांवर येणारे कवच सामायिक तंतूंनी जोडलेल्या एका सलग जाळ्यात गुंफले जातात, जे पदार्थाला कडक ठेवते. ताठपणा मर्यादितच राहतो: हे जाळे प्रत्येक थेंबाच्या आत बंदिस्त असलेल्या ॲक्टिनपेक्षा अधिक ताठ नसते.
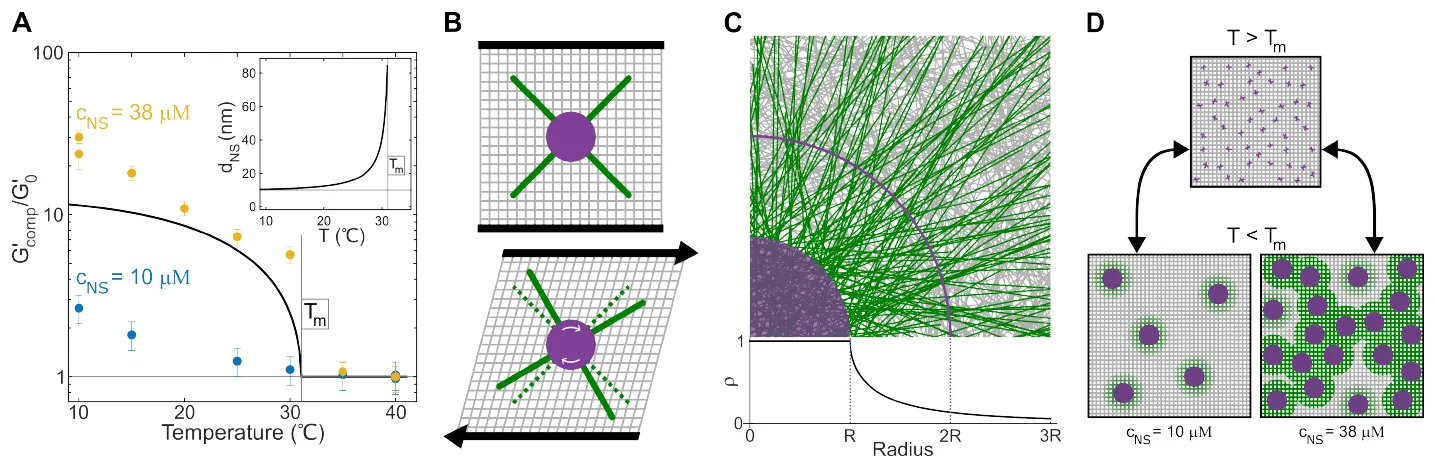
A: तापमानानुसार ताठपणा-गुणक; रेषा म्हणजे लेखकांचे बंदिस्ततेवर आधारित भाकीत. B: कातर-बलाखाली थेंब (जांभळा) फिरतो आणि त्याला ओवणाऱ्या तंतूंना (हिरवे) ओढतो. C: थेंबाजवळचे बहुतेक तंतू त्याला छेदणारे असतात; कंस त्याच्या त्रिज्येच्या दुपटीचे अंतर दर्शवतो. D: वितळण-बिंदूखाली, ओढल्या जाणाऱ्या वलयासह थेंब 10 µM वर वेगळे राहतात आणि 38 µM वर एका जाळ्यात जोडले जातात. — आकृती 4, Wilken et al. (2026), arXiv:2610.38504.
एका वेळी एक थेंब
हे चित्र एका गृहीतकावर उभे आहे — ओढला जाणारा प्रदेश नेमका एका त्रिज्येइतका जाड — आणि प्रत्येक थेंबाचा एकट्याने विचार करते. जिथे प्रदेश एकमेकांवर येतात, तिथे दोन थेंबांनी सामायिक केलेले तंतू दोघांसोबत वळू शकत नाहीत; हा ताण प्रतिमान विचारात घेत नाही. जाळ्याने ठरवलेला थेंबांचा आकार ताठपणासाठी महत्त्वाचा आहे की फक्त आकारमान-अंश, हे स्पष्ट नाही. आणि हे वक्र प्रत्येक नॅनोतारा-संहतीसाठी दोन नमुन्यांवरून, आणि फक्त ॲक्टिनसाठी एका नमुन्यावरून आले आहेत.
लेखक या जोडणीला “परस्पर, अभिप्राय नव्हे” (reciprocal, not feedback) म्हणतात: विरुद्ध दिशांना निर्देश करणारे दोन एकदिशी प्रभाव. जीवशास्त्रात, जिथे संघनित आणि तंतूंची जाळी दोन्ही सर्वत्र आढळतात, तिथे थेंब तयार होणे गरजेनुसार यांत्रिक गुणधर्म बदलू शकेल, असे ते सुचवतात. सध्या तरी, या मिश्रणात, थेंब किती मोठे होतील हे जाळे ठरवते, आणि जाळे किती जोराने प्रतिकार करेल हे थेंब ठरवतात.