சில DNA துளிகள், 25 மடங்கு விறைப்பான ஒரு வலை
ஒரு மென்மையான பொருளில் கடினமான துகள்களைக் கலந்தால், அவை பிடிக்கும் இடத்துக்கு ஏற்ற விகிதத்தில் அது விறைப்பாகிறது. சிறிய அளவுகளுக்கு இந்த விதி ஐன்ஸ்டைனின் பெயரைத் தாங்குகிறது: விறைப்பு 1 + 5ϕ/2 ஆல் பெருக்கப்படுகிறது; இங்கு ϕ என்பது துகள்கள் நிரப்பும் கனஅளவின் பின்னம். கனஅளவில் பத்தில் ஒரு பங்கு என்றால், இது 1.25 என்ற பெருக்கக் காரணி — துகள்கள் முழுமையாகக் கடினமானவையாக இருந்தாலும் அதிகபட்சம் 25% கூடுதல் விறைப்பு.
மைன்ஸ் யோஹானஸ் குட்டன்பர்க் பல்கலைக்கழகத்தின் (Johannes Gutenberg University Mainz) Sam Wilken, கலிபோர்னியா பல்கலைக்கழகம் சாண்டா பார்பராவின் Omar Saleh மற்றும் சக ஆய்வாளர்கள் அதற்குப் பதிலாகத் திரவத் துளிகளைப் பயன்படுத்தினர். கனஅளவில் பத்தில் ஒரு பங்குக்கும் குறைவாக நிரப்பி, அவர்கள் சுமார் 25 மடங்கு விறைப்பான ஒரு பொருளை உருவாக்கினர் — அதுவும் மீளக்கூடிய வகையில்.
தசையிலிருந்து இழைகள், DNA-வால் ஆன நட்சத்திரங்கள்
அடிப்படைப் பொருள், முயல் தசைத் தூளிலிருந்து தூய்மைப்படுத்தப்பட்ட ஆக்டின் (actin) சிக்கல். அதன் அலகுகள் இணைந்து 10 முதல் 30 மைக்ரோமீட்டர் நீளமும் வெறும் 7 நானோமீட்டர் தடிமனும் கொண்ட இழைகளாகின்றன. அவை வளைவதை எதிர்க்கின்றன: அந்த விறைப்பின் அளவீடான அவற்றின் நிலைப்பு நீளம் (persistence length) சுமார் 17 மைக்ரோமீட்டர், அவற்றின் சொந்த நீளத்துக்கு அருகில். ஒன்றோடொன்று பின்னிக்கொண்டு, அவை ஒரு மென்மையான வலையை உருவாக்குகின்றன.
துளிகள் DNA நானோநட்சத்திரங்களால் (nanostars) ஆனவை — சுமார் 10 நானோமீட்டர் குறுக்களவுள்ள, நான்கு கைகள் கொண்ட துகள்கள். அவற்றின் கைகள், ஒன்றோடொன்று பிணையும் குட்டையான “ஒட்டும்” இழைகளில் முடிகின்றன. ஓர் உருகு வெப்பநிலைக்குக் கீழே — கலவையைப் பொறுத்து 27 முதல் 31 °C — நட்சத்திரங்கள் ஒன்றுகூடி அடர்த்தியான DNA திரவத்தின் துளிகளாகின்றன; அதற்கு மேலே அவை மீண்டும் கரைகின்றன. இது திரவ–திரவ நிலைப் பிரிவு (liquid–liquid phase separation); இத்தகைய உயிர்மூலக்கூறுத் துளிகள் திரட்சிகள் (condensates) எனப்படுகின்றன. ஆக்டினும் DNA-வும் ஒன்றோடொன்று பிணைவதில்லை.
இழைகளைச் சுற்றி வளரும் துளிகள்
குழு ஆக்டினை 37 °C-இல் ஒன்றுசேர விட்டு, பின்னர் மாதிரியைக் குளிர்வித்தது. ஆக்டின் இல்லாமல், துளிகள் ஒன்றிணைந்து பெரிய சொட்டுகளாகி அடியில் படிந்தன. ஆக்டினுடன், அவை சில மைக்ரோமீட்டர் அகலத்திலேயே இருந்து, மாதிரி முழுவதும் மிதந்தன. இருநிறப் படமெடுப்பு ஒரு வியப்பைத் தந்தது: ஆக்டின் சமிக்ஞை துளிகளுக்குள்ளும் சீராகவே இருந்தது. துளிகள் இழைகளை ஒதுக்கித் தள்ளாமல் அவற்றைச் சுற்றியே உருவாகியிருந்தன; எனவே ஒவ்வொன்றின் ஊடேயும் ஆக்டின் செல்கிறது — 14 மணி நேரத்துக்கும் மேலாக; மூன்று நாட்களுக்குப் பிறகு, ஆக்டின் பெரும்பாலும் வெளியேறியிருந்தது.
துளிகளின் அளவையும் வலையே நிர்ணயிக்கிறது. துளிகள் அங்குமிங்கும் அசைந்து ஒன்றிணைவதன் மூலம் வளர்கின்றன; வலை ஒவ்வொன்றையும் ஒரு சுருள்வில்லில் (spring) கட்டியதுபோலப் பிடித்து வைக்கிறது, எனவே எட்டும் தொலைவில் அண்டைத் துளி இல்லாதபோது ஒன்றிணைவு நின்றுவிடுகிறது. வலை எவ்வளவு விறைப்பாக இருக்கிறதோ, துளிகள் அவ்வளவு சிறியவை — ஆசிரியர்களின் மாதிரி கணிப்பதுபோலவே — ஆக்டின் இல்லாதபோது இருப்பதைவிட அவற்றின் அளவுகள் மேலும் சீரானவை.
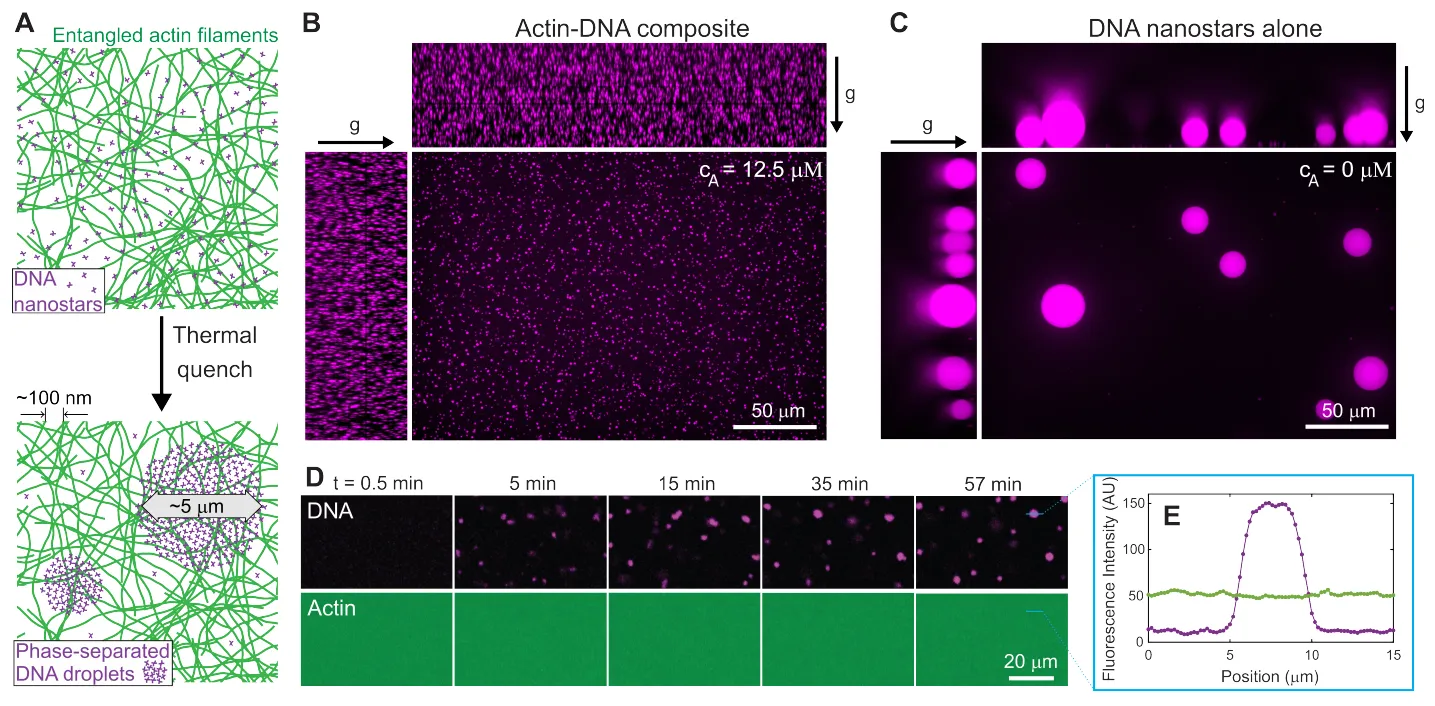
A: குளிர்விப்பதற்கு முன்னும் பின்னும் ஆக்டின் வலை (பச்சை), DNA நானோநட்சத்திரங்கள் (ஊதா). B: ஆக்டினுடன், சிறிய துளிகள் மாதிரி முழுவதும் மிதந்தபடி இருக்கின்றன. C: ஆக்டின் இல்லாமல், அவை பெரிதாக வளர்ந்து அடியில் படிகின்றன (g ஈர்ப்பைக் குறிக்கிறது). D–E: ஆக்டின் சமிக்ஞை, ஒரு துளியின் குறுக்கேகூடச் சீராக இருக்கிறது. — படம் 1, Wilken et al. (2026), arXiv:2610.38504.
முறுக்கி விறைப்பை அளத்தல்
விறைப்பு ஒரு ரியோமீட்டரில் (rheometer) அளக்கப்பட்டது; அது இரண்டு கண்ணாடித் தட்டுகளுக்கு இடையே மாதிரியின் மெல்லிய அடுக்கை மென்மையாக முன்னும் பின்னும் முறுக்குகிறது. இரண்டு எண்கள் கிடைக்கின்றன: ஒரு திண்மம்போலத் திரும்பித் துள்ளும் எதிர்ப்புப் பகுதியான மீள்தன்மைக் குணகம் G′ (elastic modulus), ஒரு திரவத்தில்போல இழக்கப்படும் பகுதியான இழப்புக் குணகம் G″ (loss modulus). இரண்டும் அழுத்தத்தின் அலகான பாஸ்கலில் தரப்படுகின்றன — இங்கே, ஓரலகு உருமாற்றத்துக்கு மாதிரியை வெட்டத் தேவையான தகைவு.
இருபத்தைந்து சதவீதம் அல்ல, இருபத்தைந்து மடங்கு
தனி ஆக்டின் வலை, 20 µM-இல் (மைக்ரோமோலார், செறிவின் ஓர் அளவீடு), சூடாக இருக்கும்போது சுமார் 1 பாஸ்கல் மீள்தன்மைக் குணகமும், குளிராக இருக்கும்போது அதன் இரு மடங்கும் கொண்டிருந்தது. உருகுநிலைக்கு மேலே கரைந்த 38 µM நானோநட்சத்திரங்களைச் சேர்த்தது அதை இரட்டிப்பாக்கியது. பின்னர், சுமார் 31 °C-க்குக் கீழே துளிகள் உருவாகத் தொடங்கியதும், குணகம் தாவி உயர்ந்து, தொடர்ந்து ஏறியது: குழுவின் வரைபடத்தில், அது 10 °C-இல் தோராயமாக 100 பாஸ்கலை எட்டுகிறது.
துளிகள் இல்லாத அதே கலவையின் குணகத்தால் வகுத்தால், இது மிகக் குறைந்த வெப்பநிலைகளில் சுமார் 25 என்ற விறைப்பேற்றக் காரணியைத் தருகிறது — துளிகள் கனஅளவில் சுமார் 9% மட்டுமே நிரப்பும் நிலையில். அந்தப் பின்னத்தில், ஐன்ஸ்டைனின் விதி அதிகபட்சம் 1.225 என்ற காரணியையே அனுமதிக்கிறது. உருகுநிலையின் இருபுறமும் வெப்பநிலையைச் சுழற்சி செய்வது, பொருளை மென்மைக்கும் விறைப்புக்கும் இடையே மீண்டும் மீண்டும், சுமார் 10 நிமிடங்களில் — துளிகள் தங்கள் இறுதி அளவை அடைய எடுக்கும் நேரம் — மாற்றுகிறது.
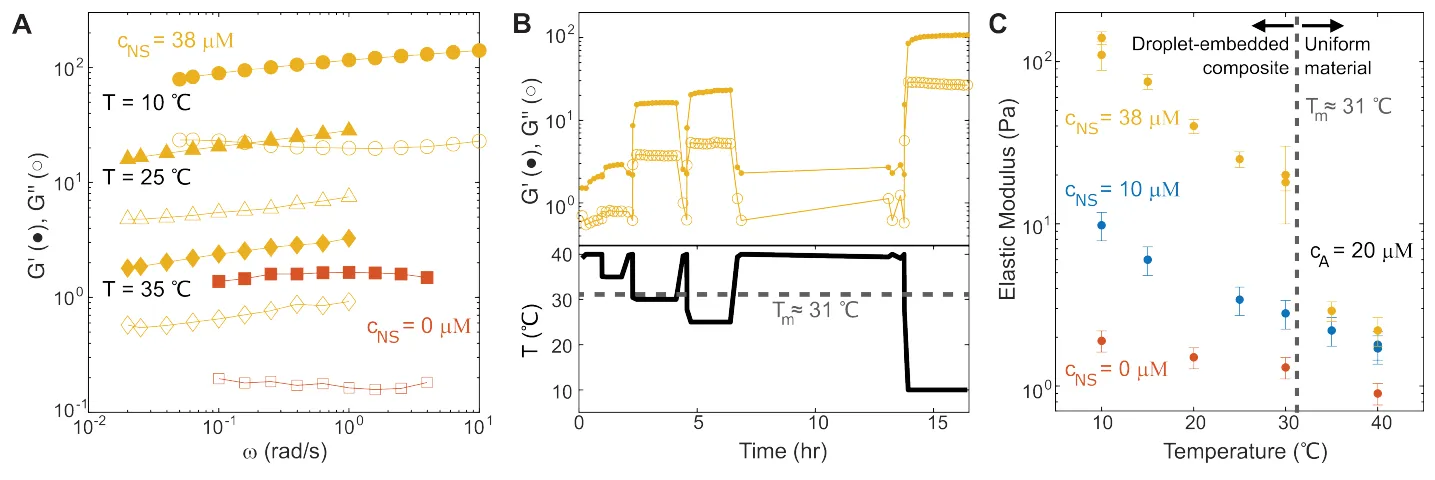
A: தனி ஆக்டினுக்கும் (சிவப்பு) மூன்று வெப்பநிலைகளில் நானோநட்சத்திரங்களுடனும் (மஞ்சள்) அதிர்வெண்ணுக்கு எதிராக மீள்தன்மை (G′, நிரம்பியவை) மற்றும் இழப்பு (G″, வெற்று) குணகங்கள். B: வெப்பநிலை (கீழே) உருகுநிலையின் இருபுறமும் சுழற்சி செய்யப்படும்போது, விறைப்பு (மேலே) முன்னும் பின்னும் மாறுகிறது. C: நானோநட்சத்திரங்கள் இல்லாமலும் 10 அல்லது 38 µM உடனும், வெப்பநிலைக்கு எதிராக மீள்தன்மைக் குணகம். — படம் 3, Wilken et al. (2026), arXiv:2610.38504.
பிடிக்கப்பட்ட இழைகள், இழுக்கப்படும் அண்டை இழைகள்
வழக்கமான இரண்டு விளக்கங்கள் தோல்வியடைகின்றன: DNA திரவத்தின் பரப்பு இழுவிசை (surface tension), அதாவது துளிகளின் பரப்பின் இழுப்பு, மிக மிக வலுவற்றது; நானோநட்சத்திரங்கள் இழைகளை ஒன்றோடொன்று ஒட்டியிருந்தால், பெரிய உருமாற்றங்களில் பொருள் இன்னும் விறைப்பாகியிருக்கும் — ஆனால் நேர்மாறானதே நடந்தது.
ஒரு துளிக்குள், ஆக்டின் இழைகள் சுமார் 10 நானோமீட்டர் அகலமுள்ள ஒரு “குழாய்க்குள்” நெருக்கப்படுகின்றன — அவற்றின் சொந்த 7-ஐவிடச் சற்றே அதிகம் — தனி ஆக்டினில் இது சுமார் 140 நானோமீட்டர். இந்த இறுக்கமான பிடி, ஒவ்வொரு துளியையும் அதன் இழைகளையும் ஒரு விறைப்பான கட்டியாக மாற்றுகிறது. இன்னும் போதவில்லை: கனஅளவின் 9%-இல், முழுமையாக விறைப்பான கட்டிகள்கூட ஐன்ஸ்டைனின் வரம்புக்குள்ளேயே இருக்கின்றன.
திறவுகோல் வெட்டு விசை (shear). ஒரு விறைப்பான கட்டி உருமாற முடியாது, எனவே அது சுழல்கிறது. உள்ளே பிடிக்கப்பட்ட இழைகள் அதனுடன் சுழல்கின்றன; அவற்றின் வெளிப் பகுதிகள் சுற்றியுள்ள வலையினூடே வீசிச் சென்று அதையும் இழுத்துச் செல்கின்றன; 2 மைக்ரோமீட்டர் ஆரமுள்ள ஒரு துளி இவற்றில் சுமார் 500-ஐப் பிடித்து வைத்திருக்கிறது. இழுக்கப்படும் மண்டலம் பரப்புக்கு அப்பால் ஒரு துளி-ஆரம் அளவுக்கு நீள்வதாக ஆசிரியர்கள் அனுமானிக்கிறார்கள். இது ஒவ்வொரு கட்டியின் பயனுறு ஆரத்தை இரட்டிப்பாக்கி, அதன் பயனுறு கனஅளவை 8 மடங்காக்குகிறது.
10 µM நானோநட்சத்திரங்களுடன், துளிகள் கனஅளவில் 2.5% நிரப்புகின்றன; எனவே பெரிதாக்கப்பட்ட கட்டிகள் 20% நிரப்புகின்றன. அவை தனித்தனியாகவே இருக்கின்றன; அப்போது நிலையான மாதிரிகள் 1.8 என்ற விறைப்பேற்றக் காரணியைக் கணிக்கின்றன — அளக்கப்பட்ட 2.2 ± 0.3-க்கு அருகில். 38 µM உடன், 9% என்பது சுமார் 70% ஆகிறது — இத்தகைய மேற்பொருந்தும் ஓடுகள் பகிரப்பட்ட இழைகளால் இணைந்து, பொருளை விறைப்பாக வைத்திருக்கும் தொடர்ச்சியான வலையாகும் வரம்பைவிட — சுமார் 30% — வெகு மேலே. விறைப்பேற்றம் வரம்புக்குட்பட்டதாகவே இருக்கிறது: அந்த வலை, ஒவ்வொரு துளிக்குள்ளும் அடைக்கப்பட்ட ஆக்டினைவிட விறைப்பானதல்ல.
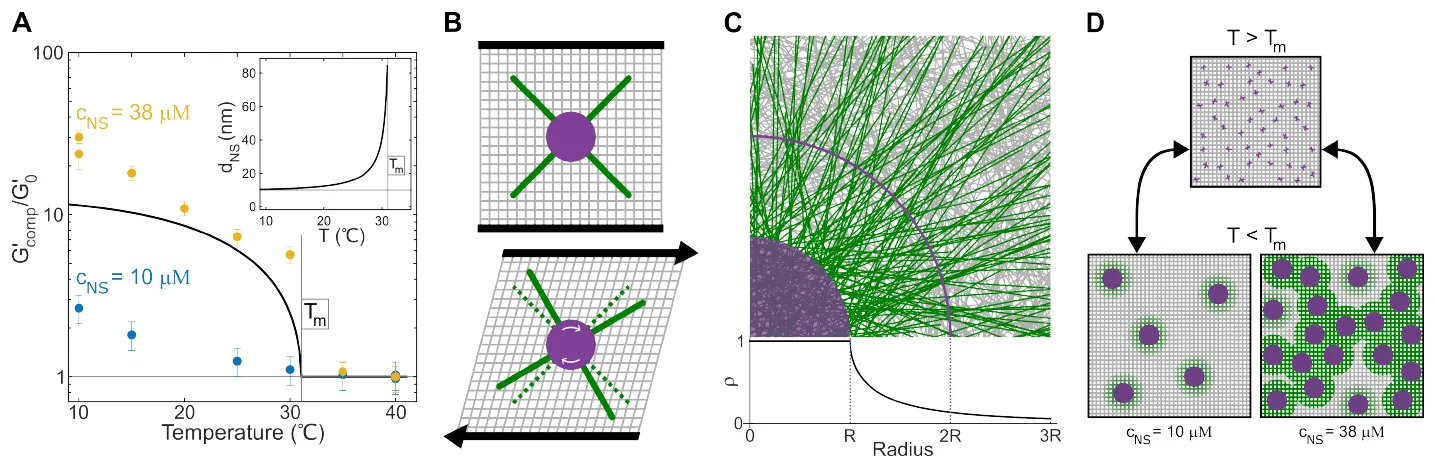
A: வெப்பநிலைக்கு எதிராக விறைப்பேற்றக் காரணி; கோடு, ஆசிரியர்களின் அடைப்புக் கணிப்பு. B: வெட்டு விசையின் கீழ், ஒரு துளி (ஊதா) சுழன்று, தன் ஊடே செல்லும் இழைகளை (பச்சை) இழுக்கிறது. C: ஒரு துளிக்கு அருகில், பெரும்பாலான இழைகள் அதைக் கடப்பவையே; வில், அதன் ஆரத்தின் இரு மடங்கைக் குறிக்கிறது. D: உருகுநிலைக்குக் கீழே, இழுக்கப்படும் ஒளிவட்டத்துடன் கூடிய துளிகள் 10 µM-இல் தனித்திருக்கின்றன, 38 µM-இல் ஒரு வலையாக இணைகின்றன. — படம் 4, Wilken et al. (2026), arXiv:2610.38504.
ஒரு நேரத்தில் ஒரு துளி
இந்தச் சித்திரம் ஓர் அனுமானத்தின் மீது நிற்கிறது — சரியாக ஓர் ஆரம் தடிமனுள்ள இழுக்கப்படும் மண்டலம் — மேலும் ஒவ்வொரு துளியையும் தனியாகக் கருதுகிறது. மண்டலங்கள் மேற்பொருந்தும் இடங்களில், இரண்டு துளிகளால் பகிரப்படும் இழைகள் இரண்டோடும் சுழல முடியாது — மாதிரி விட்டுவிடும் ஒரு தகைவு இது. வலை நிர்ணயிக்கும் துளி அளவு விறைப்பேற்றத்தில் பங்காற்றுகிறதா, அல்லது கனஅளவுப் பின்னம் மட்டுமே முக்கியமா என்பது தெளிவாக இல்லை. மேலும் வளைவுகள், ஒவ்வொரு நானோநட்சத்திரச் செறிவுக்கும் இரண்டு மாதிரிகளிலிருந்தும், தனி ஆக்டினுக்கு ஒரு மாதிரியிலிருந்தும் வருகின்றன.
ஆசிரியர்கள் இந்த இணைப்பை “பரஸ்பரம், பின்னூட்டம் அல்ல” (reciprocal, not feedback) என்கிறார்கள்: எதிரெதிர்த் திசைகளைச் சுட்டும் இரண்டு ஒருவழித் தாக்கங்கள். திரட்சிகளும் இழை வலைகளும் இரண்டுமே பரவலாக உள்ள உயிரியலில், துளிகள் உருவாவது தேவைக்கேற்ப இயக்கவியலை மாற்றக்கூடும் என அவர்கள் கூறுகிறார்கள். தற்போதைக்கு, இந்தக் கலவையில், துளிகள் எவ்வளவு பெரிதாக வளர வேண்டும் என்பதை வலை தீர்மானிக்கிறது; வலை எவ்வளவு கடுமையாகத் திருப்பித் தள்ள வேண்டும் என்பதைத் துளிகள் தீர்மானிக்கின்றன.