UNAS POCAS GOTITAS DE ADN, UNA MALLA 25 VECES MÁS RÍGIDA
Si se mezclan partículas rígidas en un material blando, este se endurece en proporción al espacio que ocupan. Para cantidades pequeñas, la regla lleva el nombre de Einstein: la rigidez se multiplica por 1 + 5ϕ/2, donde ϕ es la fracción del volumen que ocupan las partículas. Con una décima parte del volumen, eso da un factor de 1,25: como mucho un 25 % más rígido, incluso con partículas perfectamente rígidas.
Sam Wilken, de la Universidad Johannes Gutenberg de Maguncia, Omar Saleh, de la Universidad de California en Santa Bárbara, y sus colegas usaron en cambio gotitas líquidas. Ocupando menos de una décima parte del volumen, obtuvieron un material unas 25 veces más rígido, y de forma reversible.
Filamentos de músculo, estrellas de ADN
La matriz es una maraña de actina, purificada a partir de polvo de músculo de conejo. Sus unidades se unen en filamentos de 10 a 30 micrómetros de largo y solo 7 nanómetros de grosor. Resisten la flexión: su longitud de persistencia, una medida de esa rigidez, es de unos 17 micrómetros, cercana a su propia longitud. Enredados, forman una malla blanda.
Las gotitas están hechas de nanoestrellas de ADN, partículas de cuatro brazos de unos 10 nanómetros de diámetro. Sus brazos terminan en cortas hebras «pegajosas» que se unen entre sí. Por debajo de una temperatura de fusión —de 27 a 31 °C según la mezcla—, las estrellas se agrupan en gotitas de un líquido denso de ADN, que vuelven a disolverse por encima de ella. Es una separación de fases líquido-líquido, y estas gotitas biomoleculares se llaman condensados. La actina y el ADN no se unen entre sí.
Gotitas que crecen alrededor de los filamentos
El equipo dejó que la actina se ensamblara a 37 °C y luego enfrió la muestra. Sin actina, las gotitas se fusionaban en gotas grandes que se hundían. Con actina, se mantenían de unos pocos micrómetros de diámetro, suspendidas por toda la muestra. Las imágenes en dos colores depararon una sorpresa: la señal de la actina seguía siendo uniforme incluso dentro de ellas. Las gotitas se habían formado alrededor de los filamentos en lugar de apartarlos, de modo que cada una está atravesada por actina, durante más de 14 horas; tres días después, la actina había salido en su mayor parte.
La malla también fija el tamaño de las gotitas. Las gotitas crecen agitándose y fusionándose; la malla sujeta a cada una como si estuviera atada a un muelle, así que la fusión se detiene cuando ya no queda ninguna vecina a su alcance. Cuanto más rígida es la malla, más pequeñas son las gotitas, como predice el modelo de los autores, y sus tamaños son más uniformes que sin actina.
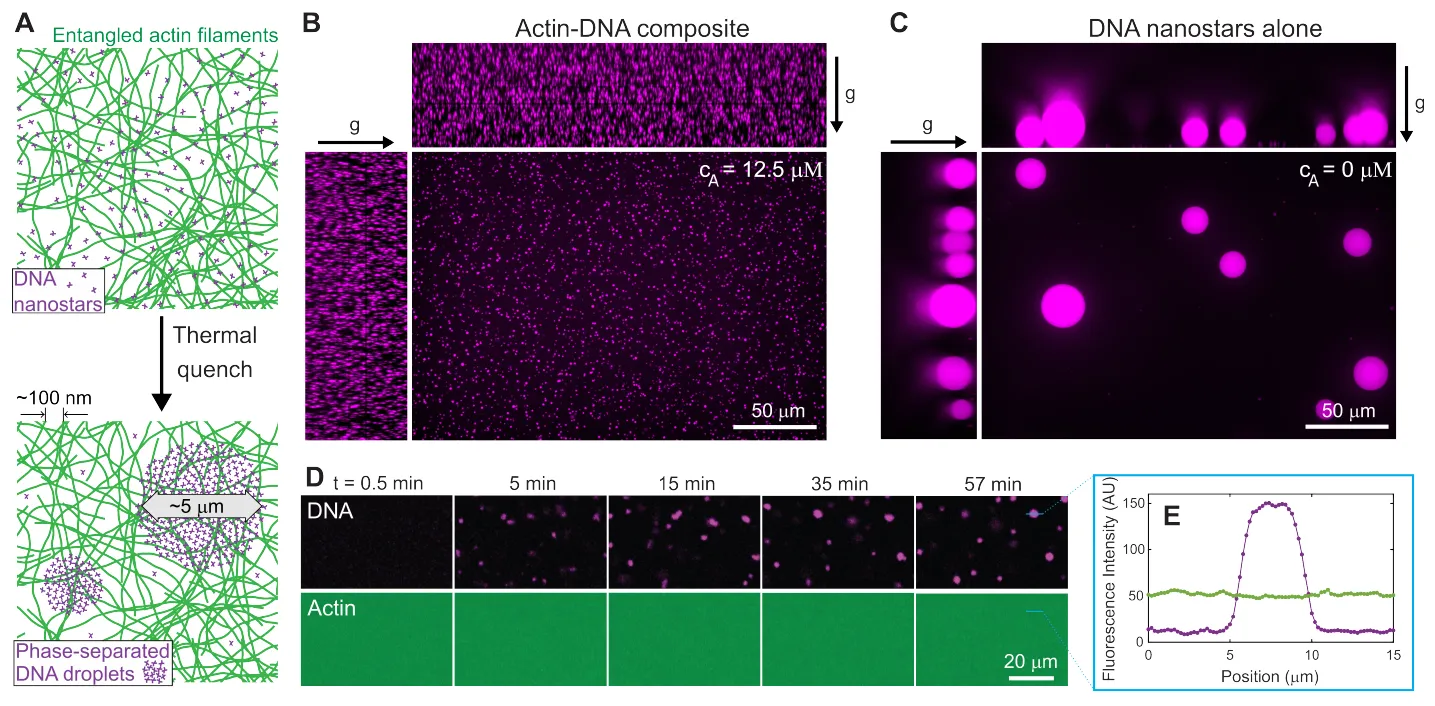
A: la malla de actina (verde) y las nanoestrellas de ADN (morado) antes y después del enfriamiento. B: con actina, las gotitas pequeñas quedan suspendidas por toda la muestra. C: sin actina, crecen y se hunden (g indica la gravedad). D–E: la señal de la actina sigue siendo uniforme, incluso a través de una gotita. — Figura 1, Wilken et al. (2026), arXiv:2610.38504.
Medir la rigidez retorciendo
La rigidez se midió con un reómetro, que retuerce suavemente, adelante y atrás, una fina capa de muestra entre dos placas de vidrio. Se obtienen dos números: el módulo elástico G′, la parte de la resistencia que se recupera como en un sólido, y el módulo de pérdida G″, la parte que se pierde como en un líquido. Ambos se expresan en pascales, la unidad de presión; aquí, la tensión necesaria para cizallar la muestra por unidad de deformación.
Veinticinco veces, no un veinticinco por ciento
La malla de actina sola, a 20 µM (micromolar, una medida de concentración), tenía un módulo elástico de aproximadamente 1 pascal en caliente y el doble en frío. Añadir 38 µM de nanoestrellas, disueltas por encima del punto de fusión, lo duplicaba. Luego, al formarse gotitas por debajo de unos 31 °C, el módulo daba un salto y seguía subiendo: en la gráfica del equipo, alcanza unos 100 pascales a 10 °C.
Dividido por el módulo de la misma mezcla sin gotitas, esto da un factor de rigidización de unos 25 a las temperaturas más bajas, con gotitas que ocupan solo un 9 % del volumen. Con esa fracción, la regla de Einstein permite como mucho un factor de 1,225. Y hacer oscilar la temperatura en torno al punto de fusión hace pasar al material de blando a rígido, una y otra vez, en unos 10 minutos: el tiempo que tardan las gotitas en alcanzar su tamaño final.
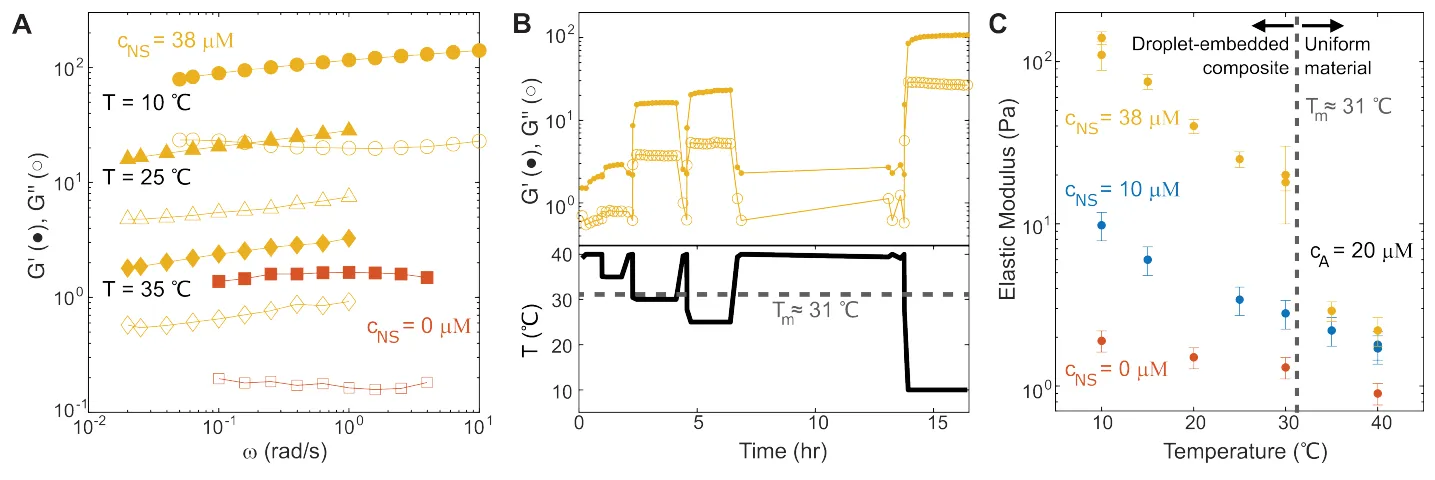
A: módulos elástico (G′, símbolos rellenos) y de pérdida (G″, vacíos) frente a la frecuencia, para la actina sola (rojo) y con nanoestrellas a tres temperaturas (amarillo). B: cuando la temperatura (abajo) oscila en torno al punto de fusión, la rigidez (arriba) cambia de un valor a otro. C: módulo elástico frente a temperatura, sin nanoestrellas y con 10 o 38 µM. — Figura 3, Wilken et al. (2026), arXiv:2610.38504.
Filamentos sujetos, vecinos arrastrados
Dos explicaciones habituales fallan: la tensión superficial del líquido de ADN, el tirón de la superficie de las gotitas, es demasiado débil, y unas nanoestrellas que pegaran los filamentos entre sí harían que el material se endureciera aún más con deformaciones mayores; ocurrió lo contrario.
Dentro de una gotita, los filamentos de actina quedan comprimidos en un «tubo» de unos 10 nanómetros de ancho —apenas más que sus propios 7—, frente a unos 140 nanómetros en la actina sola. Esa sujeción tan estrecha convierte cada gotita y sus filamentos en un bloque rígido. Aun así, no basta: con un 9 % del volumen, incluso unos bloques perfectamente rígidos se mantienen dentro del límite de Einstein.
La clave es la cizalla. Un bloque rígido no puede deformarse, así que gira. Los filamentos sujetos en su interior giran con él, y sus partes exteriores barren la malla circundante, arrastrándola; una gotita de 2 micrómetros de radio sujeta unos 500. Los autores suponen que la zona arrastrada se extiende un radio de gotita más allá de la superficie. Eso duplica el radio efectivo de cada bloque y multiplica por 8 su volumen efectivo.
Con 10 µM de nanoestrellas, las gotitas ocupan un 2,5 % del volumen, así que los bloques agrandados ocupan un 20 %. Siguen separados; los modelos estándar predicen entonces un factor de rigidización de 1,8, cercano al 2,2 ± 0,3 medido. Con 38 µM, el 9 % pasa a ser alrededor del 70 %, muy por encima del umbral —de un 30 % aproximadamente— a partir del cual estas capas superpuestas se enlazan en una red continua, unida por filamentos compartidos, que mantiene rígido el material. La rigidización sigue siendo finita: la red no es más rígida que la actina confinada dentro de cada gotita.
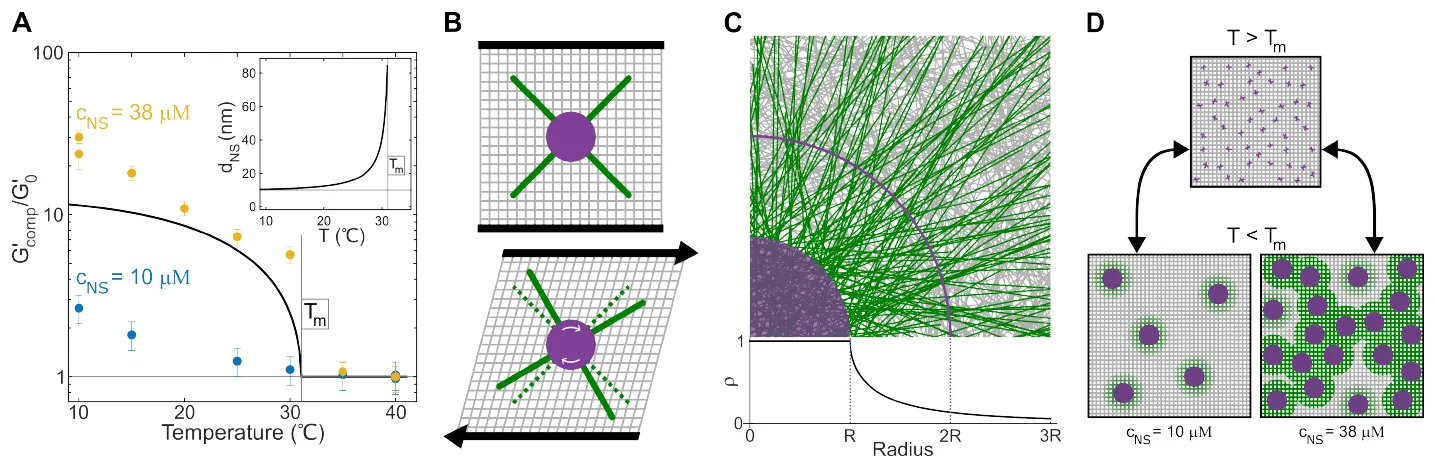
A: factor de rigidización frente a la temperatura; la línea es la predicción de los autores basada en el confinamiento. B: bajo cizalla, una gotita (morado) gira y arrastra los filamentos que la atraviesan (verde). C: cerca de una gotita, la mayoría de los filamentos son de los que la cruzan; el arco marca el doble de su radio. D: por debajo del punto de fusión, las gotitas con su halo arrastrado permanecen separadas a 10 µM y se unen en una red a 38 µM. — Figura 4, Wilken et al. (2026), arXiv:2610.38504.
Una gotita cada vez
Esta imagen se basa en una suposición —una zona arrastrada de exactamente un radio de grosor— y trata cada gotita por separado. Donde las zonas se superponen, los filamentos compartidos por dos gotitas no pueden girar con ambas, una tensión que el modelo deja fuera. No está claro si el tamaño de las gotitas fijado por la malla influye en la rigidización o si solo cuenta la fracción de volumen. Y las curvas proceden de dos muestras por concentración de nanoestrellas, y de una para la actina sola.
Los autores califican el acoplamiento de «recíproco, no de retroalimentación»: dos influencias unidireccionales que apuntan en sentidos opuestos. En biología, donde tanto los condensados como las redes de filamentos están muy extendidos, la formación de gotitas podría cambiar las propiedades mecánicas a demanda, sugieren. Por ahora, en esta mezcla, la malla decide cuánto crecen las gotitas, y las gotitas deciden con cuánta fuerza resiste la malla.