ALGUMAS GOTÍCULAS DE DNA, UMA MALHA 25 VEZES MAIS RÍGIDA
Misture partículas rígidas num material mole e ele enrijece, na proporção do espaço que elas ocupam. Para pequenas quantidades, a regra leva o nome de Einstein: a rigidez é multiplicada por 1 + 5ϕ/2, em que ϕ é a fração do volume ocupada pelas partículas. Com um décimo do volume, isso dá um fator de 1,25 — no máximo 25% mais rígido, mesmo com partículas perfeitamente rígidas.
Sam Wilken, da Universidade Johannes Gutenberg de Mainz, Omar Saleh, da Universidade da Califórnia em Santa Barbara, e colegas usaram, em vez disso, gotículas líquidas. Ocupando menos de um décimo do volume, obtiveram um material cerca de 25 vezes mais rígido — de forma reversível.
Filamentos de músculo, estrelas feitas de DNA
A matriz é um emaranhado de actina, purificada a partir de pó de músculo de coelho. Suas unidades se juntam em filamentos de 10 a 30 micrômetros de comprimento e apenas 7 nanômetros de espessura. Eles resistem à flexão: seu comprimento de persistência, uma medida dessa rigidez, é de cerca de 17 micrômetros, próximo de seu próprio comprimento. Emaranhados, formam uma malha mole.
As gotículas são feitas de nanoestrelas de DNA, partículas de quatro braços com cerca de 10 nanômetros de diâmetro. Seus braços terminam em fitas curtas “adesivas” que se ligam umas às outras. Abaixo de uma temperatura de fusão — de 27 a 31 °C, conforme a mistura — as estrelas se reúnem em gotículas de um líquido denso de DNA, que voltam a se dissolver acima dela. Trata-se de uma separação de fases líquido–líquido, e essas gotículas biomoleculares são chamadas de condensados. A actina e o DNA não se ligam um ao outro.
Gotículas que crescem em volta dos filamentos
A equipe deixou a actina se montar a 37 °C e depois resfriou a amostra. Sem actina, as gotículas se fundiam em gotas grandes que afundavam. Com actina, elas ficavam com poucos micrômetros de diâmetro, suspensas por toda parte. As imagens em duas cores trouxeram uma surpresa: o sinal da actina continuava uniforme mesmo dentro delas. As gotículas tinham se formado em volta dos filamentos em vez de empurrá-los para o lado, de modo que cada uma é atravessada por actina — por mais de 14 horas; três dias depois, a actina tinha saído em sua maior parte.
A malha também define o tamanho das gotículas. As gotículas crescem agitando-se e se fundindo; a malha segura cada uma como se estivesse presa a uma mola, de modo que as fusões param quando nenhuma vizinha está ao alcance. Quanto mais rígida a malha, menores as gotículas, como prevê o modelo dos autores — e seus tamanhos são mais uniformes do que sem actina.
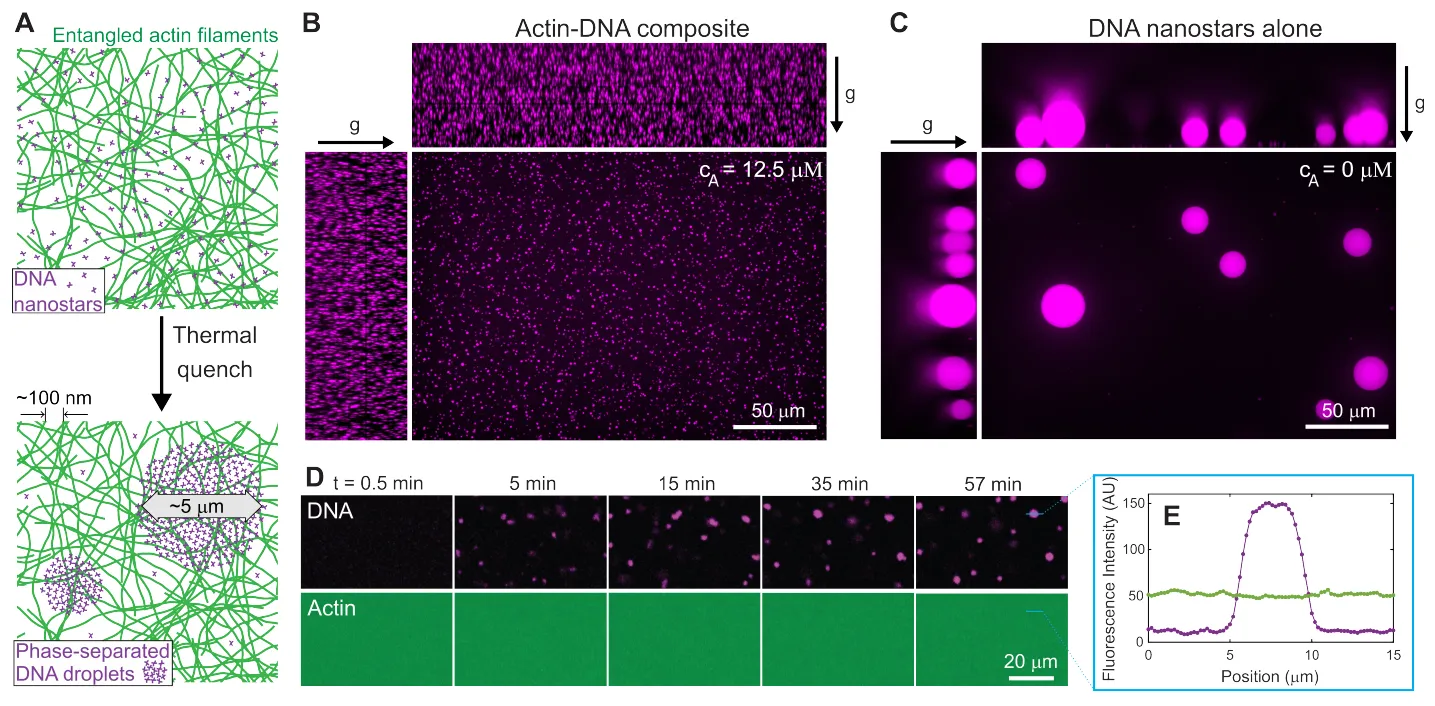
A: a malha de actina (verde) e as nanoestrelas de DNA (roxo) antes e depois do resfriamento. B: com actina, pequenas gotículas permanecem suspensas por toda a amostra. C: sem actina, elas crescem e afundam (g indica a gravidade). D–E: o sinal da actina permanece uniforme, mesmo através de uma gotícula. — Figura 1, Wilken et al. (2026), arXiv:2610.38504.
Medir a rigidez torcendo
A rigidez foi medida num reômetro, que torce suavemente para lá e para cá uma camada fina de amostra entre duas placas de vidro. Saem dois números: o módulo elástico G′, a parte da resistência que volta como uma mola, como num sólido, e o módulo de perda G″, a parte que se perde, como num líquido. Ambos são expressos em pascals, a unidade de pressão — aqui, a tensão necessária para cisalhar a amostra por unidade de deformação.
Vinte e cinco vezes, não vinte e cinco por cento
A malha de actina sozinha, a 20 µM (micromolar, uma medida de concentração), tinha um módulo elástico de cerca de 1 pascal quando quente, o dobro quando fria. Acrescentar 38 µM de nanoestrelas, dissolvidas acima do ponto de fusão, o dobrou. Depois, à medida que as gotículas se formavam abaixo de cerca de 31 °C, o módulo deu um salto e continuou subindo: no gráfico da equipe, chega a cerca de 100 pascals a 10 °C.
Dividido pelo módulo da mesma mistura sem gotículas, isso dá um fator de enrijecimento de cerca de 25 nas temperaturas mais baixas, com gotículas ocupando apenas cerca de 9% do volume. Nessa fração, a regra de Einstein permite no máximo um fator de 1,225. E fazer a temperatura oscilar em torno do ponto de fusão alterna o material entre mole e rígido, de novo e de novo, em cerca de 10 minutos — o tempo que as gotículas levam para atingir seu tamanho final.
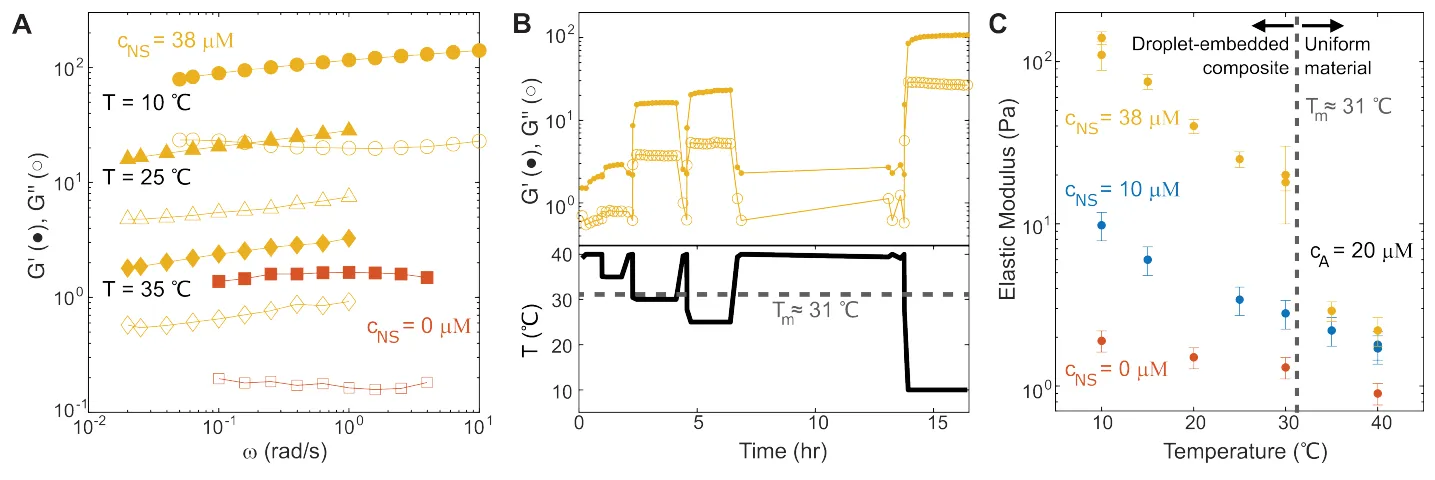
A: módulos elástico (G′, cheio) e de perda (G″, vazio) em função da frequência, para a actina sozinha (vermelho) e com nanoestrelas a três temperaturas (amarelo). B: quando a temperatura (embaixo) oscila em torno do ponto de fusão, a rigidez (em cima) alterna para lá e para cá. C: módulo elástico em função da temperatura, sem nanoestrelas e com 10 ou 38 µM. — Figura 3, Wilken et al. (2026), arXiv:2610.38504.
Filamentos presos, vizinhos arrastados
Duas explicações habituais não funcionam: a tensão superficial do líquido de DNA, a força de tração da superfície das gotículas, é fraca demais, e nanoestrelas colando os filamentos entre si fariam o material enrijecer ainda mais sob deformações maiores — aconteceu o contrário.
Dentro de uma gotícula, os filamentos de actina ficam espremidos num “tubo” de cerca de 10 nanômetros de largura — pouco mais que seus próprios 7 —, contra cerca de 140 nanômetros na actina sozinha. Esse aperto firme transforma cada gotícula e seus filamentos num bloco rígido. Ainda não basta: a 9% do volume, mesmo blocos perfeitamente rígidos ficam dentro do limite de Einstein.
A chave é o cisalhamento. Um bloco rígido não pode se deformar, então gira. Os filamentos presos dentro dele giram junto, e suas partes externas varrem a malha ao redor, arrastando-a consigo; uma gotícula de 2 micrômetros de raio segura cerca de 500 deles. Os autores supõem que a zona arrastada se estende por um raio de gotícula além da superfície. Isso dobra o raio efetivo de cada bloco e multiplica seu volume efetivo por 8.
Com 10 µM de nanoestrelas, as gotículas ocupam 2,5% do volume, então os blocos ampliados ocupam 20%. Eles permanecem separados; os modelos padrão preveem então um fator de enrijecimento de 1,8, próximo dos 2,2 ± 0,3 medidos. Com 38 µM, 9% vira cerca de 70%, muito acima do limiar — cerca de 30% — a partir do qual essas cascas sobrepostas se ligam numa rede contínua, unida por filamentos compartilhados, que mantém o material rígido. O enrijecimento continua finito: a rede não é mais rígida do que a actina confinada dentro de cada gotícula.
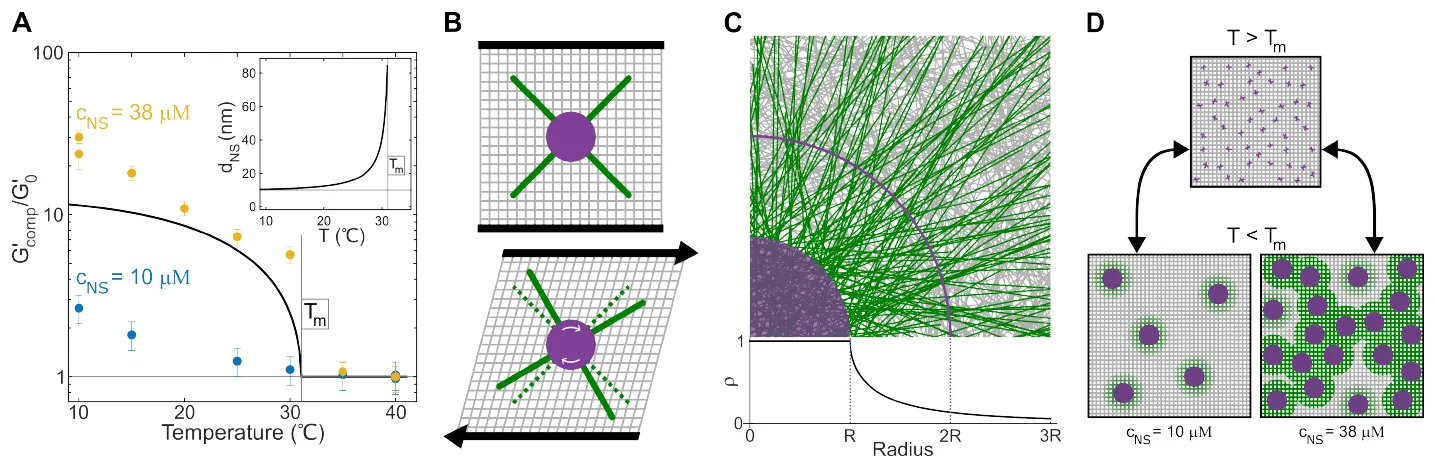
A: fator de enrijecimento em função da temperatura; a linha é a previsão de confinamento dos autores. B: sob cisalhamento, uma gotícula (roxo) gira e arrasta os filamentos que a atravessam (verde). C: perto de uma gotícula, a maioria dos filamentos são os que a atravessam; o arco marca o dobro de seu raio. D: abaixo do ponto de fusão, as gotículas com seu halo arrastado ficam separadas a 10 µM e se unem numa rede a 38 µM. — Figura 4, Wilken et al. (2026), arXiv:2610.38504.
Uma gotícula de cada vez
O quadro repousa sobre uma hipótese — uma zona arrastada com exatamente um raio de espessura — e trata cada gotícula isoladamente. Onde as zonas se sobrepõem, filamentos compartilhados por duas gotículas não podem girar com ambas, uma tensão que o modelo deixa de fora. Não está claro se o tamanho das gotículas definido pela malha importa para o enrijecimento, ou apenas a fração de volume. E as curvas vêm de duas amostras por concentração de nanoestrelas, e de uma para a actina sozinha.
Os autores chamam o acoplamento de “recíproco, não de retroalimentação”: duas influências de mão única apontando em sentidos opostos. Em biologia, onde condensados e redes de filamentos são ambos muito difundidos, a formação de gotículas poderia mudar a mecânica sob demanda, sugerem eles. Por enquanto, nesta mistura, a malha decide o tamanho que as gotículas alcançam, e as gotículas decidem com que força a malha resiste.