HÄMOGLOBIN IST VIELLEICHT WENIGER KOOPERATIV, ALS LEHRBÜCHER SAGEN
Hämoglobin, das Protein, das den Sauerstoff in unserem Blut transportiert, ist zugleich das Lehrbuchbeispiel für Kooperativität: Hat es ein Sauerstoffmolekül gebunden, bindet es die nächsten leichter, bis zu vier. Dadurch kann es sich in der Lunge vollständig beladen und im Gewebe wieder entladen. Zwei klassische Modelle erklären das – das von L. Pauling 1935 vorgeschlagene, in dem sich die vier Bindungsstellen gegenseitig helfen, und das Monod-Wyman-Changeux-Modell (MWC) von 1965, in dem das ganze Molekül zwischen zwei Formen wechselt, die Sauerstoff mehr oder weniger fest halten.
Beide werden üblicherweise im selben Rahmen durchgerechnet: ein einzelnes Hämoglobinmolekül, eingetaucht in ein Reservoir freier Sauerstoffmoleküle, das durch einen Druck beschrieben wird. In der Physik heißt das „großkanonisches Ensemble“. Daraus folgt die Sättigungskurve – wie viel Sauerstoff Hämoglobin bei jedem Druck hält –, und an dieser Kurve liest man die Kooperativität ab.
Ein Reservoir, das es nicht gibt
Das Team um A. E. Allahverdyan am Alikhanyan National Laboratory und an der Staatlichen Universität Jerewan in Armenien weist darauf hin, dass in einem roten Blutkörperchen dieses Reservoir nicht existiert. Im Blutkörperchen gelöster freier Sauerstoff ist mindestens 100-mal weniger konzentriert als an Hämoglobin gebundener Sauerstoff – genau das ist der Grund, warum es Hämoglobin gibt. Es gibt etwa 30 Hämoglobinmoleküle pro freiem Sauerstoffmolekül. Selbst im arteriellen Blut haben die meisten Hämoglobinmoleküle kein freies Sauerstoffmolekül in ihrer Nähe: Jedes sieht nur die vier Moleküle, die es selbst hält.
Deshalb beschreibt das Team die Lage anders: ein Hämoglobin und eine Handvoll Sauerstoffmoleküle – höchstens fünf – in einem festen Volumen, das „kanonische Ensemble“. Dieses Volumen ergibt sich daraus, wie dicht Hämoglobin in der Zelle gepackt ist: etwa das Vierfache des Eigenvolumens des Moleküls, ein Würfel mit 6,93 Nanometern Kantenlänge. In diesem Bild wandert Sauerstoff je nach Unterschieden in der freien Energie hinein oder hinaus, einem Maß dafür, welche Anordnung statistisch begünstigt ist.
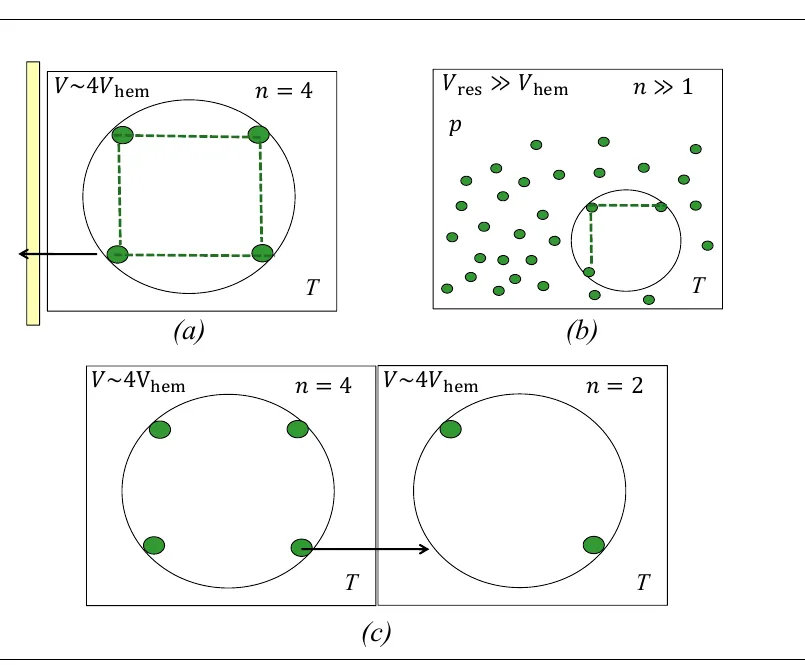
(a) Das neue Bild: ein Hämoglobin (Kreis) mit seinen vier Sauerstoffmolekülen in einem Volumen von etwa dem Vierfachen seines eigenen. (b) Das übliche Bild: ein Hämoglobin in einem Reservoir aus vielen freien Sauerstoffmolekülen. (c) Zwei benachbarte Hämoglobine können Sauerstoff austauschen. — Abbildung 1, Allahverdyan et al. (2026), arXiv:2611.00824.
Schwächere Kooperativität
Das Team passte beide klassischen Modelle an Standarddaten dazu an, wie Hämoglobin Sauerstoff abgibt, wenn der Sauerstoffdruck sinkt – das erste Molekül geht zwischen 80 und 40 Torr, das letzte zwischen 20 und 7,5 Torr.
- Im Pauling-Modell ergibt sich der Kooperativitätsfaktor (1 bedeutet keine) im neuen Rahmen zu 1,88, gegenüber 6,32 im üblichen, angepasst an dieselben Daten. Paulings eigene Anpassung mit älteren Daten ergab 12.
- Im MWC-Modell liegt das Verhältnis der Sauerstoffaffinitäten der beiden Formen – ein Maß dafür, wie weit das Molekül von einfacher, unabhängiger Bindung abweicht – bei etwa 4,7, gegenüber 95,4 im üblichen Rahmen.
Ein gewisses Maß an Kooperativität bleibt nötig. Ohne sie könnte sich Hämoglobin zwar in der Lunge beladen, würde aber nur ruhendes Gewebe versorgen.
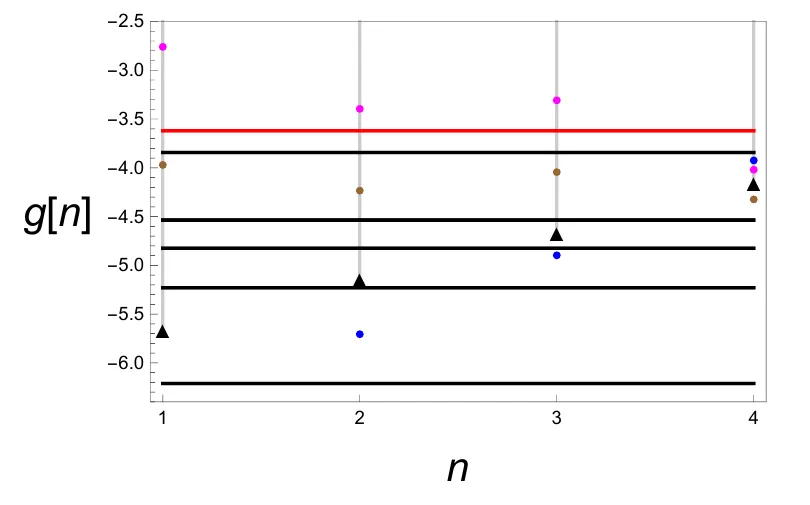
Niveaus der freien Energie im Pauling-Modell für ein bis vier gebundene Sauerstoffmoleküle. Die waagerechten Linien markieren die physiologischen Fenster; nur die beste Anpassung (schwarze Dreiecke, Kooperativität 1,88) liegt in allen. Die anderen Farben zeigen stärkere Kooperativität (Magenta, Braun) und keine (Blau). — Abbildung 2, Allahverdyan et al. (2026), arXiv:2611.00824.
Wenn Kooperation zur Kaskade wird
Im neuen Rahmen wird zu viel Kooperativität gefährlich. Bei einem Faktor von 4,83 ergibt die Rechnung eine Kaskade: Sobald das erste Sauerstoffmolekül geht, werden die anderen drei automatisch freigesetzt – ein Szenario, das das Team als inakzeptabel bezeichnet, weil es zu einer Sauerstoffvergiftung führen würde. Bei 7,83 könnte sich Hämoglobin in der Lunge überhaupt nicht mehr beladen. Auch die Werte des üblichen Rahmens führen, in den neuen übertragen, zu Instabilitäten. Der übliche Rahmen setzt dagegen keine solchen Grenzen.
Das neue Bild verändert auch den Charakter des Moleküls. In der üblichen Beschreibung schwankt die Zahl der gebundenen Sauerstoffmoleküle etwa so stark wie ihr Mittelwert. In der kanonischen schwankt sie kaum: Hämoglobin verhält sich fast wie eine Maschine, die Sauerstoff Schritt für Schritt aufnimmt und abgibt, und ein volles Molekül zieht keinen weiteren an.
Sauerstoff, der springt
Das Team zieht noch eine Folgerung: Da benachbarte Hämoglobine Sauerstoff entsprechend ihrer freien Energien austauschen können, könnte sich Sauerstoff im roten Blutkörperchen teilweise durch Sprünge von einem Hämoglobin zum nächsten fortbewegen. Um diese Idee zu prüfen, braucht es dynamische Modelle. Die Studie ist theoretisch, und ihre physiologischen Schwellenwerte sind nach den Worten des Teams „etwas konventionell“ – doch sie stellt einen Grundpfeiler dessen infrage, wie Biologielehrbücher den Sauerstoff in unserem Blut beschreiben.