HEMOGLOBINI HUENDA INA USHIRIKIANO MDOGO KULIKO VITABU VYA KIADA VINAVYOSEMA
Hemoglobini, protini inayobeba oksijeni katika damu yetu, pia ndiyo mfano wa kiada wa ushirikiano (cooperativity): ikishashika molekuli moja ya oksijeni, hushika zinazofuata kwa urahisi zaidi, hadi nne. Hili ndilo linaloiwezesha kujaa kikamilifu katika mapafu na kupakua katika tishu. Modeli mbili za kale zinaueleza — ile aliyopendekeza L. Pauling mwaka 1935, ambamo maeneo manne ya kushikia husaidiana, na modeli ya Monod-Wyman-Changeux (MWC) ya mwaka 1965, ambamo molekuli nzima hubadilika kati ya maumbo mawili yanayoshika oksijeni kwa nguvu zaidi au kidogo.
Zote mbili kwa kawaida hufanyiwa hesabu katika mazingira yaleyale: molekuli moja ya hemoglobini iliyozamishwa katika hifadhi (reservoir) ya molekuli huru za oksijeni, inayoelezwa kwa shinikizo. Wanafizikia huiita hii “mkusanyiko mkuu sanifu” (grand canonical ensemble). Mkunjo wa kujaa — kiasi cha oksijeni ambacho hemoglobini hushika katika kila shinikizo — hutokana nao, na ushirikiano husomwa kutoka kwenye mkunjo huo.
Hifadhi ambayo haipo
A. E. Allahverdyan na wenzake, katika Alikhanyan National Laboratory na Yerevan State University nchini Armenia, wanaonyesha kwamba ndani ya seli nyekundu ya damu, hifadhi hiyo haipo. Oksijeni huru iliyoyeyuka katika seli ina msongamano angalau mara 100 chini ya oksijeni iliyoshikwa na hemoglobini — na hiyo ndiyo sababu hasa ya kuwepo kwa hemoglobini. Kuna takriban molekuli 30 za hemoglobini kwa kila molekuli moja ya oksijeni huru. Hata katika damu ya ateri, molekuli nyingi za hemoglobini hazina oksijeni huru yoyote karibu nazo: kila moja huona tu molekuli nne inazoshika.
Kwa hiyo timu inaieleza hali hiyo kwa njia tofauti: hemoglobini moja na molekuli chache za oksijeni — zisizozidi tano — katika ujazo usiobadilika, yaani “mkusanyiko sanifu” (canonical ensemble). Ujazo huo huamuliwa na jinsi hemoglobini ilivyobanana katika seli: takriban mara nne ya ujazo wa molekuli yenyewe, mchemraba wenye upande wa nanomita 6.93. Katika picha hii, oksijeni huingia au kutoka kulingana na tofauti za nishati huru (free energy), kipimo cha mpangilio upi unaopendelewa kitakwimu.
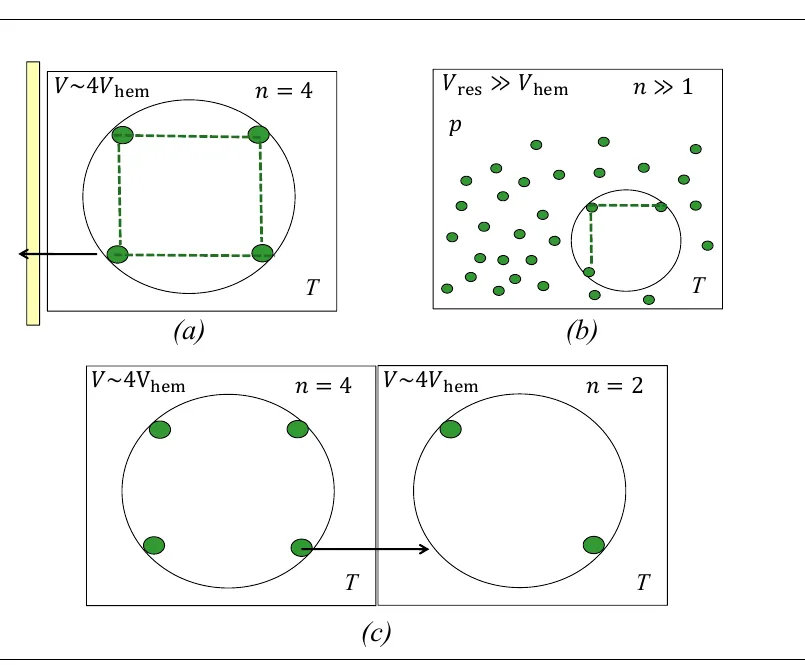
(a) Picha mpya: hemoglobini moja (duara) pamoja na molekuli zake nne za oksijeni katika ujazo takriban mara nne ya ujazo wake. (b) Picha ya kawaida: hemoglobini katika hifadhi ya molekuli nyingi za oksijeni huru. (c) Hemoglobini mbili jirani zinaweza kubadilishana oksijeni. — Kielelezo 1, Allahverdyan et al. (2026), arXiv:2611.00824.
Ushirikiano dhaifu zaidi
Timu ililinganisha modeli zote mbili za kale na data za kawaida kuhusu jinsi hemoglobini inavyoachilia oksijeni kadiri shinikizo la oksijeni linavyoshuka — molekuli ya kwanza ikiondoka kati ya torr 80 na 40 (torr ni kipimo cha shinikizo; katika mapafu, oksijeni iko takriban torr 100), na ya mwisho kati ya torr 20 na 7.5.
- Katika modeli ya Pauling, kipengele cha ushirikiano — kiasi ambacho oksijeni iliyoshikwa huongeza ushikaji katika eneo jirani; 1 maana yake hakuna ongezeko — kinatokea kuwa 1.88 katika mfumo mpya, dhidi ya 6.32 katika ule wa kawaida, kwa data zilezile. Ulinganisho wa Pauling mwenyewe, kwa data za zamani zaidi, ulitoa 12.
- Katika modeli ya MWC, uwiano kati ya mvuto wa oksijeni (affinity) kwa maumbo hayo mawili — kipimo cha kiasi ambacho molekuli inatofautiana na ushikaji rahisi na huru — unatokea kuwa takriban 4.7, dhidi ya 95.4 katika mfumo wa kawaida.
Ushirikiano fulani bado unahitajika. Bila huo, hemoglobini ingeweza kujaa katika mapafu lakini ingehudumia tu tishu zilizopumzika.
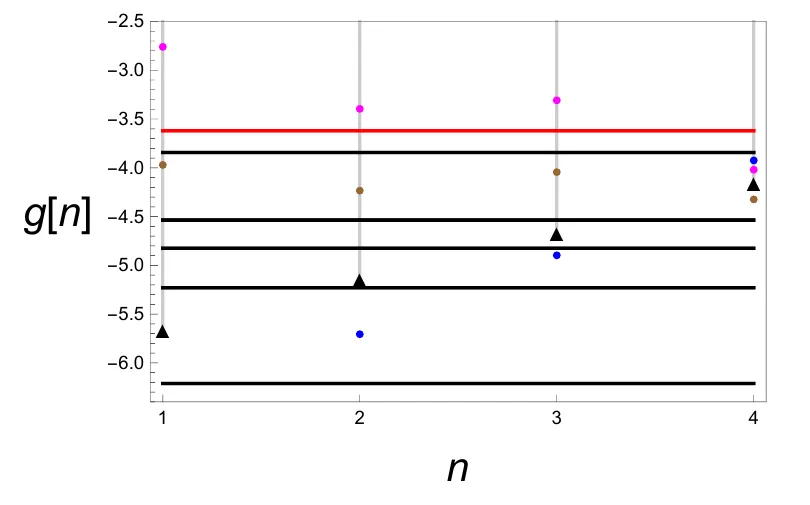
Viwango vya nishati huru vya modeli ya Pauling kwa molekuli moja hadi nne za oksijeni zilizoshikwa. Mistari ya mlalo inaonyesha madirisha ya kifiziolojia; ni ulinganisho bora tu (pembetatu nyeusi, ushirikiano 1.88) unaoangukia ndani ya yote. Rangi nyingine zinaonyesha ushirikiano mkubwa zaidi (magenta, kahawia) na kutokuwepo kwa ushirikiano (bluu). — Kielelezo 2, Allahverdyan et al. (2026), arXiv:2611.00824.
Ushirikiano unapogeuka kuwa mfululizo wa kuporomoka
Katika mfumo mpya, ushirikiano mwingi kupita kiasi unakuwa hatari. Kwa kipengele cha 4.83, hesabu inazalisha mporomoko wa mfululizo (cascade): mara tu molekuli ya kwanza ya oksijeni inapoondoka, zile tatu nyingine huachiliwa zenyewe — hali ambayo waandishi wanaiita isiyokubalika, kwa sababu ingesababisha sumu ya oksijeni. Kwa 7.83, hemoglobini isingeweza tena kujaa katika mapafu hata kidogo. Thamani za mfumo wa kawaida, zikiletwa katika mfumo mpya, vilevile husababisha ukosefu wa uthabiti. Mfumo wa kawaida, kinyume chake, hauweki mipaka kama hiyo.
Picha mpya pia inabadilisha tabia ya molekuli. Katika maelezo ya kawaida, idadi ya molekuli za oksijeni zilizoshikwa hubadilikabadilika kwa kiasi karibu sawa na thamani yake ya wastani. Katika maelezo sanifu, haibadiliki karibu hata kidogo: hemoglobini hufanya kazi karibu kama mashine, ikichukua na kuachilia oksijeni hatua moja baada ya nyingine, na molekuli iliyojaa haivuti zaidi.
Oksijeni inayorukaruka
Waandishi wanatoa tokeo moja zaidi: kwa kuwa hemoglobini jirani zinaweza kubadilishana oksijeni kulingana na nishati zao huru, huenda oksijeni husafiri ndani ya seli nyekundu ya damu kwa sehemu kwa kurukaruka kutoka hemoglobini moja hadi inayofuata. Kupima wazo hilo kutahitaji modeli za kibadilika (dynamic models). Utafiti huu ni wa kinadharia, na viwango vyake vya kifiziolojia ni, kwa maneno ya waandishi, “vya kimapokeo kwa kiasi fulani” (somewhat conventional) — lakini unahoji msingi mkuu wa jinsi vitabu vya kiada vya biolojia vinavyoeleza oksijeni katika damu yetu.