血红蛋白的协同性可能不如教科书所说的那么强
血红蛋白是在血液中运输氧气的蛋白质,也是协同性的教科书范例:一旦结合了一个氧分子,它就更容易结合下一个,最多可结合四个。正是这一点使它能在肺部充分装载氧气,再在组织中卸载。有两个经典模型可以解释这一现象:一个是L. Pauling于1935年提出的模型,其中四个结合位点相互帮助;另一个是1965年的Monod-Wyman-Changeux(MWC)模型,其中整个分子在两种构象之间切换,两种构象与氧结合的紧密程度不同。
这两个模型通常都在同一设定下推导:单个血红蛋白分子浸没在一个由游离氧分子构成的储库中,用压强来描述。物理学家称之为“巨正则系综”。饱和曲线——血红蛋白在每个压强下携带多少氧——由此得出,协同性则从这条曲线上读出。
并不存在的储库
亚美尼亚阿利哈尼扬国家实验室和埃里温国立大学的A. E. Allahverdyan及其同事指出,在红细胞内部,这样的储库并不存在。溶解在细胞中的游离氧,浓度至少比与血红蛋白结合的氧低100倍——这正是血红蛋白存在的原因。大约每1个游离氧分子对应30个血红蛋白分子。即使在动脉血中,大多数血红蛋白分子附近也没有任何游离氧:每个分子只看得到它自己携带的四个氧分子。
因此,该团队换了一种方式来描述这一情形:一个血红蛋白和少数几个氧分子(最多五个)处于固定的体积中,即“正则系综”。这个体积由血红蛋白在细胞中的堆积密度决定:约为分子自身体积的四倍,相当于一个边长6.93纳米的立方体。在这幅图景中,氧分子的进出取决于自由能的差异,自由能衡量的是哪种排布在统计上更受青睐。
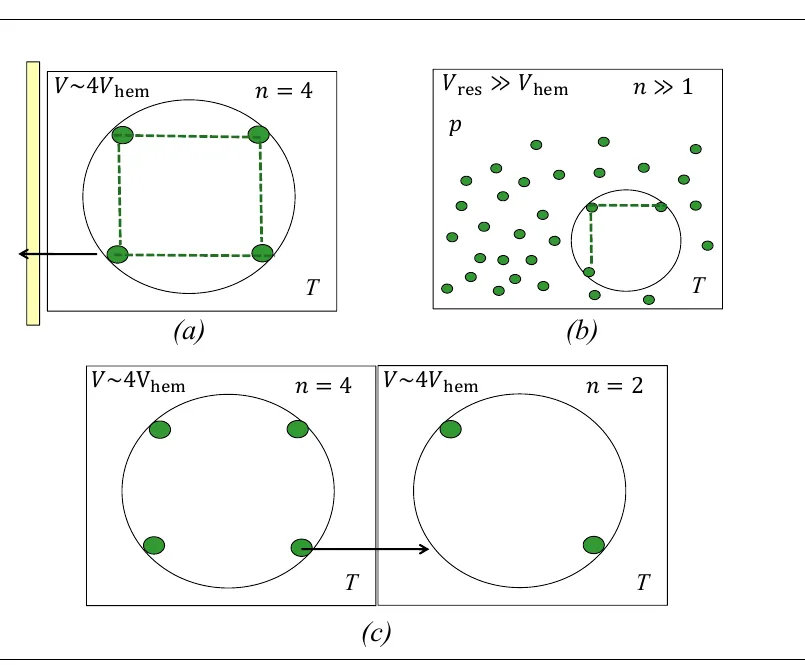
(a) 新的图景:一个血红蛋白(圆圈)及其四个氧分子,处于约为其自身体积四倍的空间中。(b) 通常的图景:一个血红蛋白处于由许多游离氧分子构成的储库中。(c) 两个相邻的血红蛋白可以交换氧分子。——图1,Allahverdyan等(2026),arXiv:2611.00824。
更弱的协同性
该团队用两个经典模型去拟合标准数据,这些数据描述了血红蛋白如何随氧分压下降而释放氧气——第一个氧分子在80至40托之间离开,最后一个在20至7.5托之间离开。
- 在Pauling模型中,协同因子(1表示没有协同)在新框架下为1.88,而用通常的框架拟合同样的数据得到的是6.32。Pauling本人用较早的数据拟合,得到的是12。
- 在MWC模型中,两种构象的氧亲和力之比——衡量分子偏离简单独立结合的程度——约为4.7,而在通常的框架中为95.4。
一定程度的协同性仍然是必需的。没有它,血红蛋白虽然能在肺部装载氧气,却只能为静息状态的组织供氧。
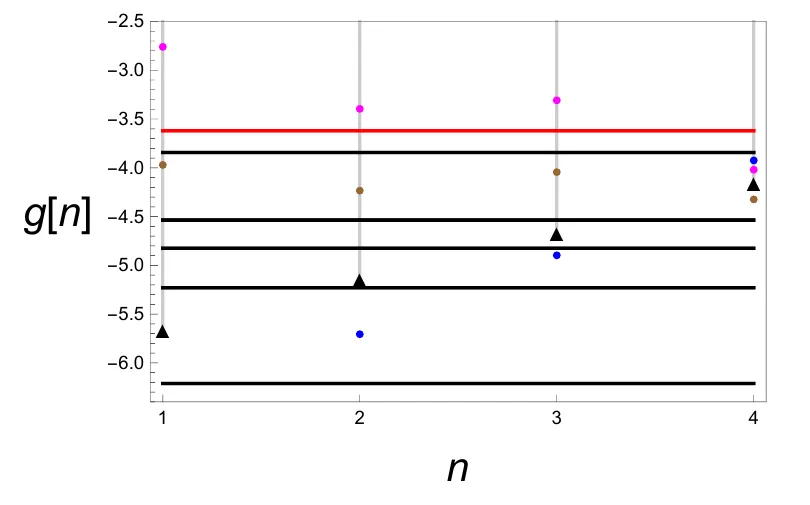
Pauling模型中结合一至四个氧分子时的自由能能级。水平线标出生理学上的允许范围;只有最佳拟合(黑色三角形,协同性1.88)落在所有范围之内。其他颜色表示更强的协同性(品红色、棕色)和没有协同性(蓝色)。——图2,Allahverdyan等(2026),arXiv:2611.00824。
当协同变成级联
在新框架中,过强的协同性会变得危险。当协同因子为4.83时,计算会出现级联:第一个氧分子一离开,其余三个就会自动释放——作者称这种情形不可接受,因为它会导致氧中毒。当因子为7.83时,血红蛋白就根本无法在肺部装载氧气了。把通常框架中的数值代入新框架,同样会导致不稳定。相比之下,通常的框架并不设定这样的限制。
新的图景还改变了这种分子的特性。在通常的描述中,结合的氧分子数的涨落幅度与其平均值相当。而在正则描述中,它几乎没有涨落:血红蛋白的行为几乎像一台机器,一步一步地接收和释放氧气,而且一个满载的分子不会再吸引更多的氧。
会跳跃的氧
作者还得出了另一个推论:既然相邻的血红蛋白可以根据各自的自由能交换氧分子,那么氧在红细胞内的传输可能部分是通过从一个血红蛋白跳跃到下一个来实现的。检验这一想法需要动力学模型。这项研究是理论性的,用作者的话说,其中的生理学阈值“有些约定俗成”——但它对生物学教科书描述血液中氧气的一块基石提出了质疑。