L'HÉMOGLOBINE SERAIT MOINS COOPÉRATIVE QUE NE LE DISENT LES MANUELS
L’hémoglobine, la protéine qui transporte l’oxygène dans notre sang, est aussi l’exemple type de la coopérativité : une fois qu’elle a fixé une molécule d’oxygène, elle fixe plus facilement les suivantes, jusqu’à quatre. C’est ce qui lui permet de se charger à plein dans les poumons et de se décharger dans les tissus. Deux modèles classiques l’expliquent — celui que L. Pauling a proposé en 1935, où les quatre sites de fixation s’entraident, et le modèle de Monod-Wyman-Changeux (MWC) de 1965, où la molécule entière bascule entre deux formes qui retiennent l’oxygène plus ou moins fort.
Tous deux sont d’ordinaire calculés dans le même cadre : une seule molécule d’hémoglobine plongée dans un réservoir de molécules d’oxygène libres, décrit par une pression. Les physiciens appellent cela l’« ensemble grand canonique ». La courbe de saturation — la quantité d’oxygène que l’hémoglobine retient à chaque pression — en découle, et on y lit la coopérativité.
Un réservoir qui n’existe pas
A. E. Allahverdyan et ses collègues, du Laboratoire national Alikhanyan et de l’université d’État d’Erevan, en Arménie, font remarquer qu’à l’intérieur d’un globule rouge, ce réservoir n’existe pas. L’oxygène libre dissous dans la cellule est au moins 100 fois moins concentré que l’oxygène fixé à l’hémoglobine — c’est d’ailleurs la raison d’être de l’hémoglobine. Il y a environ 30 molécules d’hémoglobine pour une molécule d’oxygène libre. Même dans le sang artériel, la plupart des molécules d’hémoglobine n’ont aucun oxygène libre à proximité : chacune ne voit que les quatre molécules qu’elle porte.
L’équipe décrit donc la situation autrement : une hémoglobine et une poignée de molécules d’oxygène — cinq au plus — dans un volume fixe, l’« ensemble canonique ». Ce volume est dicté par l’entassement de l’hémoglobine dans la cellule : environ quatre fois le volume propre de la molécule, un cube de 6,93 nanomètres de côté. Dans cette image, l’oxygène entre ou sort selon des différences d’énergie libre, une mesure de l’arrangement que la statistique favorise.
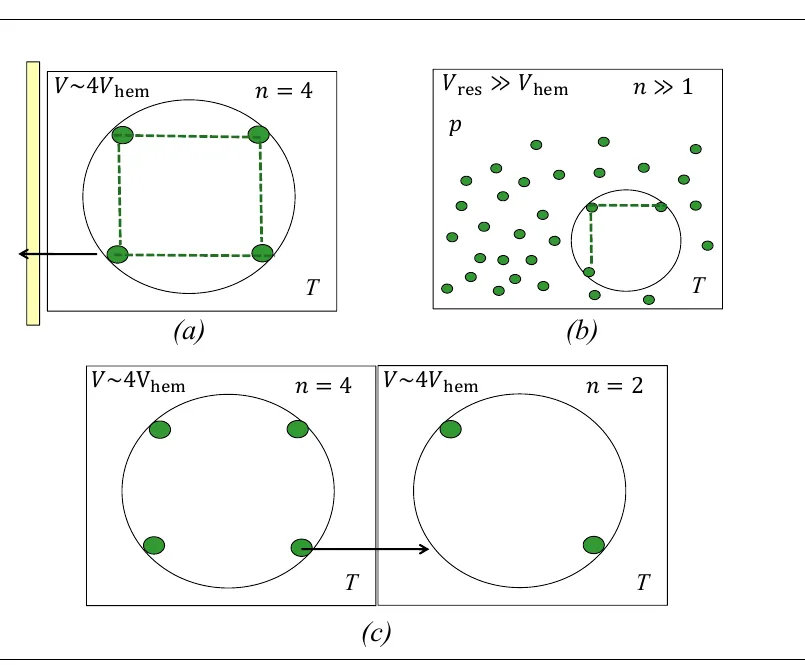
(a) La nouvelle image : une hémoglobine (cercle) et ses quatre molécules d’oxygène dans un volume d’environ quatre fois le sien. (b) L’image habituelle : une hémoglobine dans un réservoir de nombreuses molécules d’oxygène libres. (c) Deux hémoglobines voisines peuvent échanger de l’oxygène. — Figure 1, Allahverdyan et al. (2026), arXiv:2611.00824.
Une coopérativité plus faible
L’équipe a ajusté les deux modèles classiques sur des données standard décrivant comment l’hémoglobine libère l’oxygène quand la pression d’oxygène baisse — la première molécule partant entre 80 et 40 torr (une unité de pression ; dans les poumons, l’oxygène est à environ 100 torr), la dernière entre 20 et 7,5 torr.
- Dans le modèle de Pauling, le facteur de coopérativité — de combien un oxygène fixé favorise la fixation sur un site voisin ; 1 signifie aucun coup de pouce — vaut 1,88 dans le nouveau cadre, contre 6,32 dans le cadre habituel, ajusté sur les mêmes données. L’ajustement de Pauling, sur des données plus anciennes, donnait 12.
- Dans le modèle MWC, le rapport entre les affinités pour l’oxygène des deux formes — une mesure de l’écart à une fixation simple et indépendante — vaut environ 4,7, contre 95,4 dans le cadre habituel.
Un peu de coopérativité reste nécessaire. Sans elle, l’hémoglobine pourrait se charger dans les poumons, mais ne servirait que les tissus au repos.
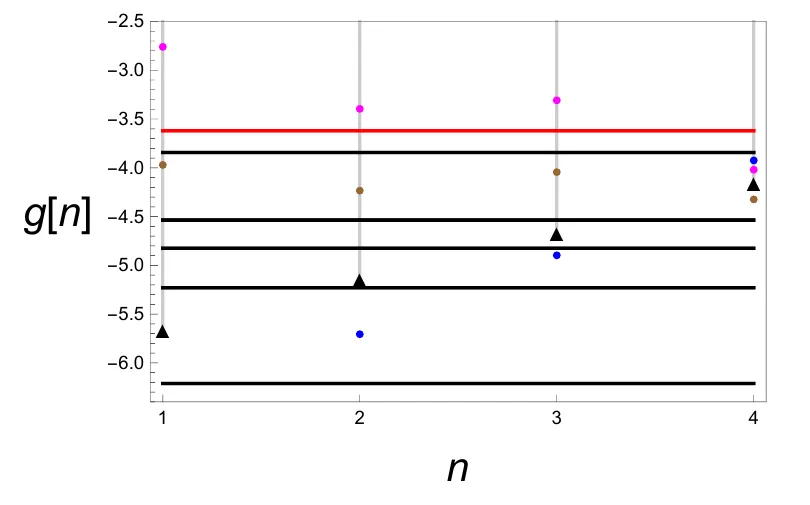
Niveaux d’énergie libre du modèle de Pauling pour une à quatre molécules d’oxygène fixées. Les lignes horizontales délimitent les fenêtres physiologiques ; seul le meilleur ajustement (triangles noirs, coopérativité 1,88) tombe dans toutes. Les autres couleurs montrent une coopérativité plus forte (magenta, marron) ou nulle (bleu). — Figure 2, Allahverdyan et al. (2026), arXiv:2611.00824.
Quand la coopération tourne à la cascade
Dans le nouveau cadre, trop de coopérativité devient dangereux. Avec un facteur de 4,83, le calcul produit une cascade : dès que la première molécule d’oxygène part, les trois autres sont libérées automatiquement — un scénario que les auteurs jugent inacceptable, car il mènerait à une intoxication à l’oxygène. À 7,83, l’hémoglobine ne pourrait même plus se charger dans les poumons. Les valeurs du cadre habituel, importées dans le nouveau, mènent elles aussi à des instabilités. Le cadre habituel, lui, ne fixe aucune limite de ce genre.
La nouvelle image change aussi le caractère de la molécule. Dans la description habituelle, le nombre de molécules d’oxygène fixées fluctue à peu près autant que sa valeur moyenne. Dans la description canonique, il ne fluctue presque pas : l’hémoglobine se comporte presque comme une machine, prenant et rendant l’oxygène pas à pas, et une molécule pleine n’en attire pas davantage.
Un oxygène qui saute
Les auteurs en tirent une dernière conséquence : puisque des hémoglobines voisines peuvent s’échanger de l’oxygène selon leurs énergies libres, l’oxygène pourrait circuler dans le globule rouge en partie en sautant d’une hémoglobine à l’autre. Tester cette idée demandera des modèles dynamiques. L’étude est théorique, et ses seuils physiologiques sont, selon les auteurs, « en partie conventionnels » — mais elle interroge une pierre angulaire de la façon dont les manuels de biologie décrivent l’oxygène de notre sang.