LA HEMOGLOBINA PODRÍA SER MENOS COOPERATIVA DE LO QUE DICEN LOS LIBROS DE TEXTO
La hemoglobina, la proteína que transporta el oxígeno en nuestra sangre, es también el ejemplo de manual de la cooperatividad: una vez que ha unido una molécula de oxígeno, une las siguientes con más facilidad, hasta cuatro. Esto es lo que le permite cargarse por completo en los pulmones y descargarse en los tejidos. Dos modelos clásicos lo explican: el que L. Pauling propuso en 1935, en el que los cuatro sitios de unión se ayudan entre sí, y el modelo de Monod-Wyman-Changeux (MWC) de 1965, en el que la molécula entera alterna entre dos formas que retienen el oxígeno con más o menos fuerza.
Ambos se suelen desarrollar en el mismo marco: una sola molécula de hemoglobina sumergida en un reservorio de moléculas de oxígeno libres, descrito por una presión. Los físicos lo llaman «conjunto gran canónico». La curva de saturación —cuánto oxígeno retiene la hemoglobina a cada presión— se deduce de él, y la cooperatividad se lee en esa curva.
Un reservorio que no existe
A. E. Allahverdyan y sus colegas, del Laboratorio Nacional Alikhanyan y de la Universidad Estatal de Ereván, en Armenia, señalan que dentro de un glóbulo rojo ese reservorio no existe. El oxígeno libre disuelto en la célula está al menos 100 veces menos concentrado que el oxígeno unido a la hemoglobina, que es precisamente la razón de que exista la hemoglobina. Hay unas 30 moléculas de hemoglobina por cada molécula de oxígeno libre. Incluso en la sangre arterial, la mayoría de las moléculas de hemoglobina no tienen ningún oxígeno libre cerca: cada una ve solo las cuatro moléculas que retiene.
Así que el equipo describe la situación de otro modo: una hemoglobina y un puñado de moléculas de oxígeno —cinco como máximo— en un volumen fijo, el «conjunto canónico». Ese volumen viene dado por lo apretada que está la hemoglobina en la célula: unas cuatro veces el volumen de la propia molécula, un cubo de 6,93 nanómetros de lado. En esta imagen, el oxígeno entra o sale según las diferencias de energía libre, una medida de qué disposición está estadísticamente favorecida.
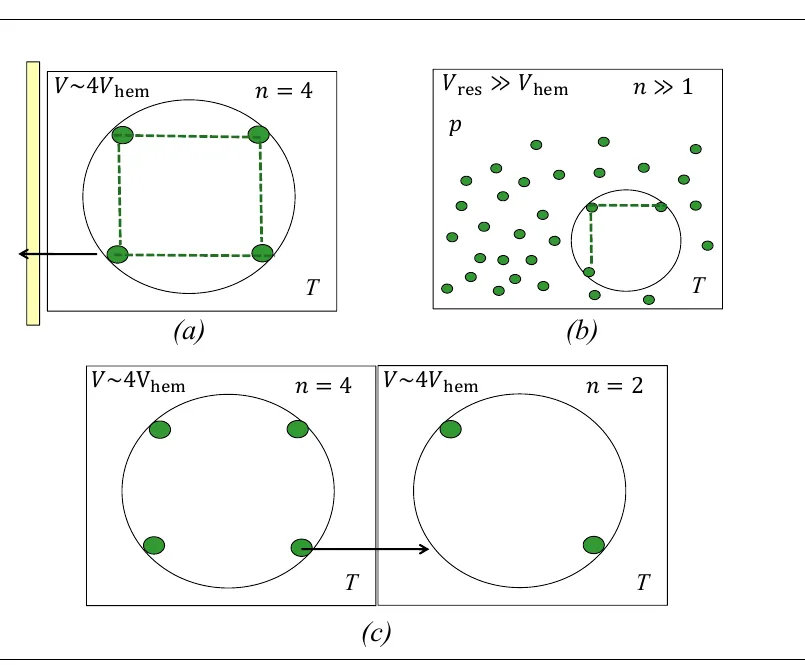
(a) La nueva imagen: una hemoglobina (círculo) con sus cuatro moléculas de oxígeno en un volumen unas cuatro veces mayor que el suyo. (b) La imagen habitual: una hemoglobina en un reservorio de muchas moléculas de oxígeno libres. (c) Dos hemoglobinas vecinas pueden intercambiar oxígeno. — Figura 1, Allahverdyan et al. (2026), arXiv:2611.00824.
Una cooperatividad más débil
El equipo ajustó los dos modelos clásicos a datos de referencia sobre cómo libera oxígeno la hemoglobina cuando baja la presión de oxígeno: la primera molécula sale entre 80 y 40 torr, la última entre 20 y 7,5 torr.
- En el modelo de Pauling, el factor de cooperatividad (1 significa que no hay cooperatividad) resulta de 1,88 en el nuevo marco, frente a 6,32 con el habitual, ajustado a los mismos datos. El ajuste del propio Pauling, con datos más antiguos, daba 12.
- En el modelo MWC, la razón entre las afinidades por el oxígeno de las dos formas —una medida de cuánto se aleja la molécula de una unión simple e independiente— resulta de unos 4,7, frente a 95,4 en el marco habitual.
Sigue haciendo falta algo de cooperatividad. Sin ella, la hemoglobina podría cargarse en los pulmones, pero solo abastecería a los tejidos en reposo.
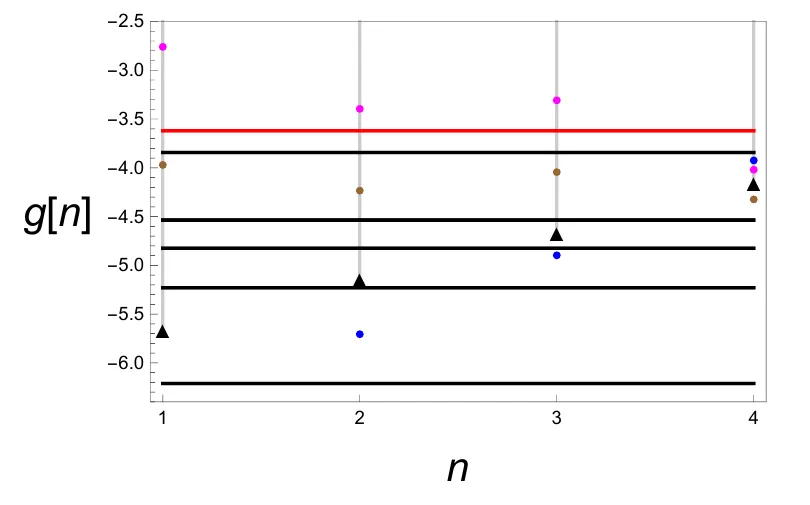
Niveles de energía libre del modelo de Pauling para una a cuatro moléculas de oxígeno unidas. Las líneas horizontales marcan las ventanas fisiológicas; solo el mejor ajuste (triángulos negros, cooperatividad 1,88) cae dentro de todas ellas. Los demás colores muestran una cooperatividad más fuerte (magenta, marrón) y nula (azul). — Figura 2, Allahverdyan et al. (2026), arXiv:2611.00824.
Cuando la cooperación se convierte en cascada
En el nuevo marco, un exceso de cooperatividad se vuelve peligroso. Con un factor de 4,83, el cálculo produce una cascada: en cuanto sale la primera molécula de oxígeno, las otras tres se liberan automáticamente, un escenario que los autores consideran inaceptable porque llevaría a una intoxicación por oxígeno. Con 7,83, la hemoglobina ya no podría cargarse en absoluto en los pulmones. Los valores del marco habitual, trasladados al nuevo, conducen igualmente a inestabilidades. El marco habitual, en cambio, no impone tales límites.
La nueva imagen cambia también el carácter de la molécula. En la descripción habitual, el número de moléculas de oxígeno unidas fluctúa aproximadamente tanto como su valor medio. En la canónica, apenas fluctúa: la hemoglobina se comporta casi como una máquina, que toma y libera el oxígeno paso a paso, y una molécula llena no atrae más.
Oxígeno que salta
Los autores extraen una consecuencia más: como las hemoglobinas vecinas pueden intercambiar oxígeno según sus energías libres, el oxígeno podría desplazarse dentro del glóbulo rojo en parte saltando de una hemoglobina a la siguiente. Comprobar esa idea exigirá modelos dinámicos. El estudio es teórico, y sus umbrales fisiológicos son, en palabras de los autores, «algo convencionales»; pero pone en duda una piedra angular de cómo los libros de texto de biología describen el oxígeno de nuestra sangre.