A HEMOGLOBINA PODE SER MENOS COOPERATIVA DO QUE DIZEM OS LIVROS DIDÁTICOS
A hemoglobina, a proteína que transporta o oxigênio no nosso sangue, é também o exemplo clássico de cooperatividade: depois de ligar uma molécula de oxigênio, ela liga as seguintes com mais facilidade, até quatro. É isso que permite que ela se carregue por completo nos pulmões e descarregue nos tecidos. Dois modelos clássicos explicam o fenômeno — o que L. Pauling propôs em 1935, em que os quatro sítios de ligação se ajudam mutuamente, e o modelo de Monod-Wyman-Changeux (MWC), de 1965, em que a molécula inteira alterna entre duas formas que retêm o oxigênio com mais ou menos força.
Os dois costumam ser desenvolvidos no mesmo cenário: uma única molécula de hemoglobina imersa num reservatório de moléculas de oxigênio livres, descrito por uma pressão. Os físicos chamam isso de “ensemble grande canônico”. A curva de saturação — quanto oxigênio a hemoglobina retém a cada pressão — decorre daí, e a cooperatividade é lida nessa curva.
Um reservatório que não existe
A. E. Allahverdyan e colegas, do Laboratório Nacional Alikhanyan e da Universidade Estatal de Yerevan, na Armênia, apontam que, dentro de um glóbulo vermelho, esse reservatório não existe. O oxigênio livre dissolvido na célula é pelo menos 100 vezes menos concentrado do que o oxigênio ligado à hemoglobina — e é justamente por isso que a hemoglobina existe. Há cerca de 30 moléculas de hemoglobina para cada molécula de oxigênio livre. Mesmo no sangue arterial, a maioria das moléculas de hemoglobina não tem nenhum oxigênio livre por perto: cada uma vê apenas as quatro moléculas que retém.
Por isso a equipe descreve a situação de outro modo: uma hemoglobina e um punhado de moléculas de oxigênio — cinco no máximo — num volume fixo, o “ensemble canônico”. Esse volume é determinado pelo grau de compactação da hemoglobina na célula: cerca de quatro vezes o volume da própria molécula, um cubo de 6,93 nanômetros de lado. Nessa descrição, o oxigênio entra ou sai conforme as diferenças de energia livre, uma medida de qual arranjo é estatisticamente favorecido.
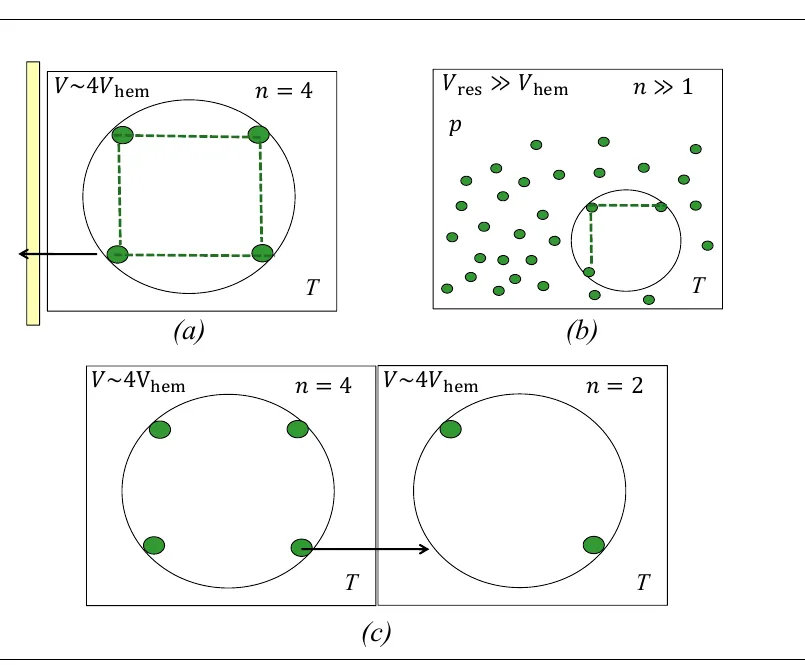
(a) A nova descrição: uma hemoglobina (círculo) com as suas quatro moléculas de oxigênio num volume cerca de quatro vezes o seu. (b) A descrição habitual: uma hemoglobina num reservatório de muitas moléculas de oxigênio livres. (c) Duas hemoglobinas vizinhas podem trocar oxigênio. — Figura 1, Allahverdyan et al. (2026), arXiv:2611.00824.
Cooperatividade mais fraca
A equipe ajustou os dois modelos clássicos a dados padrão sobre como a hemoglobina libera oxigênio à medida que a pressão de oxigênio cai — a primeira molécula saindo entre 80 e 40 torr, a última entre 20 e 7,5 torr.
- No modelo de Pauling, o fator de cooperatividade (1 significa nenhuma) resulta em 1,88 no novo formalismo, contra 6,32 no habitual, ajustado aos mesmos dados. O próprio ajuste de Pauling, com dados mais antigos, dava 12.
- No modelo MWC, a razão entre as afinidades pelo oxigênio das duas formas — uma medida de quanto a molécula se afasta de uma ligação simples e independente — fica em cerca de 4,7, contra 95,4 no formalismo habitual.
Alguma cooperatividade ainda é necessária. Sem ela, a hemoglobina conseguiria se carregar nos pulmões, mas só abasteceria tecidos em repouso.
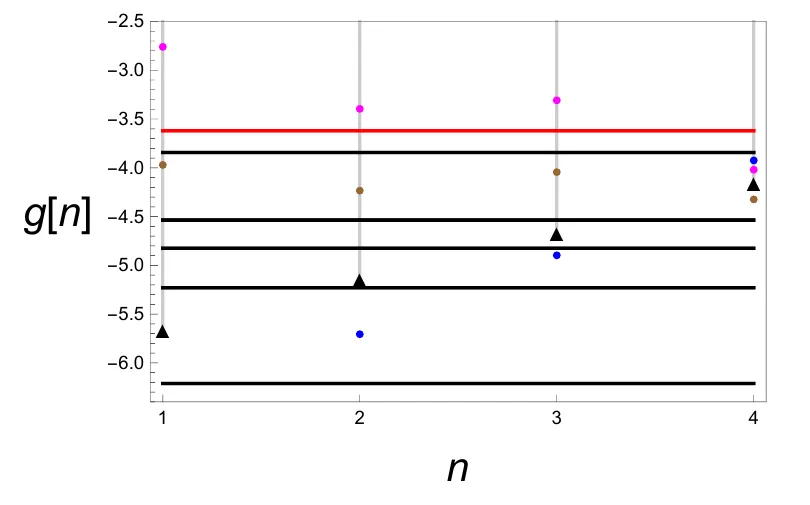
Níveis de energia livre do modelo de Pauling para uma a quatro moléculas de oxigênio ligadas. As linhas horizontais marcam as janelas fisiológicas; só o melhor ajuste (triângulos pretos, cooperatividade 1,88) cai em todas elas. As outras cores mostram cooperatividade mais forte (magenta, marrom) e nenhuma cooperatividade (azul). — Figura 2, Allahverdyan et al. (2026), arXiv:2611.00824.
Quando a cooperação vira cascata
No novo formalismo, cooperatividade demais se torna perigosa. Com um fator de 4,83, o cálculo produz uma cascata: assim que a primeira molécula de oxigênio sai, as outras três são liberadas automaticamente — um cenário que os autores consideram inaceitável, porque levaria à intoxicação por oxigênio. Com 7,83, a hemoglobina não conseguiria mais se carregar nos pulmões. Os valores do formalismo habitual, importados para o novo, também levam a instabilidades. O formalismo habitual, por outro lado, não impõe esses limites.
A nova descrição também muda o caráter da molécula. Na descrição habitual, o número de moléculas de oxigênio ligadas flutua mais ou menos tanto quanto o seu valor médio. Na canônica, ele quase não flutua: a hemoglobina se comporta quase como uma máquina, captando e liberando oxigênio um passo de cada vez, e uma molécula cheia não atrai mais nenhuma.
Oxigênio que salta
Os autores tiram mais uma consequência: como hemoglobinas vizinhas podem trocar oxigênio conforme as suas energias livres, o oxigênio poderia viajar dentro do glóbulo vermelho em parte saltando de uma hemoglobina para a seguinte. Testar essa ideia vai exigir modelos dinâmicos. O estudo é teórico, e os seus limiares fisiológicos são, nas palavras dos autores, “um tanto convencionais” — mas ele questiona um pilar da forma como os livros de biologia descrevem o oxigênio no nosso sangue.